临床前网站临床网站
最后更新时间: 2026年11月13日
作者: Pasquale Esposito, Ph.D., Robin Guay-Lord, M.Sc., Lionel Breuillaud, Ph.D., Kristina DeDuck, Ph.D., and Barry J. Bedell, M.D., Ph.D.

研究摘要: 通过对14只低多克西环素 ( Low Dox )rNLS8(TDP-43ΔNLS) 小鼠和14只tTA对照小鼠 的腓肠肌进行 多重免疫荧光 染色 , 并结合Biospective公司的PERMITS™图像分析技术 ,我们发现CD45⁺免疫细胞密度约为对照组的两倍, 该浸润细胞群主要由CD11b⁺髓系细胞组成;且在单只低多西环素小鼠中,CD45⁺细胞负荷越高,与之相关的神经肌肉接头去神经支配程度越完全(r = 0.81),而CMAP振幅则越低(r = −0.71)。 因此,肌肉炎症提供了一个定量且在机制上具有指导意义的终点指标,可在ALS临床前疗效研究中与神经肌肉接头(NMJ)神经支配和电生理学指标相辅相成。

≈2×

CD45⁺ 免疫细胞密度与 tTA 对照组相比(p < 0.001)

r = 0.81

低剂量多西环素小鼠中CD45⁺密度与完全去神经化的神经肌肉接头(NMJ)的对比

r = −0.71

低剂量多西环素小鼠体内CD45⁺密度与CMAP最大振幅的关系

≈2×

CD45⁺ 免疫细胞密度与 tTA 对照组相比(p < 0.001)

r = 0.81

低剂量多西环素小鼠中CD45⁺密度与完全去神经化的神经肌肉接头(NMJ)的对比

r = −0.71

低剂量多西环素小鼠体内CD45⁺密度与CMAP最大振幅的关系

可在Biospective上获取

低Dox rNLS8(TDP-43ΔNLS)ALS小鼠模型

  • 内部繁殖群,可快速启动并建立大规模研究队列

  • 长达数月的疾病进展过程,从而扩大了检测疾病干预效果的时间窗口

  • 已针对肌肉炎症、神经肌肉接头(NMJ)神经支配、心肌动作电位(CMAP)、CT、握力、NfL及MRI进行验证

可在Biospective上获取

低Dox rNLS8(TDP-43ΔNLS)ALS小鼠模型

  • 内部繁殖群,可快速启动并建立大规模研究队列

  • 长达数月的疾病进展过程,从而扩大了检测疾病干预效果的时间窗口

  • 已针对肌肉炎症、神经肌肉接头(NMJ)神经支配、心肌动作电位(CMAP)、CT、握力、NfL及MRI进行验证

研究概览:低剂量多西环素rNLS8小鼠的肌肉炎症与神经肌肉接头完整性(Biospective内部研究)。

模型

低剂量多西环素rNLS8(NEFH-tTA × tetO-hTDP-43ΔNLS)小鼠,Biospective低剂量多西环素诱导模型

对照组

tTA单转基因同窝鼠(仅携带NEFH-tTA,不含人类TDP-43ΔNLS转基因)

组别规模

N = 14 低多西环素 rNLS8;N = 14 tTA 对照组

诱导时的性别和年龄

低剂量多西环素 rNLS8 组:7 只雌性 + 7 只雄性,诱导时年龄为 10.7 ± 0.63 周;tTA 对照组:7 只雌性 + 7 只雄性,基线时年龄为 11.0 ± 0.65 周

时间点

引产后8周

组织

腓肠肌,固定-冷冻切片(切片厚度:40 µm);连续切片上的CD11b

多重免疫荧光检测组合

SV2A、βIII-微管蛋白、α-蝮蛇毒素、CD45、DAPI;CD11b(连续切片)

图像分析

全片扫描;PERMITS™ 自动分割;根据 SV2A/α-BTX 重叠情况,将神经肌肉接头(NMJ)分类为完全去神经化(0–20%)、部分神经支配(20–80%)或完全神经支配(80–100%)

组织学读数

CD45⁺细胞密度(细胞/mm²);神经肌肉接头分类密度(终板/mm²);SV2A/α-BTX重叠率;突触前分支复杂度;总轴突投射

功能性指标

腓肠肌最大CMAP振幅,坐骨神经刺激(低剂量多西环素小鼠)

统计分析

组间比较采用配对t检验(均值 ± 标准误);低剂量多西环素组(n = 14)内采用皮尔逊相关分析

主要结果

CD45⁺密度约为对照组的2倍(p < 0.001);完全受神经支配的神经肌肉接头(NMJ)数量减少,而完全去神经支配的NMJ数量增加(p < 0.0001); CD45⁺密度与完全去神经支配的NMJ之间的相关系数r = 0.81(p = 0.0004);与CMAP振幅的相关系数r = −0.71(p = 0.0047)

骨骼肌炎症在肌萎缩侧索硬化症(ALS)中起着重要作用,因为在患者和实验鼠的肌肉中,免疫细胞会聚集在神经肌肉接头(NMJ)周围;且干预研究表明,这些细胞不仅会在运动神经末梢丧失后进行清理,还会加速其丧失(Wang,2017;Nógrádi,2025)。

肌萎缩侧索硬化症(ALS)在临床上的定义是上运动神经元和下运动神经元的退化,这会导致进行性肌无力、瘫痪,并最终导致呼吸衰竭(Hardiman, 2017)。几十年来,对该疾病的认识几乎完全围绕运动神经元细胞体展开。 时空病理学研究改变了这一观点:在SOD1突变小鼠中,早在腹侧神经根轴突或脊髓运动神经元丧失之前,终板去神经化就已经相当严重;而一例散发性ALS患者的尸检显示,在运动神经元看似完好的情况下,肌肉已出现去神经化(Fischer, 2004)。 神经肌肉接头去神经化也是TDP-43小鼠模型的一致特征,且已有研究提出TDP-43驱动型疾病存在“回溯性死亡”机制,这将神经肌肉接头及其周围的肌肉环境置于疾病发病机制的核心位置(Lépine, 2022;Alhindi, 2023)。

肌肉是积极的参与者,而非被动的靶点。

肌纤维、纤维-脂肪生成前体细胞、终末施万细胞和驻留免疫细胞都会对去神经化作出反应,其中一些反应会反过来影响神经肌肉接头的稳定性(Shefner,2023)。 在去神经支配的肌肉中,纤维-脂肪生成前体细胞会激活STAT3–IL-6信号通路,从而促进肌肉萎缩和纤维化;而阻断该通路可在SOD1小鼠中保护肌肉(Madaro, 2018)。NLRP3等炎性小体成分在 ALS 小鼠肌肉中也发生了改变,并已被作为肌肉来源的生物标志物进行研究(Moreno-García,2021)。

免疫细胞浸润聚集在突触丢失的部位。

在SOD1G93A大鼠中,随着疾病进展,四肢肌肉中的髓系标志物(包括 CD11b 和 CD68)水平升高,同时伴随IL-1β和TNF-α水平升高,以及神经肌肉接头(NMJ)邻近区域出现反应性胶质细胞变化(Van Dyke,2016)。 在SOD1小鼠中,补体C5a通过巨噬细胞表面的C5aR1受体介导信号传导,驱动巨噬细胞向肌肉募集;而敲除C5aR1既减少了巨噬细胞数量,又减轻了终板去神经化,同时改善了握力(Wang, 2017)。 在尸检中,肥大细胞和中性粒细胞也会浸润瘫痪大鼠的肌肉以及ALS患者的股四头肌,并在那里与运动终板相关联(Trias,2017;Trias,2018)。

这些证据大多来自SOD1模型。 目前与 TDP-43 相关最直接的数据来自一项研究:该研究在 ALS 患者的肌肉活检样本中发现了白细胞和巨噬细胞浸润,并在多个 TDP-43 小鼠模型中(从无症状阶段开始)复现了这一发现,并表明浸润细胞集中于神经肌肉接头(NMJ)丰富的肌肉区域 (Nógrádi,2025)。蛋白质组学分析以及hTDP-43小鼠和患者肌肉中神经肌肉接点周围CCL2表达细胞的富集现象,均指向CCL2–CCR2轴的作用, 且在hTDP-43小鼠中进行局部抗体治疗(使用CCL2中和抗体或非特异性IgG)可减少白细胞浸润并减轻神经肌肉接头的去神经化(Nógrádi, 2025)。

然而,免疫细胞并非一律有害。进展缓慢的SOD1小鼠会产生一种早期肌肉反应,其中浸润的巨噬细胞呈现出促进再生的表型,这种表型支持肌生成并维持CMAP(Margotta,2023), 而在rNLS8模型中,一旦TDP-43表达被关闭,小胶质细胞对于实现完全的运动功能恢复是必不可少的(Spiller,2018)。因此,同时测定免疫浸润的程度和类型,对于解读某种疗法在肌肉中的作用至关重要。

Low Dox rNLS8 模型通过在神经元中表达具有缺陷核定位信号的人源 TDP-43,从而重现了 TDP-43 驱动的神经肌肉病理变化,这会导致细胞质中 TDP-43 积累、神经肌肉接头去神经化以及运动功能衰退(Walker,2015)。Biospective 的“低多克索”诱导模型与传统的“无多克索”模型相比,以更缓慢、更便于药物测试的节奏诱导出该表型(Biospective 内部表型鉴定)。

rNLS8小鼠为双基因小鼠: 将由神经丝重链(NEFH)启动子驱动的 tTA 品系与 tetO-hTDP-43ΔNLS 响应品系杂交,因此神经元中的转基因表达在多西环素存在时被抑制,在去除多西环素时被诱导(Walker, 2015)。 在最初的描述中,诱导会产生不溶性的磷酸化胞质TDP-43,导致内源性核TDP-43缺失、肌肉去神经支配、运动神经元丧失及进行性运动功能障碍;而在疾病发作后重新给予多西环素,可促使肌肉重新神经支配并恢复功能(Walker, 2015)。 这种可逆性使得该模型在探究某条信号通路是否具有疾病修饰作用方面具有非凡的价值。由于转基因由神经元启动子驱动,本页所述的肌肉表型极有可能是由神经元 TDP-43 病理变化下游引起的,而非源于肌肉组织中转基因本身的表达。 如需更全面地比较 TDP-43 与其他 ALS 小鼠模型,请参阅我们关于“用于药物发现的 ALS 模型”的指南,以及关于“用于 ALS 药物开发的 TDP-43ΔNLS (rNLS8) 小鼠”的资源。

Biospective 开发并表征了一种低剂量多西环素(“Low Dox”)诱导方案,该方案可将疾病进展速度从数周延缓至数月,从而扩大了治疗干预的时间窗口。 该模型的详细信息、我们的内部繁殖群以及全套经过验证的终点指标,均可在我们的rNLS8 TDP-43ΔNLS 小鼠模型页面上查阅。 Biospective此前基于该模型的数据(收录于我们的“神经肌肉接头去神经化”交互式演示文稿中)显示:SV2A与α-蝮蛇毒素的共定位消失、突触前结构简化、轴突投射减少,同时伴随握力下降、CMAP振幅降低,以及纵向CT成像显示的后肢肌肉进行性萎缩。 在Thy1驱动的hTDP-43过表达模型中,也独立证实了神经肌肉接头去神经化现象,该现象仅限于神经末梢,并与运动神经元丧失呈同步变化(Alhindi, 2023)。

超越肌肉

在同一批低剂量多西环素(Low Dox)rNLS8小鼠中观察神经退行性病变的发生过程

肌肉炎症是多系统表型的一部分。 在Biospective的低多西环素(Low Dox)rNLS8小鼠模型中,活体MRI显示 皮质局部变薄(本动画中为绿色和黄色区域),同时伴有细胞质内TDP-43沉积、胶质增生、神经丝轻链水平升高以及进行性运动功能缺损,所有这些指标均可在单项研究中进行测定。

在Low Dox处理的rNLS8腓肠肌中,CD45⁺免疫细胞分布于整个肌肉组织中,其密度明显高于tTA对照组。下方的交互式展示功能可让您以全分辨率查看该整切片多重免疫荧光数据,同时还能查看自动生成的神经肌肉接头(NMJ)神经支配分割图及定量结果。
ALS“低多西环素”TDP-43ΔNLS小鼠模型中的肌肉炎性浸润

1/8

https://ispproductionpublic.blob.core.windows.net/media/1e7a4868-236a-40a9-9d44-23d2a0c3437e/1e7a4868-236a-40a9-9d44-23d2a0c3437e

作者:帕斯夸莱·埃斯波西托、罗宾·盖伊-洛德、利昂内尔·布雷约、克里斯蒂娜·德达克和巴里·J·贝德尔

肌萎缩侧索硬化症(ALS)是一种进行性神经退行性疾病,传统上以其上运动神经元和下运动神经元的退化为特征(Hardiman,2017)。 然而,越来越多的证据表明,骨骼肌在疾病早期便会出现病理和炎症变化,这些变化可能影响疾病的进展(Menoio,2021;Shefner,2023)。 肌肉组织内的炎症变化可能导致疾病早期出现神经肌肉不稳定、突触脆弱性以及功能下降(Van Dyke,2017;Moreno-Garcia,2021)。

在ALS的早期阶段,神经肌肉接头(NMJ)表现出与远端“逆向死亡”过程相一致的结构异常(Dadon-Nachum,2010)。 这些突触改变通常先于明显的运动神经元丧失出现,且可能受到肌肉微环境中局部炎症信号的影响(Nógrádi,2025)。

Biospective 针对广泛使用的 TDP-43NLS(rNLS8)小鼠模型开发了一种低剂量多西环素(“Low Dox”)诱导方案,可实现 TDP-43 病理变化的渐进式和可控性发展。 在此方案下,rNLS8 小鼠在神经丝重链(NEFH)启动子的驱动下表达人类 TDP-43ΔNLS,导致 TDP-43 在数周至数月内逐渐发生细胞质定位异常和聚集(Walker,2015)。 该方法模拟了早期ALS病理,并可用于研究初期神经肌肉功能障碍期间以肌肉为中心的炎症变化。

本交互式演示文稿描述了低剂量多西环素(Low Dox)rNLS8小鼠腓肠肌中的炎症反应及其与神经肌肉接头(NMJ)完整性的关系。除了突触结构变化外,我们还考察了更广泛的肌肉微环境,包括:

  • CD45⁺炎症细胞数量增加

  • 突触前分支复杂性降低

  • 突触前和突触后对齐受损

  • 轴突投射总量减少

在本研究中,我们对来自N=14只低剂量多西环素(Low Dox)rNLS8小鼠和N=14只tTA对照小鼠的固定冷冻腓肠肌切片进行了多重免疫荧光染色处理,以同时观察:

  • 突触前组分:SV2A和βIII-微管蛋白

  • 突触后乙酰胆碱受体:α-蝮蛇毒素

  • 炎症:CD45(泛白细胞标志物)

  • 细胞核:DAPI

这种综合方法使得我们能够对CD45⁺细胞负荷、突触前分支复杂性、突触对齐情况以及轴突投射进行定量和空间评估。我们的研究结果支持这样一种观点:在 TDP-43 介导的 ALS 病理过程中,早期肌肉炎症与神经肌肉结构的破坏相关。

要浏览本“图像故事”,请使用 箭头 和/或 位于本面板右上角的“目录 ”图标。

https://ispproductionpublic.blob.core.windows.net/media/e4432d9e-0643-4f8b-8af6-5ea0250e5fa8/e4432d9e-0643-4f8b-8af6-5ea0250e5fa8

您还可以随时在右侧的“图像查看器”中与显微镜图像进行交互,以进一步探索这些高分辨率数据。

低剂量多西环素rNLS8小鼠的神经肌肉接点和轴突病理学

这张多重免疫荧光图像显示了tTA对照小鼠体内的α-BTX(突触后乙酰胆碱受体)、SV2A(突触前囊泡)和βIII-微管蛋白(轴突投射)。 在tTA对照组中,强烈的SV2A–α-BTX共定位(黄色)表明神经支配完整且突触排列正常。 在低剂量多克西环素(Low Dox)小鼠中,α-BTX阳性终板处的SV2A信号减弱或缺失,表明存在去神经化。βIII-微管蛋白的标记显示,投射至终板的轴突分支较少,反映了远端轴突的早期病理变化。

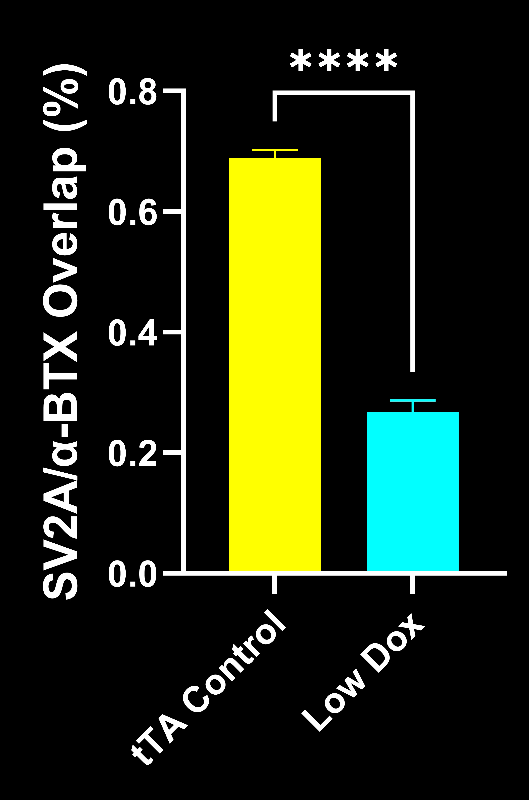
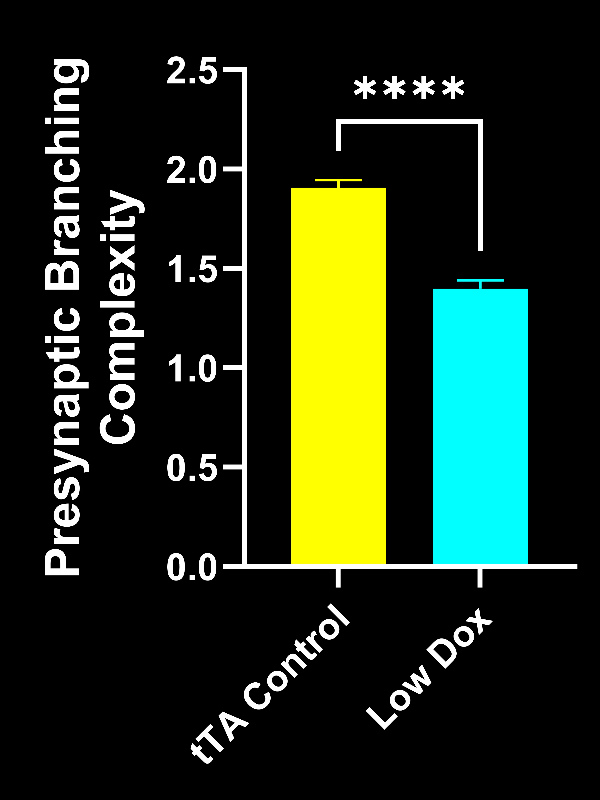
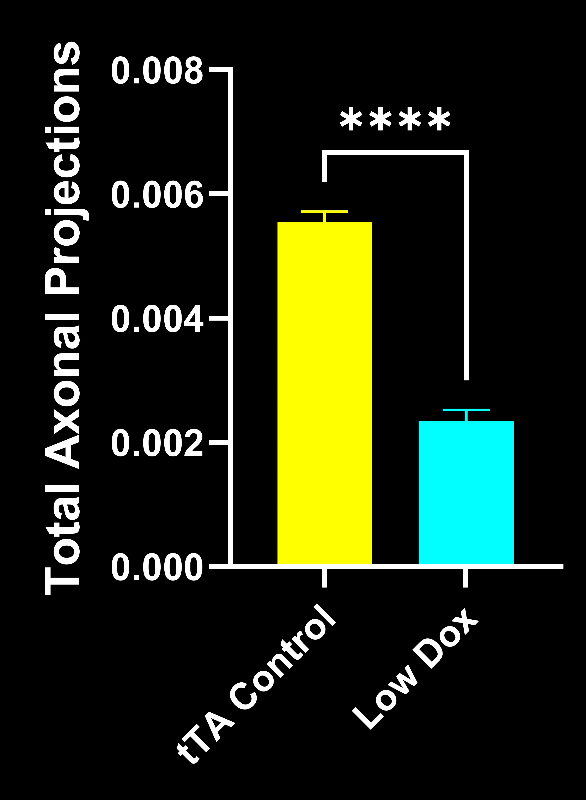
利用 Biospective 专有的 PERMITS™ 定量分析技术,我们测定了SV2A 与 α-BTX的重叠程度、突触前分支的复杂性以及轴突投射总数。 与tTA对照组相比,低Dox小鼠表现出突触前复杂性显著降低、α-BTX–SV2A共定位减少以及总轴突投射数量减少,这表明神经肌肉接头(NMJ)正逐渐受损且存在早期轴突变性。

一张展示低剂量多西环素组与对照组小鼠神经肌肉接头(NMJ)神经支配差异的图表

tTA 小鼠中SV2A/α-BTX 的重叠率(%): (对照组)与低剂量多西环素(Dox) rNLS8小鼠的比较;均值 ± 标准误(SEM),t检验,**** p < 0.0001。

一张展示低剂量多西环素组小鼠与对照组小鼠突触前分支复杂性差异的图表

tTA 小鼠(对照组)与低剂量多西环素 rNLS8 小鼠的突触前分支复杂性比较;均值 ± 标准误,t 检验,**** p < 0.0001。

一张展示低剂量多西环素组与对照组小鼠轴突投射总量差异的图表

tTA 小鼠(对照组)与低剂量多克西环素(Dox) rNLS8小鼠的轴突投射总量比较;均值 ± 标准误(SEM),t检验,**** p < 0.0001。

神经肌肉接头(NMJ)的分类是基于 SV2A 信号与 α-BTX 标记的重叠百分比,这些分类可直接以彩色方框的形式在显微镜图像中直观呈现。 完全去神经化的神经肌肉接头 被定义为 SV2A/α-BTX 重叠率,表明突触前接触极少或缺失。 部分神经支配的神经肌肉接头被定义为 重叠率为20%-80%,反映出突触前覆盖范围减少或不完全。 完全神经支配的神经肌肉接头被归类为 重叠率为80%-100%,表明突触对齐完好且突触前连接得以保留。

低剂量多西环素小鼠中,炎症浸润伴随神经肌肉接头去神经化进程

这张多重免疫荧光显微镜图像显示,除了神经肌肉接头(NMJ)受损外,低多西环素(Low Dox)rNLS8小鼠的腓肠肌中CD45⁺免疫细胞数量显著增加。 与对照组织相比,低多西环素(Low Dox)小鼠肌肉中分布的CD45⁺细胞密度更高,表明其炎症环境加剧。

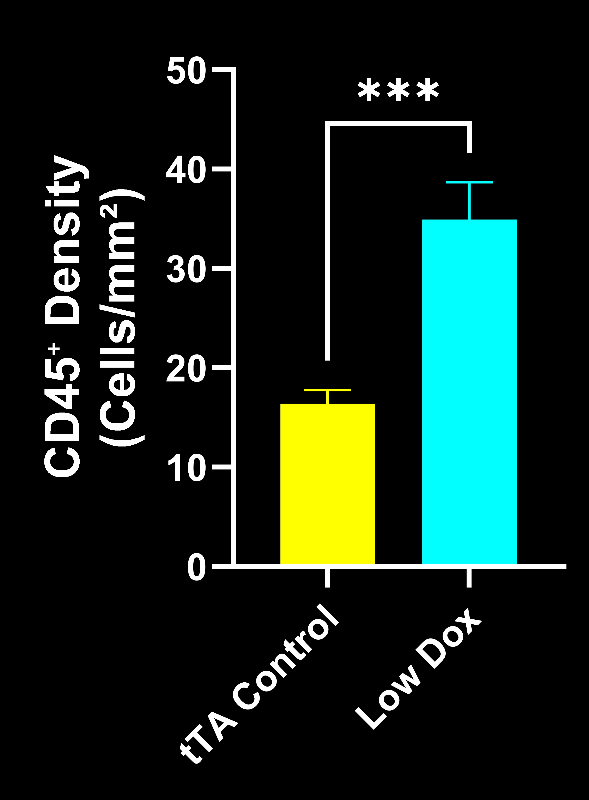
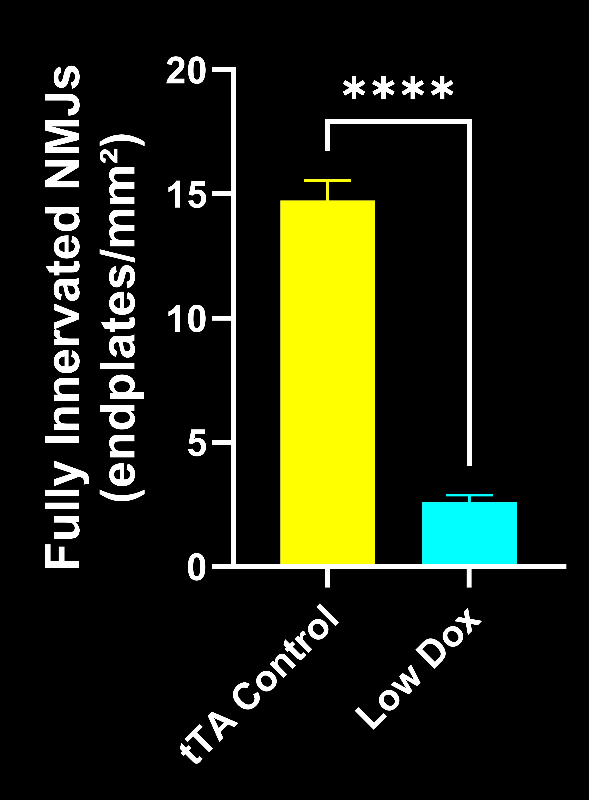
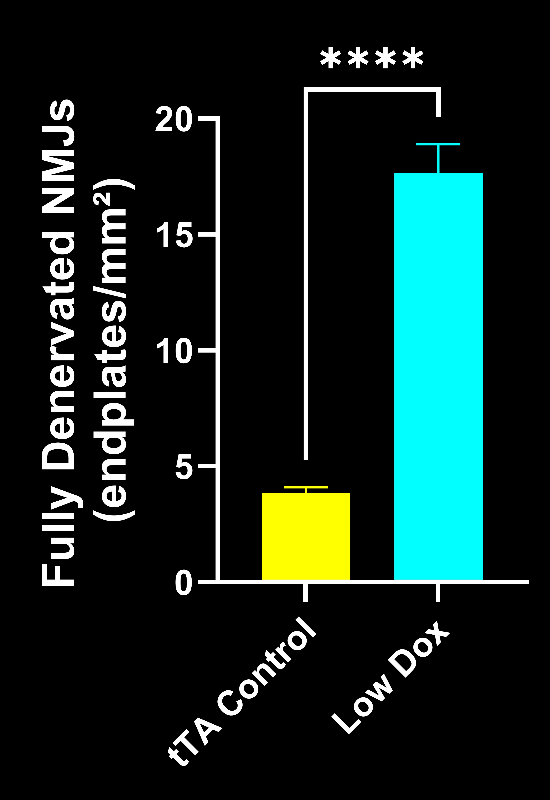
PERMITS™定量分析证实,低多克索(Low Dox)小鼠的CD45⁺细胞密度显著升高。该分析还根据神经支配状态对神经肌肉接头(NMJ)进行了亚分类,区分了完全受神经支配的终板和完全去神经支配的终板。 与对照组相比,低多克索酮小鼠中完全去神经支配的神经肌肉接头比例更高,而完全受神经支配的终板数量更少。这些发现表明,在低多克索酮模型中,神经肌肉接头的不稳定和轴突变性与肌肉免疫活化的增强同时发生。

一张显示低剂量多克西环素组与对照组小鼠之间CD45密度差异的图表

tTA 小鼠(对照组)与低剂量多克西环素 rNLS8 小鼠的CD45 密度比较;均值 ± 标准误,t 检验,*** p < 0.001。

一张展示低剂量多西环素组与对照组小鼠中完全受神经支配的神经肌肉接点(NMJ)差异的图表

tTA 小鼠(对照组)与低剂量多西环素 rNLS8小鼠相比,完全受神经支配的肌神经接头(定义为 α-BTX与SV2A重叠率为80–100%)密度; 均值 ± 标准误(SEM),t检验,**** p < 0.0001。

一张图表,显示了低剂量多西环素组与对照组小鼠中完全去神经化的神经肌肉接头(NMJ)数量的差异

tTA 小鼠(对照组)与低剂量多西环素 rNLS8小鼠相比,完全去神经化的神经肌肉接头(定义 为α-BTX与SV2A重叠率为0–20% )密度; 均值 ± 标准误 (SEM),t 检验,**** p < 0.0001。

tTA对照组小鼠肌肉中CD45⁺免疫细胞含量较低

这张多重免疫荧光显微镜图像显示,在tTA对照组小鼠中,腓肠肌内的CD45⁺免疫细胞数量稀少。存在的少量CD45⁺细胞主要分布在肌纤维之间的间质区域,这与健康骨骼肌中正常的基线免疫监视相一致。

肌肉炎症与神经肌肉接头去神经化及CMAP振幅降低相关

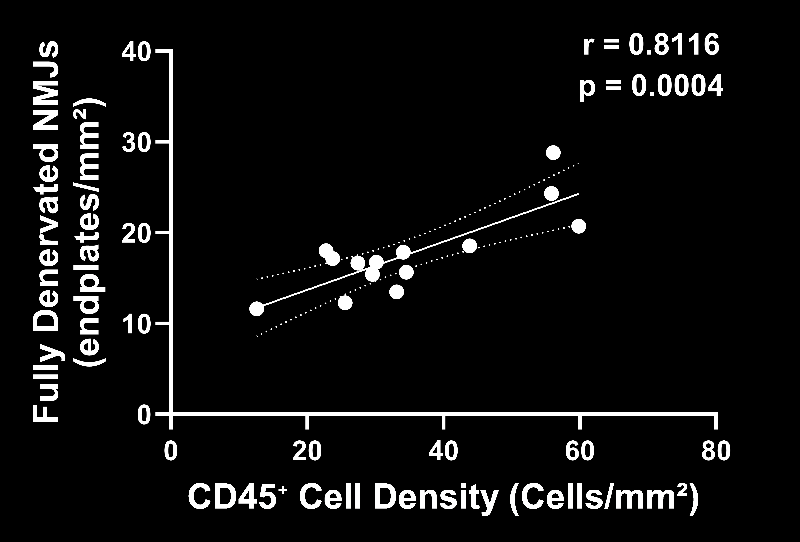
相关性分析表明,低剂量多西环素(Low Dox)rNLS8小鼠腓肠肌 中CD45+免疫细胞数量的增加,与完全去神经化的神经肌肉接头(NMJs)比例升高密切相关。CD45免疫反应性更强的肌肉中,存在更多缺乏突触前SV2A信号的α-BTX阳性终板,这表明突触已完全丧失。这种强烈的正相关表明,肌肉炎症与突触丧失的严重程度密切相关。

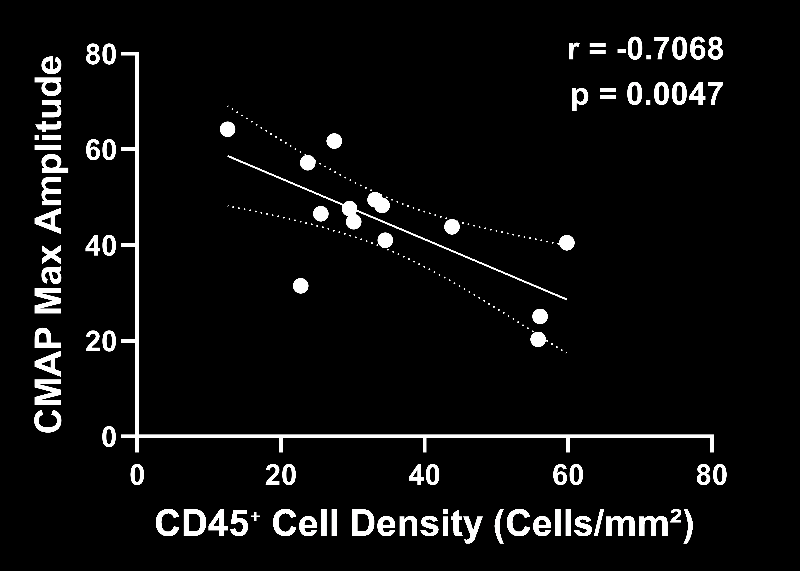
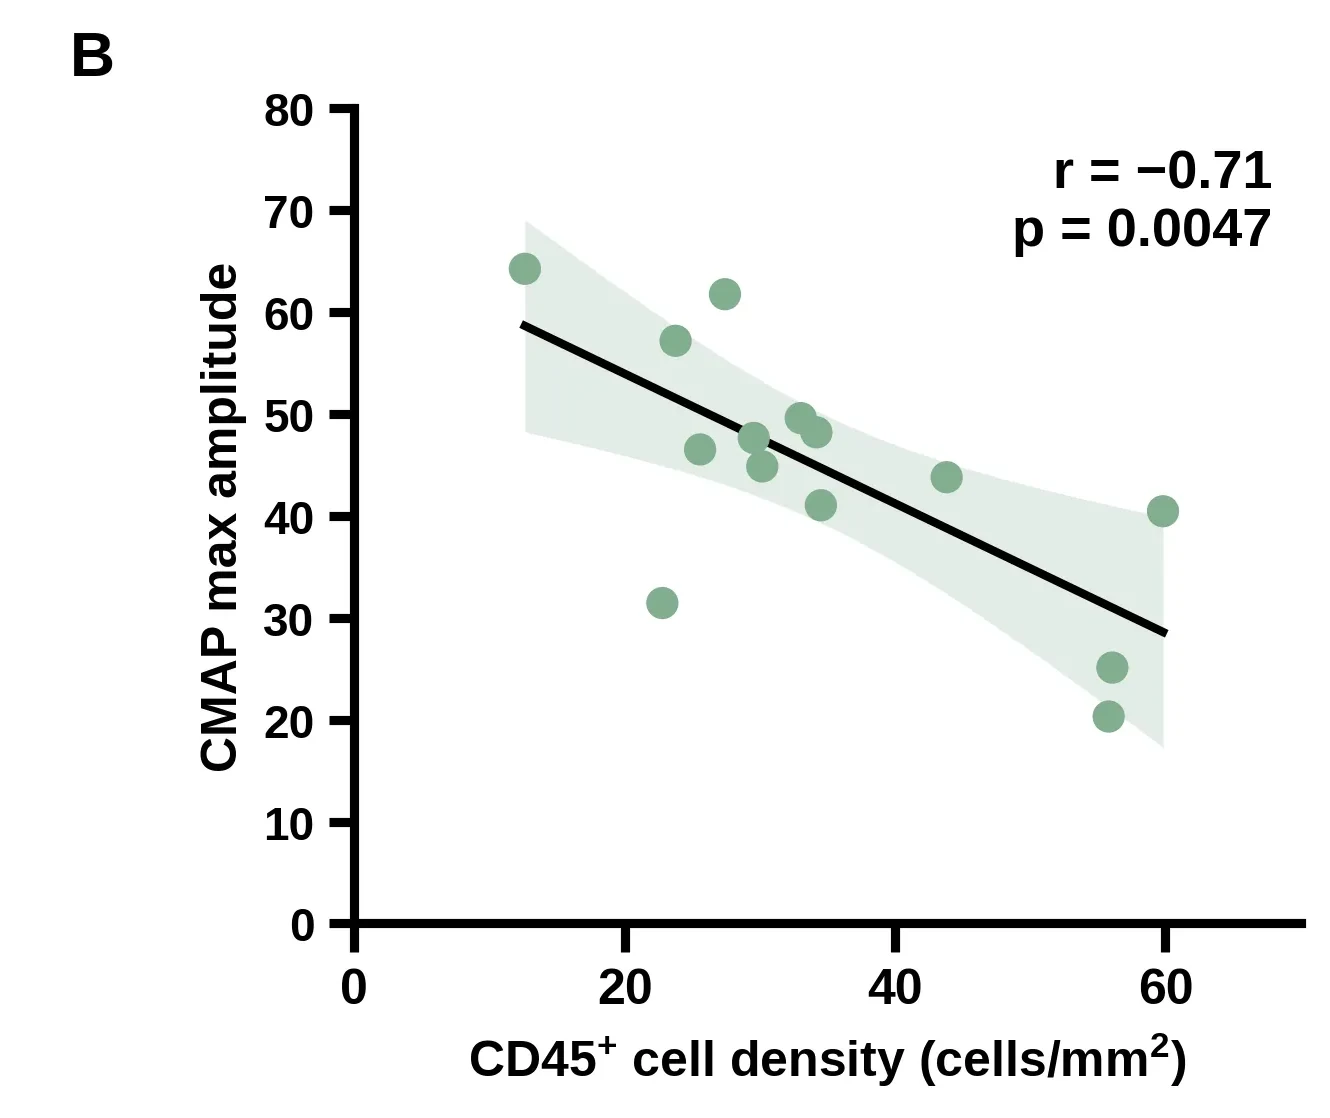
CD45+ 免疫细胞与 CMAP 最大振幅之间也呈现显著的负相关。在低多克索(Low Dox)小鼠中,CD45水平越高,CMAP 最大振幅越低,这反映出功能性神经支配的肌纤维数量减少以及神经肌肉传导受损。

综合来看,这些发现表明,在低多西环素(Low Dox)模型中,肌肉炎症负担的增加既与神经肌肉接头(NMJ)的解剖学去神经化有关,也与电生理功能的衰退有关。

一张散点图,显示了CD45密度与完全去神经化的神经肌肉接头(NMJs)之间存在正相关关系

皮尔逊相关分析显示,CD45密度与完全去神经化的神经肌肉接头(NMJ)的比例之间存在显著的正相关(r = 0.81,p = 0.0004)

一张散点图,显示了CD45密度与CMAP最大振幅之间的正相关关系

皮尔逊相关分析显示,CD45密度与CMAP最大振幅之间存在显著的负相关关系(r = -0.71,p = 0.0047)

利用CD11b对低剂量多西环素小鼠肌肉免疫细胞群进行特征分析

为了进一步鉴定导致CD45信号增强的免疫细胞群,我们对先前展示的CD45染色腓肠肌的连续切片进行了CD11b染色,CD11b是巨噬细胞和其他髓系细胞表达的标志物。 多免疫荧光(mIF)图像显示,CD11b阳性细胞的分布与CD45染色所观察到的模式非常相似,这表明低剂量Dox处理的rNLS8肌肉中的大多数免疫细胞很可能是巨噬细胞或其他髓系细胞群。 然而,由于CD11b特异性标记髓系细胞,我们无法排除其他免疫细胞群(如T细胞或其他淋巴细胞)的存在,这些细胞也可能对整体炎性环境产生影响。

tTA对照组小鼠肌肉中CD11b⁺髓系细胞含量极低

这张多重免疫荧光显微镜图像显示,与CD45染色观察结果相似,tTA对照小鼠的腓肠肌中CD11b⁺细胞分布稀疏。 存在的少量CD11b⁺细胞主要位于肌纤维之间的间质区域,这与正常生理条件下预期存在的低水平髓系细胞一致。

摘要

Low Dox rNLS8小鼠在腓肠肌中再现了早期肌萎缩侧索硬化症(ALS)病理的关键特征,包括渐进性的神经肌肉接点(NMJ)破坏、突触前分支复杂性降低以及轴突投射减少(Lépine,2022)。 Biospective 的 PERMITS™ 分析可对这些结构缺陷进行定量评估,提供关于突触前复杂性、α-BTX–SV2A共定位以及总轴突投射的详细测量数据。

低剂量多克西环素小鼠的肌肉炎症水平升高,其中CD45表达与完全去神经化的神经肌肉接头比例呈正相关,与 CMAP 最大振幅呈负相关。这些发现将免疫激活与结构性去神经化和功能衰退联系起来。

CD11b染色表明,大多数免疫细胞是巨噬细胞和/或其他髓系细胞群。 综合来看,这些结果表明突触退化、轴突病理和局部炎症激活是并行发生的,这凸显了 rNLS8 模型作为研究 ALS 早期神经肌肉接头病理以及评估针对突触和免疫机制的治疗手段的强大平台。

欢迎在查看器中进一步探索显微镜图像。

如果您希望进一步了解该ALS小鼠模型、其特征描述以及我们的神经肌肉接头分析 ,欢迎 联系我们。

https://ispproductionpublic.blob.core.windows.net/media/1e7a4868-236a-40a9-9d44-23d2a0c3437e/1e7a4868-236a-40a9-9d44-23d2a0c3437e
目录
控制面板
栏目: rNLS8 低剂量多西环素
分段
频道

交互式图像展示了Biospective公司“低多西环素”TDP-43ΔNLS(rNLS8)小鼠模型和tTA对照组的高分辨率多重免疫荧光肌肉切片中,CD45⁺和CD11b⁺炎症浸润以及神经肌肉接头去神经化现象。

本报告的编排方式是,每张显微镜图像都与它所对应的测量结果并列呈现:首先是神经肌肉接头(NMJ)的结构,接着是低剂量多西环素(Low Dox)处理组和对照组肌肉中的CD45⁺浸润细胞,然后是去神经化与肌纤维动作电位(CMAP)之间的相关性,最后是CD11b⁺髓系细胞成分。 下文将总结这些结果,并将其置于人类疾病和药物研发的背景下进行探讨。

利用五种标志物多重免疫荧光检测面板和Biospective公司的自动化PERMITS™图像分析系统,对固定冷冻的腓肠肌切片中的肌肉炎症和神经肌肉接头(NMJ)完整性进行了定量分析,其中在连续切片上进行了CD11b染色,并在同一组低剂量多克西环素(Low Dox)处理的动物中记录了肌纤维动作电位(CMAP)。

实验动物。

该研究将 14 只低剂量多西环素 (Low Dox) rNLS8 小鼠与 14 只 tTA 单转基因对照小鼠进行了比较,后者携带 NEFH-tTA 驱动基因,但不携带人类 TDP-43ΔNLS 响应转基因(Biospective 内部数据)。

多重免疫荧光面板。

  • 突触前神经末梢:SV2A

  • 运动轴突和末梢分支:βIII-微管蛋白

  • 突触后乙酰胆碱受体:α-蝮蛇毒素 (α-BTX)

  • 白细胞:CD45(泛免疫细胞标志物)

  • 细胞核:DAPI

  • 髓系细胞(连续切片):CD11b

染色采用本实验室的自动化多重免疫荧光平台进行,并按照本实验室“神经肌肉接头(NMJ)染色与分析服务”页面所述的工作流程,使用载玻片扫描仪对整张切片进行数字化处理。

定量读数。

PERMITS™ 对每个通道进行了分割,并得出了 CD45⁺ 细胞密度(每平方毫米肌肉中的细胞数)、SV2A 信号与 α-BTX 重叠的百分比、突触前分支复杂度以及轴突投射总量。 随后,根据每个神经肌肉接头(NMJ)的 SV2A/α-BTX 重叠情况,将其分类为完全去神经化(0–20%)、部分神经支配(20–80%)或完全神经支配(80–100%), 各分类的密度以终板/mm²表示(Biospective内部分类标准)。

电生理学与统计分析。

通过刺激坐骨神经,记录腓肠肌的最大复合肌肉动作电位(CMAP)振幅。 组间差异采用配对t检验进行检验,结果以均值 ± 标准误(SEM)表示;在低剂量多西环素(Low Dox)组内,CD45⁺密度与神经肌肉接头(NMJ)或CMAP指标之间的关系采用皮尔逊相关分析评估,每只动物记录一个数据点(Biospective内部分析)。

服务

神经肌肉接头(NMJ)染色与分析

基于整体切片分子免疫荧光(mIF)的自动神经支配分类、突触前复杂性及轴突投射。

服务

多重免疫荧光

单张切片上的定制抗体组合(如CD45、CD11b和神经肌肉接头(NMJ)标志物),通过PERMITS™进行定量分析。

服务

CMAP 和 MUNE 电生理学

与您的组织学研究使用同一组动物记录的、与临床情况相符的运动指标。

服务

神经肌肉接头(NMJ)染色与分析

基于整体切片分子免疫荧光(mIF)的自动神经支配分类、突触前复杂性及轴突投射。

服务

多重免疫荧光

单张切片上的定制抗体组合(如CD45、CD11b和神经肌肉接头(NMJ)标志物),通过PERMITS™进行定量分析。

服务

CMAP 和 MUNE 电生理学

与您的组织学研究使用同一组动物记录的、与临床情况相符的运动指标。

是的。低剂量多西环素(Low Dox)处理的rNLS8小鼠腓肠肌中的CD45⁺免疫细胞密度约为tTA对照组的两倍(p < 0.001;图1),这表明存在持续的白细胞浸润,而非基线免疫监视(Biospective内部数据)。
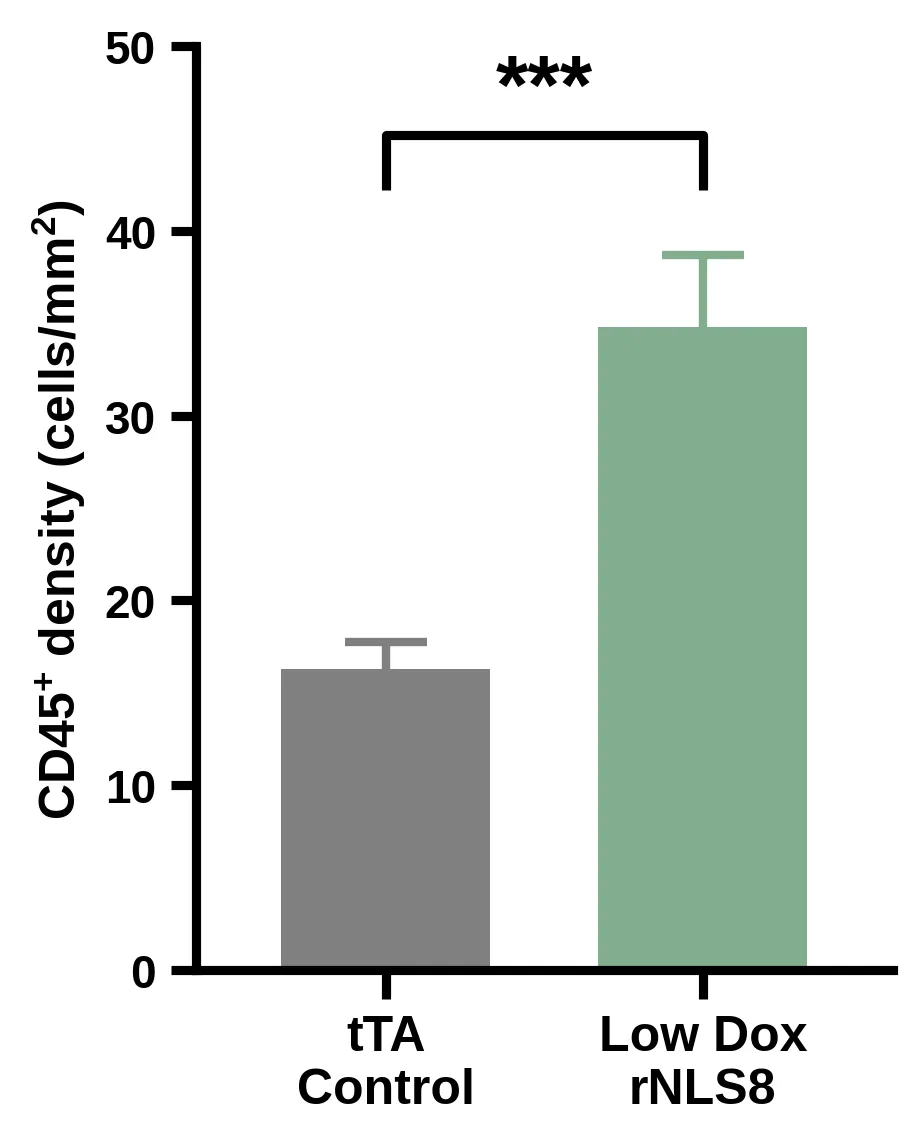
图1. tTA对照组小鼠与低剂量多西环素(Dox)rNLS8组小鼠腓肠肌中CD45⁺免疫细胞密度(细胞/mm²)的比较(每组N=14);均值 ± 标准误(SEM),采用配对t检验, *** p < 0.001。 根据Biospective内部数据,使用内部配色方案重新绘制; 各组均值和标准误(SEM)是从交互式演示文稿中的原始Prism图中数字化提取的。

空间分布模式与细胞数量同样重要。在 tTA 对照组肌肉中,少量存在的 CD45⁺ 细胞主要位于肌纤维之间的间质空间,这符合健康骨骼肌中常驻免疫监视的预期。 在低剂量多西环素(Low Dox)处理的肌肉中,CD45⁺细胞分布于整个切片中,您可通过在 交互式演示中切换rNLS8和tTA切片的CD45通道来确认这一点 。 由于CD45可标记所有白细胞,该指标反映了总炎症负荷;细胞的具体类型则通过下文的CD11b数据进行识别(Biospective内部数据)。当免疫细胞相对于单个终板的具体位置至关重要时,我们的 空间生物学 分析可直接绘制该区域的分布图。

观看

我们如何量化ALS小鼠肌肉中的神经肌肉接头去神经化

请观看这段简短的旁白介绍视频,其中以低剂量多西环素(Low Dox)处理的rNLS8小鼠和tTA对照组腓肠肌为例,详细演示了Biospective的肌肉切片、多重染色、自动分割及神经支配分类流程。

在本视频中,我们将概述我们的神经肌肉接头(NMJ)染色与分析服务。视频中还通过一个ALS小鼠模型中的NMJ去神经化示例,展示了如何利用我们的服务来测量神经退行性变、监测疾病进展,并在临床前研究中评估潜在疗法。

除了炎症浸润外,低剂量多西环素处理的rNLS8小鼠还表现出从完全有神经支配到完全无神经支配的肌神经接头(NMJ)的显著转变,其突触前结构复杂性降低,轴突投射数量也少于tTA对照组(均p < 0.0001;图2和图3; Biospective内部数据)。
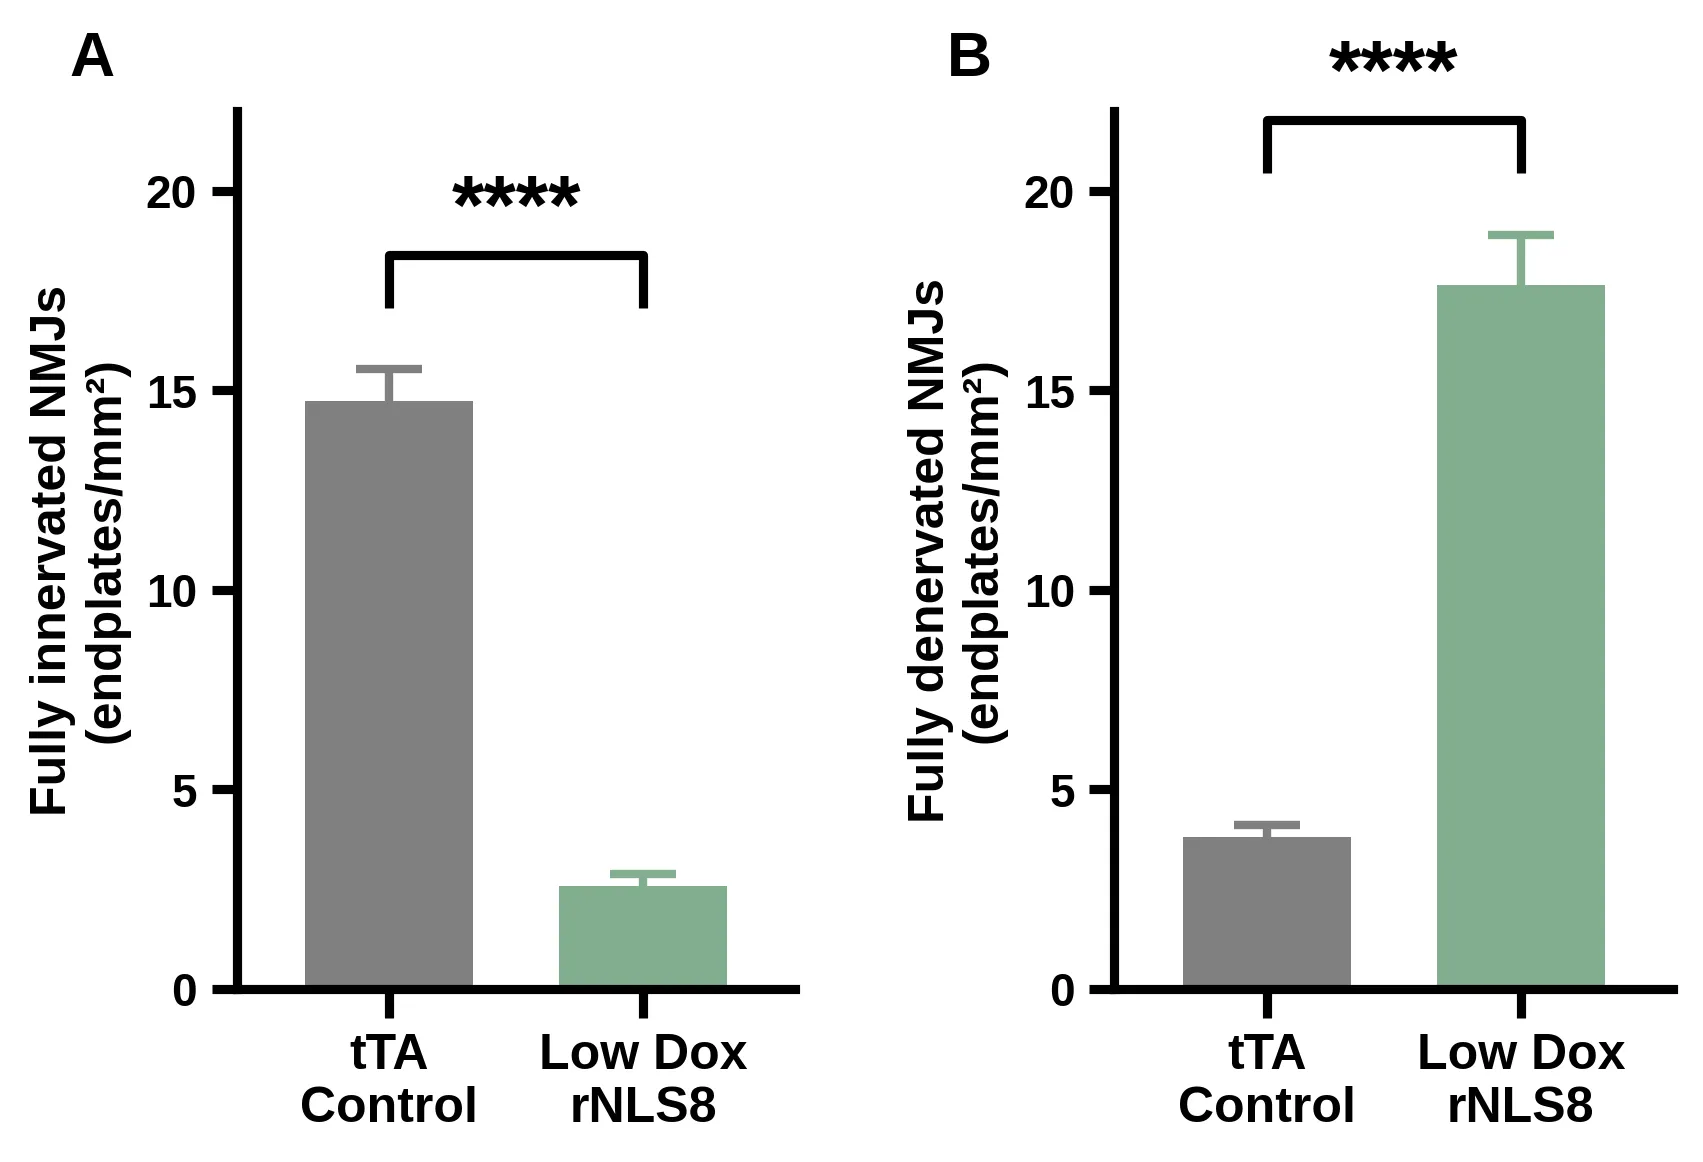
图2. (A) 完全受神经支配的肌神经接头(SV2A与α-BTX重叠率为80–100%)和 (B) 完全去神经支配的肌神经接头 (重叠率为0–20%)的密度(终板/mm²),比较tTA对照组与低剂量多西环素(Dox)处理的rNLS8腓肠肌(每组N=14);均值 ± 标准误(SEM),采用非配对t检验, **** p < 0.0001。 根据 Biospective 内部数据(研究 ID 待确认)使用内部配色方案重新绘制;组均值和标准误差(SEM)是从交互式演示文稿中的原始 Prism 图中数字化提取的。

当某个项目需要同时存在β-淀粉样蛋白和明确的神经退行性病变时,我们会运行一个基于相同ARTE10背景的β-淀粉样蛋白和Tau蛋白共病理模型;此外,我们更广泛的阿尔茨海默病模型组合还能涵盖相关问题。 我们的“小胶质细胞、星形胶质细胞与神经退行性疾病计划”汇总了胶质细胞终点指标背后的研究方法。
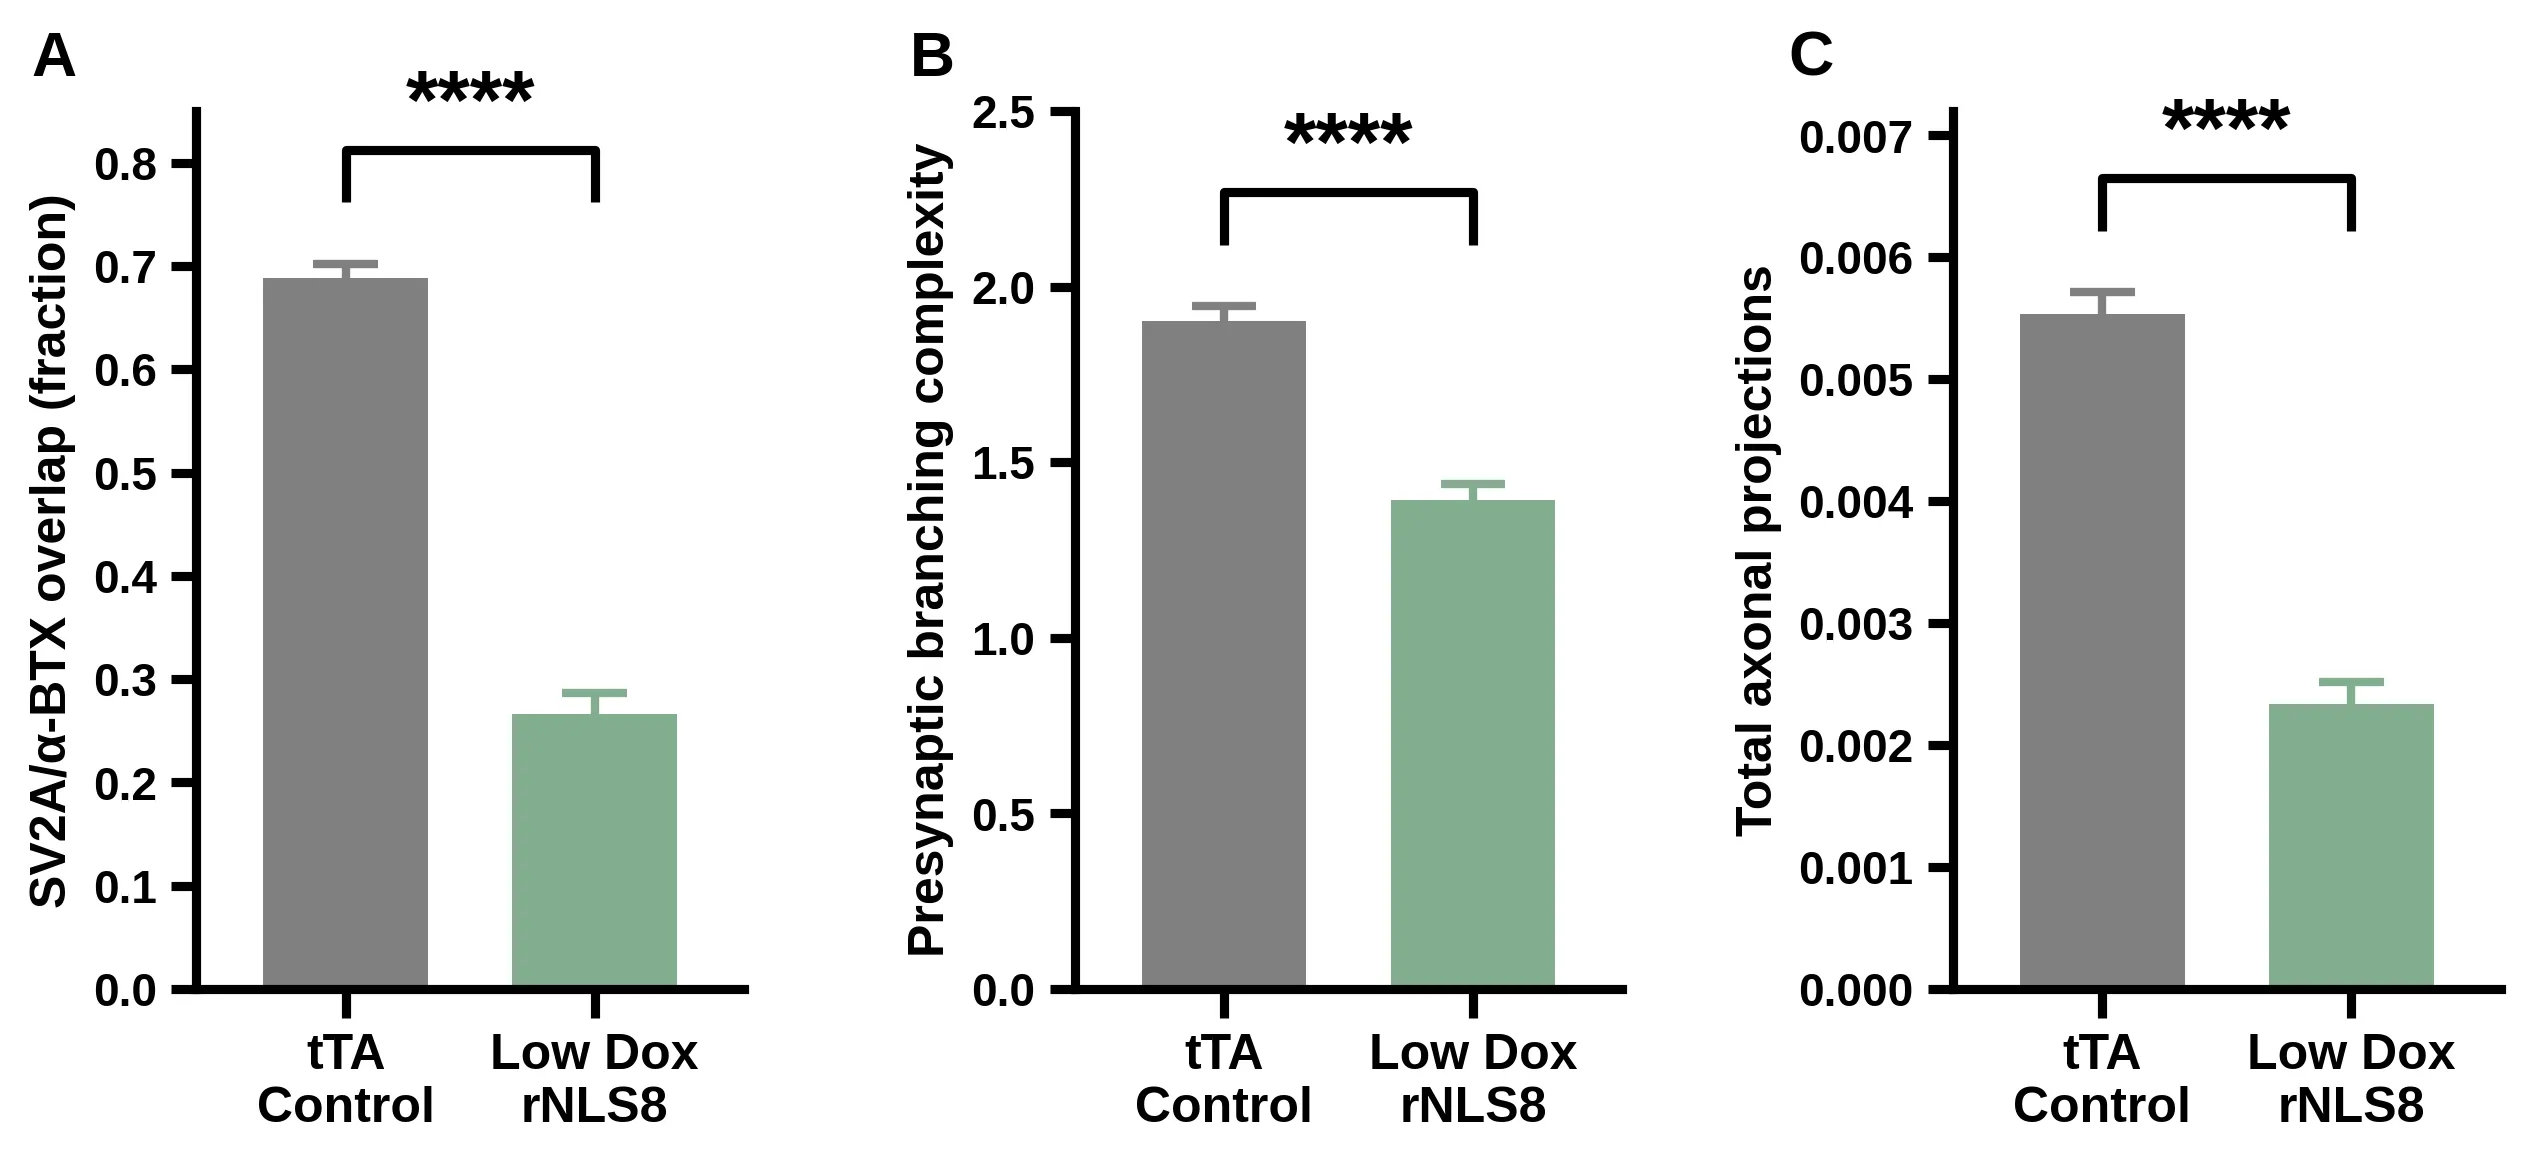
图3.(A) SV2A/α-BTX重叠率(以百分比表示),(B) 突触前分支复杂度以及 (C) tTA对照组与低剂量多西环素(Dox)rNLS8腓肠肌组(每组N=14)的总轴突投射; 均值 ± 标准误(SEM),采用非配对 t 检验, ****均 p < 0.0001。根据 Biospective 内部数据(研究 ID 待确认)使用本机构配色方案重新绘制;组均值和标准误(SEM)是从交互式演示文稿中的原始 Prism 图中数字化提取的。

这些神经肌肉接头(NMJ)的变化再现了 我们在该模型中先前 关于NMJ去神经化研究中描述的去神经化表型 ,并提供了可供逐只动物比较炎症浸润情况的结构性参考指标(Biospective内部数据)。

是的。在14只低剂量多西环素处理的rNLS8小鼠中,CD45⁺细胞密度与完全去神经化的神经肌肉接头(NMJ)密度呈正相关(皮尔逊相关系数r = 0.81,p = 0.0004),并与CMAP最大振幅呈负相关(r = −0.71, p = 0.0047;图4;Biospective内部数据)。
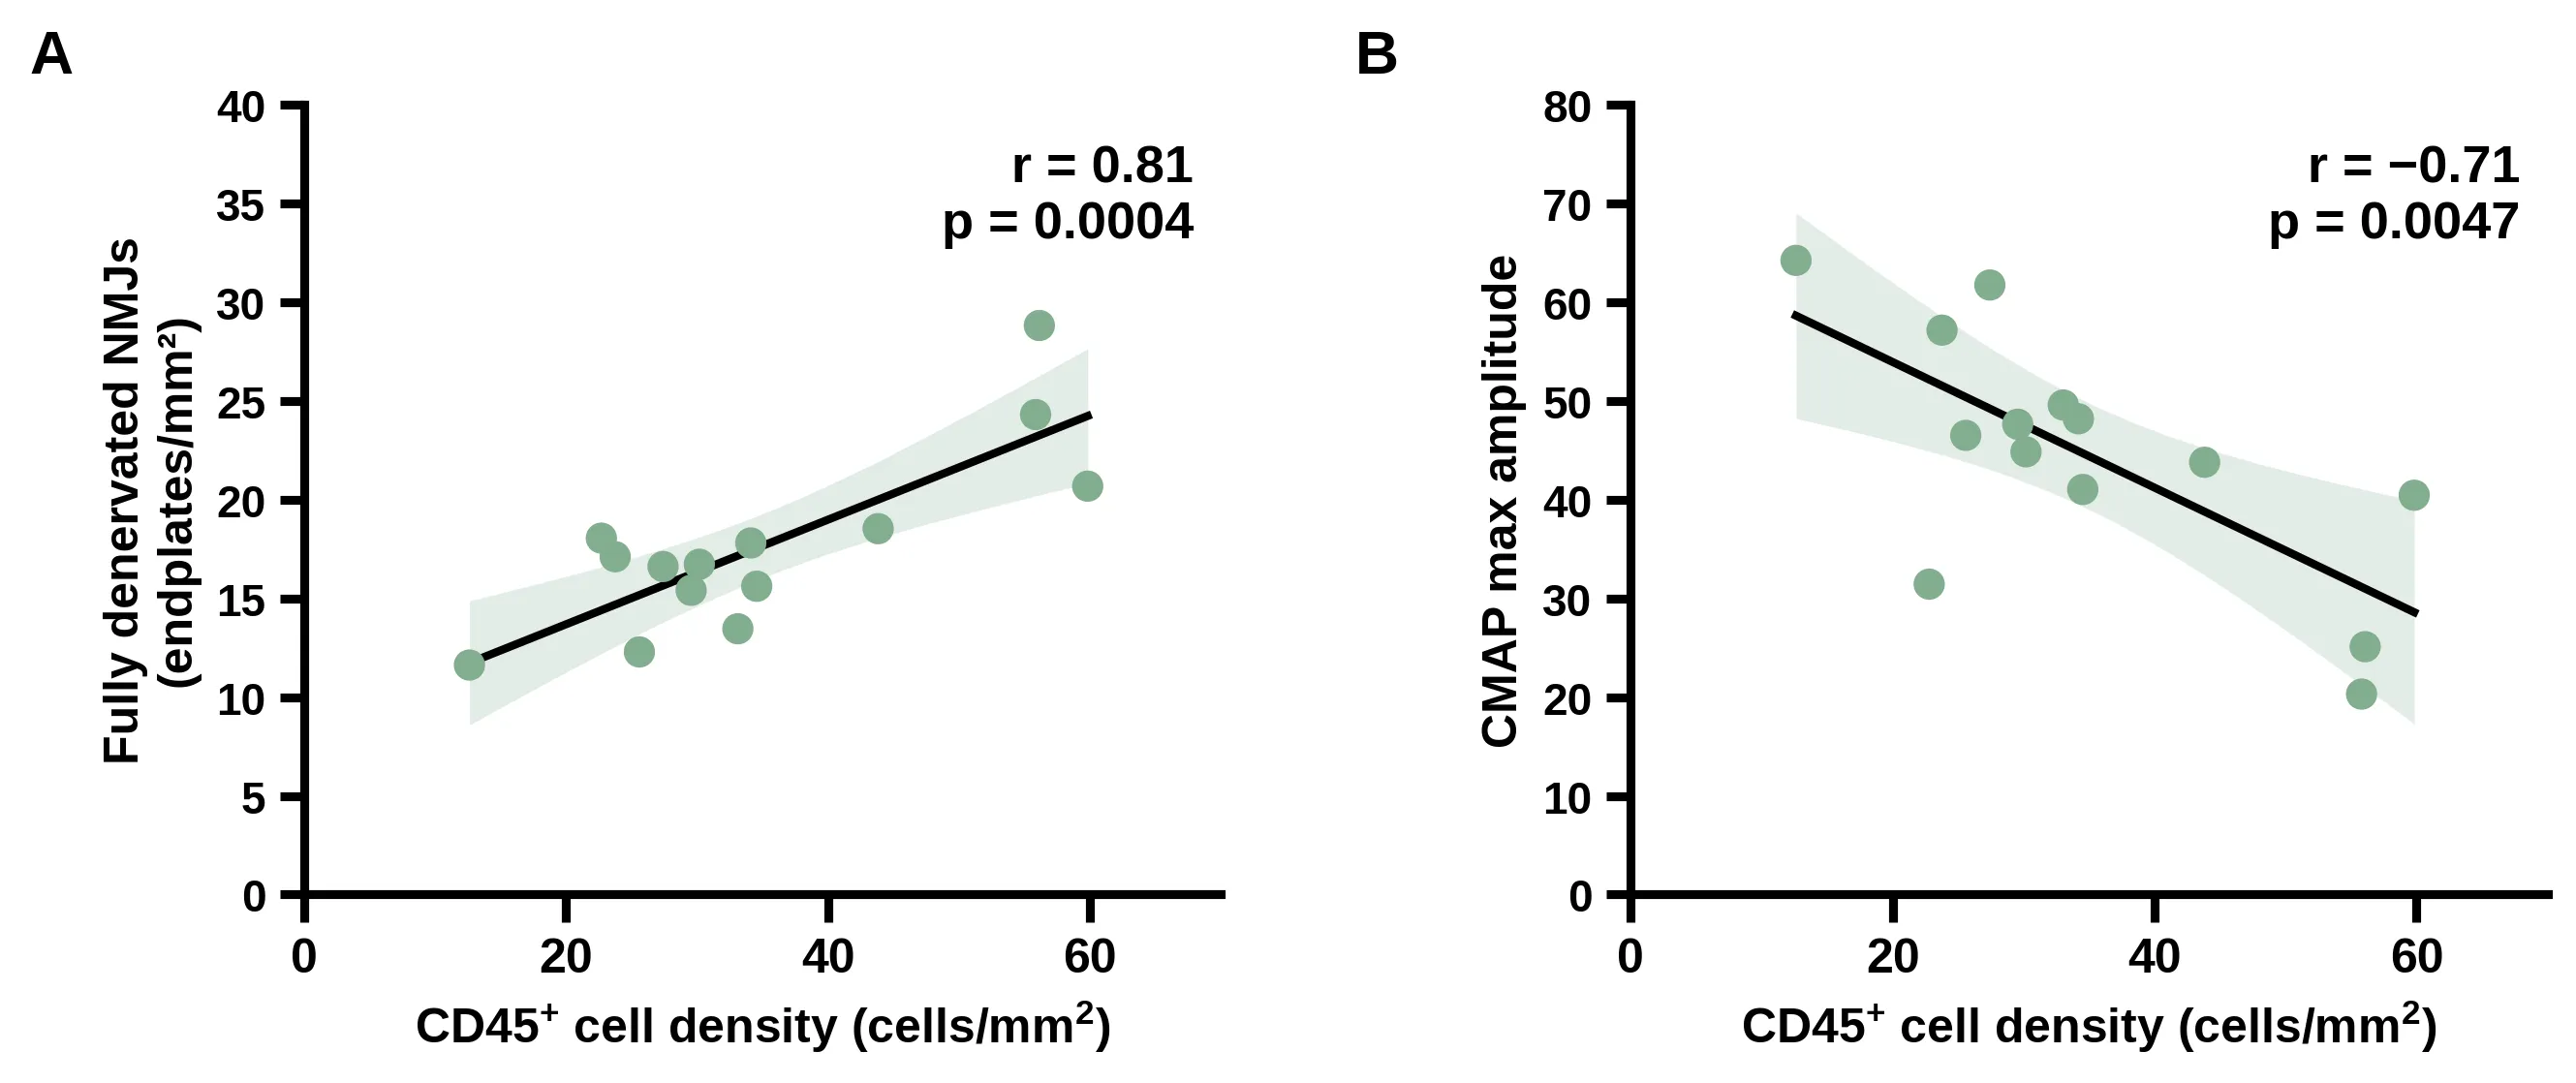
图4。 腓肠肌CD45⁺细胞密度与(A)完全去神经化的神经肌肉接头(NMJ)密度(皮尔逊相关系数r = 0. 81,p = 0.0004)以及(B)CMAP最大振幅(皮尔逊相关系数r = −0.71,p = 0.0047);每个数据点代表一只动物,实线为线性拟合曲线,阴影带为其95%置信区间;r和p值为原始分析报告中的数值。 根据Biospective内部数据(研究ID待确认)使用内部配色方案重新绘制;每只动物的数值是从交互式演示文稿中的原始Prism图中数字化提取的。

这些是组内相关性:它们比较的是低多西环素组动物之间的差异,而非低多西环素组与对照组之间的差异。因此,这些结果表明,炎症负担反映了个体动物神经肌肉疾病的严重程度,而不仅仅是基因型的标志。 将相关系数平方(r² ≈ 0.66 和 0.50)后,CD45⁺ 密度在统计学上与完全去神经化的神经肌肉接头(NMJ)中约三分之二的动物间变异量以及 CMAP 振幅中约一半的变异量相关(Biospective 内部分析)。 将组织学免疫指标与功能性神经支配肌纤维的电生理读数联系起来,正是赋予这种浸润现象其功能意义的关键。

相关性并不能确定因果方向。免疫细胞可能是因去神经化而被招募来清除碎片,也可能促成了去神经化,或者两者兼而有之。 其他模型中的干预研究至少证实了其起到了促进作用:在 hTDP-43 小鼠中,局部抗体治疗在减少白细胞浸润的同时也减轻了神经肌肉接头的去神经化(Nógrádi,2025);在 SOD1 小鼠中,敲除 C5aR1 基因减少了巨噬细胞募集和去神经化 (Wang,2017),而马西替尼在SOD1G93A大鼠中减少了肌肉肥大细胞和巨噬细胞的浸润,并减轻了去神经化(Trias,2017)。 低剂量多西环素(Low Dox)模型因其病情进展较慢,非常适合用于验证TDP-43驱动型疾病的相同因果关系问题。
同一组受试者,多种读出方式
将肌肉免疫学与肌肉功能联系起来

之所以能得出上述相关性,是因为每只实验动物都提供了组织样本和电生理学数据。Biospective 常规将肌肉组织学与后肢肌肉体积的纵向体内 CT 扫描、CMAP 及握力数据相结合,因此您可以观察到浸润性病变的变化是否会影响肌肉的保存及其功能。

CD11b⁺ 髓系细胞(极有可能是巨噬细胞及相关髓系细胞)似乎构成了浸润细胞的主体,因为在紧邻CD45染色切片处的切片上,CD11b染色结果与低剂量多克西环素(Low Dox)处理肌肉中的CD45⁺ 分布高度一致,而在tTA对照组中则分布稀疏 (图5;Biospective内部数据)。
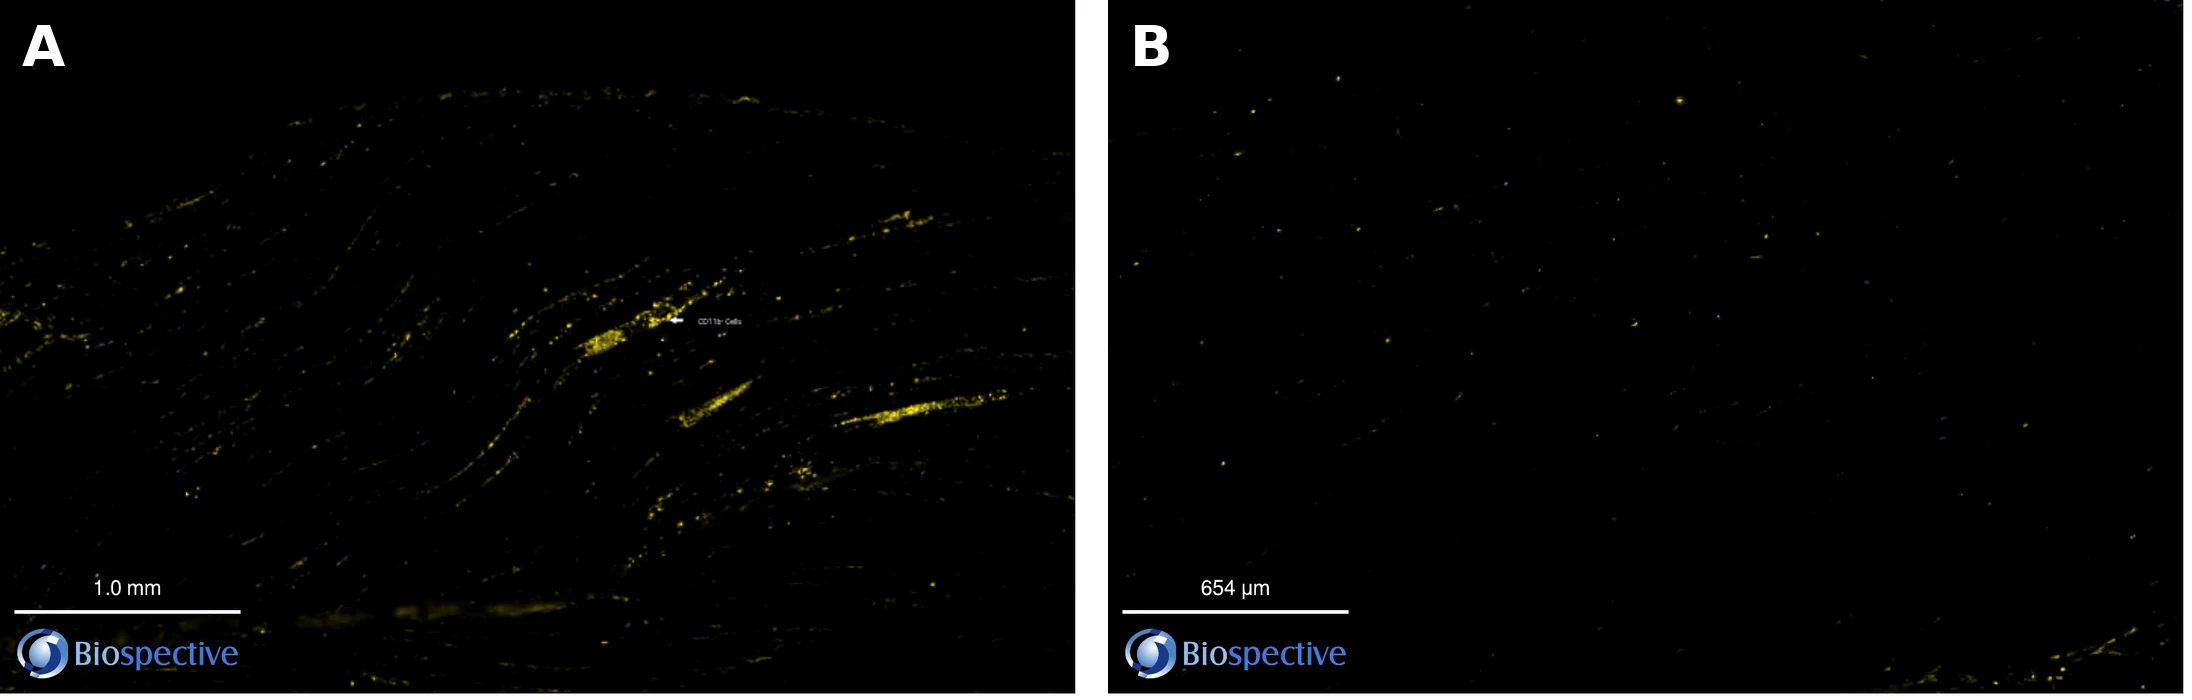
图5. 腓肠肌切片中的CD11b⁺ 髓系细胞(黄色):(A)来自低剂量多克西环素(Low Dox)rNLS8小鼠(比例尺 1.0 mm),该切片与CD45染色切片为连续切片;(B)来自tTA对照小鼠 (比例尺 654 µm)。各图为从交互式演示查看器中以不同放大倍率捕获的静止图像,仅用于定性比较。Biospective 内部数据(研究编号待确认)。

以髓系细胞为主的浸润现象,与ALS患者活检标本和TDP-43小鼠中报道的富含巨噬细胞的肌肉病理学表现一致(Nógrádi,2025),也与SOD1模型中巨噬细胞向去神经化肌肉募集的现象一致(Van Dyke,2016; Wang, 2017)中观察到的巨噬细胞向去神经支配肌肉募集的现象。以下三点局限性决定了这一观察结果的适用范围:

  • 单核细胞、中性粒细胞和某些自然杀伤细胞也会表达CD11b,因此仅凭该标志物无法特异性识别巨噬细胞。

  • 常规 T 细胞和 B 细胞中几乎不表达 CD11b,这可能对 CD45⁺ 细胞群有所贡献,且其具体数量尚待量化。

  • 此处展示的CD11b比较仅为定性分析;每只动物的CD11b密度及其与去神经化之间的关系尚未进行定量分析。

若添加巨噬细胞标志物(F4/80 或 CD68), 区分促炎与促再生状态的极化标志物、中性粒细胞的Ly6G、T细胞的CD3以及CCL2本身,将能解决这些问题(这与我们用于 脑组织小胶质细胞的形态学和表型分析工具包相同 ), 这对结果的解读至关重要,因为促再生型巨噬细胞与疾病进展减缓相关(Margotta, 2023),而肥大细胞和中性粒细胞则被认为与运动神经元轴突变性有关(Trias, 2018)。

服务

髓系细胞和小胶质细胞表型分析

通过细胞密度和形态学分类,区分激活状态与稳态。

服务

空间生物学

绘制免疫细胞相对于各个终板的分布图,而不仅仅是统计其数量。

服务

细胞因子与趋化因子

针对CCL2、IL-1β、TNF-α等物质的超灵敏多重免疫测定法。

服务

髓系细胞和小胶质细胞表型分析

通过细胞密度和形态学分类,区分激活状态与稳态。

服务

空间生物学

绘制免疫细胞相对于各个终板的分布图,而不仅仅是统计其数量。

服务

细胞因子与趋化因子

针对CCL2、IL-1β、TNF-α等物质的超灵敏多重免疫测定法。

低剂量多西环素(Low Dox)rNLS8小鼠的肌肉表型与ALS患者的发现相吻合:ALS患者的肌肉在运动终板附近可见白细胞、巨噬细胞、肥大细胞和中性粒细胞浸润,同时伴有终板去神经化以及运动单位电生理指标的进行性丧失(Bruneteau,2015; Neuwirth, 2015; Trias, 2018; Nógrádi, 2025)。

Low Dox rNLS8小鼠的检测结果与人类ALS的观察结果或测量数据之间的对应关系。

低剂量多西环素(Dox)rNLS8实验结果

人类ALS对应情况

支持性证据

腓肠肌中CD45⁺白细胞密度

患者肌肉活检标本中白细胞和巨噬细胞浸润,在神经肌肉接头(NMJ)丰富的区域尤为显著

Nógrádi,2025

肌肉中的CD11b⁺髓系细胞

沿周围运动神经轴突分布的反应性巨噬细胞;尸检肌肉终板处的肥大细胞和中性粒细胞

Chiot,2020;Trias,2018

完全去神经化的神经肌肉接头(SV2A/α-BTX重叠区)

患者尸检及活检肌肉中的去神经化终板,其末梢树突稀疏

Fischer,2004;Bruneteau,2015

CMAP最大振幅

临床研究中用于追踪下运动神经元丢失的CMAP和MUNIX记录

Neuwirth,2015;Neuwirth,2017

肌肉炎症作为影像学靶点

探索肌肉中TSPO PET信号作为无创炎症生物标志物(迄今为止处于临床前阶段)

Anzilotti,2025

TDP-43在肌肉免疫学中的作用。

几乎所有ALS患者体内都存在胞质TDP-43聚集物,而SOD1突变仅占病例中的一小部分(Hardiman, 2017;Lépine, 2022)。 然而,关于肌肉炎症机制的大部分文献均源自SOD1转基因啮齿类动物模型(Van Dyke, 2016;Trias, 2017;Wang, 2017)。 低剂量多西环素(Low Dox)rNLS8模型提供了一个由TDP-43驱动的研究环境,可在其中测定相同的免疫指标,从而补充了近期在其他TDP-43细胞系中的研究成果(Nógrádi, 2025)。

与临床相关的功能终点。

临床上记录的CMAP振幅采用与小鼠实验相同的原理,而在多中心ALS队列研究中,诸如运动单位数指数(MUNI)等衍生指标在数月内会出现可测量的下降,即使在临床尚未表现为肌无力的肌肉中也是如此(Neuwirth, 2015;Neuwirth, 2017)。 因此,将组织水平的免疫指标与 CMAP 相结合,可为赞助商提供一种临床前读数,该读数与 ALS 临床研究中已使用的电生理指标相对应。

免疫调节疗法已进入ALS临床试验阶段。

针对外周免疫系统的干预并非假设。马西替尼(Masitinib)是一种对肥大细胞和巨噬细胞具有活性的酪氨酸激酶抑制剂,它减少了 SOD1 啮齿类动物的肌肉免疫浸润和去神经化(Trias, 2017;Harrison & Rafuse, 2020),且据报道在某随机ALS试验的预先指定亚组中延缓了功能衰退(Mora, 2020)。调节外周巨噬细胞也延长了ALS小鼠的生存期(Chiot, 2020)。 一种具有可测定肌肉浸润特征的TDP-43模型,为在绝大多数患者共有的病理机制中验证此类作用机制提供了途径。
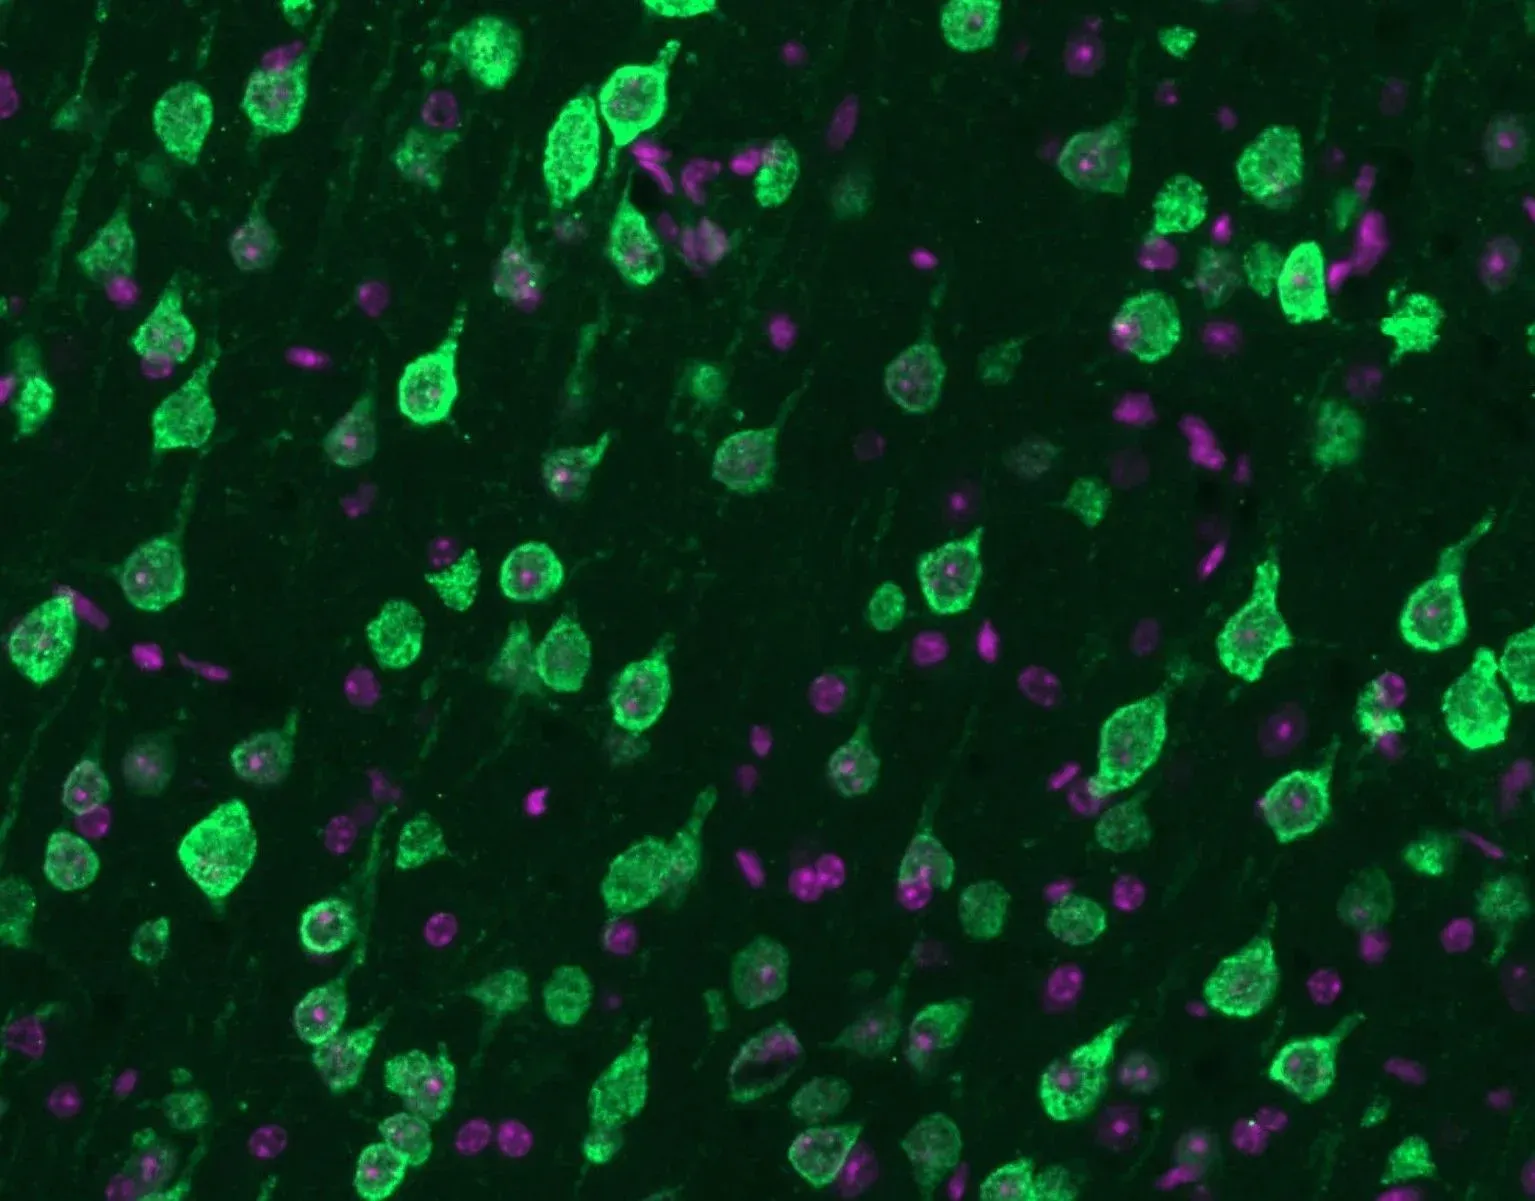
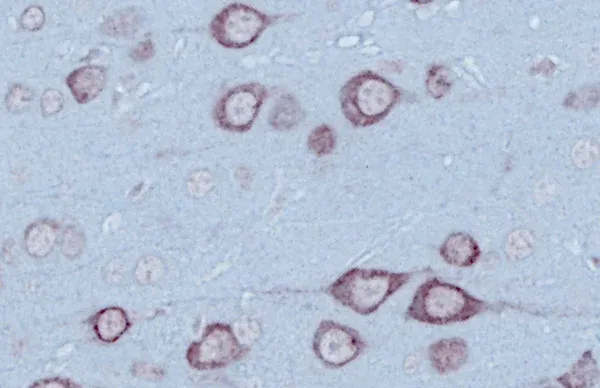
TDP-43(绿色)从细胞核向细胞质发生定位异常,同时可见细胞核(DAPI)(紫色)。

具有临床意义的病理学
基于大多数ALS患者共有的TDP-43病理特征

如图所示,TDP-43在细胞质中的定位异常是几乎所有ALS病例的特征性病变(Lépine,2022)。在TDP-43驱动的模型中测试免疫调节或神经保护候选药物,可使您的临床前数据与主要患者群体保持一致。

当肌肉炎症在同一实验动物中与神经肌肉接头(NMJ)神经支配和复合肌肉动作电位(CMAP)一同进行定量测定时,它既可作为免疫调节性肌萎缩侧索硬化症(ALS)治疗药物的作用机制和靶点结合终点,也可作为任何治疗类别的疾病严重程度衡量指标。

该终点可反映的机制。

  • 趋化因子受体阻断,例如CCL2–CCR2轴(Nógrádi,2025)

  • C5a–C5aR1 位点的补体抑制(Wang,2017)

  • 作用于肥大细胞和巨噬细胞的酪氨酸激酶抑制剂(Trias, 2017;Harrison & Rafuse, 2020)

  • 针对巨噬细胞的靶向递送,例如定位于活化肌肉巨噬细胞的树状大分子偶联物(Tallon,2022)

  • 去神经化肌肉中的基质和细胞因子通路,例如成纤维-成脂前体细胞的STAT3–IL-6信号传导(Madaro,2018)

  • 通过重编程外周巨噬细胞而非耗竭其数量的策略(Chiot, 2020)

一套综合的、基于同一动物的终点评估方案。

由于CD45⁺密度、神经肌肉接头(NMJ)神经支配类别、突触前复杂性及肌纤维动作电位(CMAP)均来自同一组小鼠,因此可直接验证药物诱导的浸润细胞减少是否对突触和肌肉功能产生下游益处,并能区分出通过炎症途径起作用的药物与不涉及炎症而挽救NMJ功能的药物。 这些检测指标可与该模型中已验证的握力、CT肌肉体积、血浆和脑脊液神经丝轻链(NfL)、MRI脑萎缩及脑组织病理学终点指标相结合,并可辅以细胞因子谱分析,具体内容详见我们的TDP-43ΔNLS模型页面。

炎症负担作为协变量。

由于在该队列中,CD45⁺密度占去神经化和CMAP(复合肌肉动作电位)动物间变异的大部分,因此在非免疫疗法研究中,它也可作为协变量或分层变量进行分析,有助于将真实的治疗效果与动物间疾病严重程度的差异区分开来(Biospective内部分析)。

我们与赞助商讨论的设计考量。

  • 给药窗口与途径:采用我们任何给药途径,可选择从诱导期开始的预防性设计,或待去神经化确立后开始的干预性设计。

  • 阳性对照:恢复多西环素可抑制转基因表达,并促进神经再支配和功能恢复,为疾病干预提供基准(Walker,2015)。

  • 表型,而不仅仅是数量:广泛的髓系细胞抑制可能适得其反,因为在小鼠模型中,小胶质细胞支持恢复,且促进再生的巨噬细胞与疾病进展减缓相关(Spiller, 2018;Margotta, 2023),因此建议在免疫调节项目中使用极化标志物。

  • 样本量:在我们此前基于该模型的神经肌肉接头(NMJ)数据集中,估计每组少于15只小鼠即可检测到SV2A–α-BTX重叠度的25%变化;针对CD45⁺终点的等效估计值可从本研究队列中推导得出(Biospective内部数据)。

研究资助方将获得整切片图像数据、每只动物的定量指标以及神经肌肉接头分类图,如需研究切片的交互式演示,可另行提出请求。

与BIOSPECTIVE建立合作伙伴关系
准备好在低剂量多西环素(Low Dox)rNLS8模型中测试您的ALS治疗药物了吗?

  • Biospective 拥有内部 rNLS8 育种群,可快速启动研究并建立大型研究队列

  • 低剂量多西环素(Low Dox)治疗的进展速度较慢,从而扩大了检测疾病修饰效果的时间窗口

  • 在多种给药途径下,拥有小分子、抗体、反义寡核苷酸、基因疗法及肽类药物的丰富研究经验

  • 来自同一组动物的肌肉炎症、神经肌肉接头(NMJ)神经支配、肌动作电图(CMAP)、CT、握力、NfL、MRI及脑病理学数据

  • 全切片、交互式图像呈现,如本页展示所示

在Biospective公司的Low Dox rNLS8小鼠腓肠肌中,CD45⁺免疫细胞的密度约为tTA对照组的两倍,这些细胞似乎主要为CD11b⁺髓系细胞,且伴有明显的肌神经接头去神经支配和轴突病变(Biospective内部数据)。 在 Low Dox 组动物中,炎症负荷与完全去神经化的神经肌肉接点以及 CMAP 振幅呈正相关,这表明浸润与神经肌肉的结构和功能衰退之间存在关联。 这些发现与目前在ALS患者肌肉中记录到的白细胞和巨噬细胞浸润现象相吻合(Nógrádi, 2025),并将肌肉炎症确立为ALS临床前治疗药物研发中具有转化医学意义且能揭示作用机制的终点指标。欢迎探索我们完整的ALS小鼠模型产品组合,以及我们的 小胶质细胞、星形胶质细胞与神经退行性变研究计划。

常见问题解答

ALS患者会出现肌肉炎症吗?

是的。来自ALS患者的肌肉活检样本中含有浸润的白细胞和巨噬细胞,而尸检肌肉样本显示,肥大细胞和中性粒细胞聚集在运动终板附近。 这些免疫细胞聚集在神经肌肉接头失去神经末梢的同一区域,因此肌肉炎症被视为导致去神经化的潜在因素,而不仅仅是其结果。


ALS的rNLS8 TDP-43小鼠模型会出现肌肉炎症吗?

是的。在Biospective公司的Low Dox rNLS8小鼠中,腓肠肌内CD45阳性免疫细胞的密度约为tTA对照组小鼠的两倍。这些浸润细胞分布于整个肌肉组织中,而对照组小鼠的肌肉中仅含有少量间质免疫细胞,这与正常的免疫监视相一致。


CD45染色在骨骼肌中测定的是什么?

CD45是一种泛白细胞标志物,因此CD45染色基本上可标记所有源自造血系统的免疫细胞,包括巨噬细胞、单核细胞、中性粒细胞和淋巴细胞。 将结果表示为每平方毫米肌肉中的CD45阳性细胞数,可为每只动物提供一个单一且可比的总炎症负荷指标。


肌肉炎症与ALS小鼠的CMAP振幅之间有何关联?

在低剂量多西环素处理的rNLS8小鼠中,腓肠肌内CD45阳性细胞数量较多的动物,其最大CMAP振幅较低,两者之间的皮尔逊相关系数约为-0.71。 由于CMAP振幅反映了对神经刺激产生反应的肌纤维数量,这表明肌肉中的炎症负担与运动神经支配功能丧失之间存在关联。


哪些免疫细胞浸润了低剂量多西环素处理的rNLS8小鼠的肌肉?

大多数浸润细胞似乎是髓系细胞(如巨噬细胞),因为相邻切片上的CD11b染色模式与CD45的分布模式高度一致。由于淋巴细胞中几乎不表达CD11b,因此T细胞或其他淋巴细胞也可能存在,需要借助其他标志物进行定量分析。


肌肉炎症能否作为ALS药物临床前研究的终点指标?

是的。肌肉中CD45阳性细胞的密度既可作为免疫调节疗法的作用机制指标,也可作为其他药物类别的疾病严重程度衡量指标。 若在同一组动物中同时测定该指标、神经肌肉接头(NMJ)神经支配情况及肌纤维动作电位(CMAP),则能获得最丰富的信息,从而可验证炎症的减轻是否对突触和肌肉功能产生下游益处。


Low Dox 和 Off Dox 型号的 rNLS8 之间有什么区别?

一旦停用或减少多西环素的用量,这两种模型都会在神经元中表达具有缺陷核定位信号的人源TDP-43。传统的“停用多西环素”(Off Dox)模型在数周内逐渐发展,而Biospective公司的“低剂量多西环素”(Low Dox)模型则在数月内逐渐发展,从而提供了更宽泛的治疗窗口期,以便检测疾病修饰性药物的疗效。


参考文献

Alhindi, A., Shand, M., Smith, H.L., Leite, A.S., Huang, Y.T., van der Hoorn, D., 里奇韦(Ridgway),Z.,法勒(Faller),K.M.E.,琼斯(Jones),R.A.,吉林沃特(Gillingwater),T.H.,查托(Chaytow),H. 肌萎缩侧索硬化症hTDP-43过表达小鼠模型中的神经肌肉接头去神经化及终末施万细胞丢失。《神经病理学与应用神经生物学》, 49: e12925,2023;doi:10.1111/nan.12925

安齐洛蒂(Anzilotti),S.;德·伊耶苏(De Iesu),N.;加尔吉乌洛(Gargiulo),S.;迪·穆拉格利亚(Di Muraglia),N.;奇卡蒂埃洛(Cicatiello),A.G.;登蒂切(Dentice),M.;帕尼科(Panico),M.;阿尔巴内塞(Albanese),S.;安农齐亚托(Annunziato),L.; 萨尔瓦托雷(Salvatore),M.,皮尼亚塔罗(Pignataro),G.,帕帕塔(Pappatà),S. TSPO表达及[18F]DPA-714 PET/CT成像作为SOD1-G93A ALS小鼠骨骼肌纤维退化症状期中的病理发生和诊断生物标志物。 《FASEB J.》,39: e71129,2025;doi:10.1096/fj.202502450R

Bruneteau, G., Bauché, S., Gonzalez de Aguilar, J.L., Brochier, G., Mandjee, N., Tanguy, M.L., Hussain, G., 贝汉(Behin),A.,基亚米(Khiami),F.,萨里亚利(Sariali),E.,赫尔-雷米(Hell-Remy),C.,萨拉查斯(Salachas),F.,普拉达(Pradat),P.F.,拉孔布莱兹(Lacomblez),L.,尼科尔(Nicole),S., Fontaine, B., Fardeau, M., Loeffler, J.P., Meininger, V., Fournier, E., Koenig, J., Hantaï, D. 肌萎缩侧索硬化症患者中,终板去神经化与Nogo-A肌肉表达相关。《临床与转化神经病学年鉴》,2: 362–372, 2015; doi:10.1002/acn3.179

Chiot, A., Zaïdi, S., Iltis, C., Ribon, M., Berriat, F., Schiaffino, L., Jolly, A., de la Grange, P., Mallat, M., Bohl, D., Millecamps, S., Seilhean, D., Lobsiger, C.S., Boillée, S. 调节外周巨噬细胞可改变小胶质细胞的反应性并延长ALS患者的生存期。《自然·神经科学》, 23: 1339–1351, 2020; doi:10.1038/s41593-020-00718-z

Fischer, L.R., Culver, D.G., Tennant, P., Davis, A.A., Wang, M., 卡斯特利亚诺-桑切斯(Castellano-Sanchez),A.,汗(Khan),J.,波拉克(Polak),M.A.,格拉斯(Glass),J.D. 肌萎缩侧索硬化症是一种远端轴突病变:小鼠和人类的证据。《实验神经学》, 185: 232–240, 2004; doi:10.1016/j.expneurol.2003.10.004

哈迪曼(O.)、阿尔-查拉比(A.)、基奥(A.)、科尔(E.M.)、洛格罗西诺(G.)、罗贝雷赫特(W.)、肖(P.J.)、西蒙斯(Z.)、范登伯格(L.H.)。肌萎缩性侧索硬化症。《自然评论:疾病入门》,3:17071,2017;doi:10.1038/nrdp.2017.71

Harrison, J.M., Rafuse, V.F. 肌肉纤维类型特异性终末施万细胞病理导致SOD1G93A小鼠在部分去神经化后出现神经突起生成缺陷。《神经生物学与疾病》 ,145: 105052, 2020; doi:10.1016/j.nbd.2020.105052

Lépine, S., Castellanos-Montiel, M.J., Durcan, T.M. 肌萎缩侧索硬化症中的TDP-43调节失常和神经肌肉接头破坏。《转化神经退行性疾病》,11: 56, 2022; doi:10.1186/s40035-022-00331-z

Madaro, L., Passafaro, M., Sala, D., Etxaniz, U., Lugarini, F., Proietti, D., Alfonsi, M.V., Nicoletti, C., 加托(Gatto),S.,德巴尔迪(De Bardi),M.,罗哈斯-加西亚(Rojas-García),R.,乔尔达尼(Giordani),L.,马里内利(Marinelli),S.,帕利亚里尼(Pagliarini),V.,塞特(Sette),C., 萨科(Sacco),A.,普里(Puri),P.L. 纤维-脂肪生成前体细胞中由去神经化激活的STAT3–IL-6信号通路促进肌纤维萎缩和纤维化。《自然·细胞生物学》,20: 917–927, 2018; doi:10.1038/s41556-018-0151-y

Margotta, C., Fabbrizio, P., Ceccanti, M., Cambieri, C., Ruffolo, G., D'Agostino, J., Trolese, M.C., Cifelli, P., Alfano, V., Laurini, C., 斯卡里卡马扎(Scaricamazza),S.,费里(Ferri),A.,索拉鲁(Sorarù),G.,帕尔马(Palma),E.,英吉莱里(Inghilleri),M.,本多蒂(Bendotti),C.,纳尔多(Nardo),G. 免疫介导的肌生成和乙酰胆碱受体聚集促进ALS小鼠模型中疾病的缓慢进展。 《炎症与再生》(Inflamm. Regen.),43: 19, 2023; doi:10.1186/s41232-023-00270-w

Mora, J.S., Genge, A., Chio, A., Estol, C.J., Chaverri, D., Hernández, M., Marín, S., Mascias, J., Rodriguez, G.E., Povedano, M., 帕伊帕(Paipa),A.,多明格斯(Dominguez),R.,加梅斯(Gamez),J.,萨尔瓦多(Salvado),M.,卢内塔(Lunetta),C.,巴利亚里奥(Ballario),C.,里瓦(Riva),N.,曼德里奥利(Mandrioli),J.,穆西(Moussy),A.,基内特(Kinet),J.P.,奥克莱尔(Auclair),C., 杜布鲁伊(Dubreuil, P.)、阿诺德(Arnold, V.)、曼斯菲尔德(Mansfield, C.D.)、埃尔米内(Hermine, O.)。马西替尼作为肌萎缩侧索硬化症患者利鲁唑的辅助治疗:一项随机临床试验。《肌萎缩侧索硬化症》 额颞叶退行性病变, 21: 5–14, 2020; doi:10.1080/21678421.2019.1632346

莫雷诺-加西亚,L.,米亚纳-梅纳,F.J.,莫雷诺-马丁内斯,L.,德拉托雷,M., 卢内塔(Lunetta),C.,塔尔拉里尼(Tarlarini),C.,萨拉戈萨(Zaragoza),P.,卡尔沃(Calvo),A.C.,奥斯塔(Osta),R. 肌萎缩侧索硬化症(ALS)骨骼肌中的炎症小体:NLRP3作为潜在生物标志物。《国际分子科学杂志》,22: 2523, 2021; doi:10.3390/ijms22052523

Neuwirth, C., Barkhaus, P.E., Burkhardt, C., Castro, J., Czell, D., de Carvalho, M., Nandedkar, S., 斯塔尔贝格(Stålberg),E.,韦伯(Weber),M. 运动单位数量指数(MUNIX)可检测肌萎缩侧索硬化症无症状期肌肉中的运动神经元丢失。《临床神经生理学》, 128: 495–500, 2017; doi:10.1016/j.clinph.2016.11.026

Neuwirth, C., Barkhaus, P.E., Burkhardt, C., Castro, J., Czell, D., de Carvalho, M., Nandedkar, S., Stålberg, E., Weber, M. 利用运动单位数量指数(MUNIX)追踪肌萎缩侧索硬化症中六组肌肉的运动神经元丢失:一项为期15个月的纵向多中心试验。《神经病学、神经外科与精神病学杂志》,86: 1172–1179, 2015; doi:10.1136/jnnp-2015-310509

诺格拉迪(Nógrádi),B.,莫尔纳尔(Molnár),K.,克里斯托夫(Kristóf),R.,霍尔瓦特(Horváth),O.,黄(Huang),Y.T.,里奇韦(Ridgway),Z.,埃利塞圭(Elicegui),A.,富埃尔特斯-阿尔瓦雷斯(Fuertes-Alvarez),S., 阿隆索-马丁(Alonso-Martin),S.,塞贝尼(Szebeni),G.J.,盖梅斯(Gémes),N.,拉马丹(Ramadan),A.,史密斯(Smith),H.L.,克里兹拜(Krizbai),I.A.,帕泰(Patai),R.,西克洛斯(Siklós),L., 克利维尼(Klivényi),P.;查托(Chaytow),H.;吉林沃特(Gillingwater),T.H. CCL2–CCR2轴驱动肌萎缩侧索硬化症中的神经肌肉去神经支配。《自然-通讯》,16: 7053, 2025; doi:10.1038/s41467-025-62351-3

谢夫纳,J.M.,穆萨罗,A.,吴,S.T.,卢内塔,C.,斯泰恩,F.J.,罗比泰尔,R.,德卡瓦略,M.,鲁特科夫,S., Ludolph, A.C., Dupuis, L. 肌萎缩侧索硬化症中的骨骼肌。《大脑》,146: 4425–4436, 2023; doi:10.1093/brain/awad202

斯皮勒(Spiller),K.J.;雷斯特雷波(Restrepo),C.R.;汗(Khan),T.;多米尼克(Dominique),M.A.;方(Fang),T.C.;坎特(Canter),R.G.;罗伯茨(Roberts),C.J.;米勒(Miller),K.R.;兰索霍夫(Ransohoff),R.M.;特罗亚诺夫斯基(Trojanowski),J.Q., 李, V.M.-Y. 在TDP-43蛋白病小鼠模型中,小胶质细胞介导的与ALS相关的运动神经元变性恢复。《自然·神经科学》, 21: 329–340, 2018; doi:10.1038/s41593-018-0083-7

塔隆(Tallon),C.;夏尔马(Sharma),A.;张(Zhang),Z.;托马斯(Thomas),A.G.;吴(Ng),J.;朱(Zhu),X.;多诺霍(Donoghue),A.;舒尔特(Schulte),M.;乔(Joe),T.R.;坎班帕蒂(Kambhampati),S.P.;夏尔马(Sharma),R.; Liaw, K., Kannan, S., Kannan, R.M., Slusher, B.S. 树状大分子-2PMPA可延缓肌萎缩侧索硬化症小鼠模型中的肌肉功能丧失和去神经化。《神经治疗学》,19: 274–288, 2022; doi:10.1007/s13311-021-01159-7

Trias, E., Ibarburu, S., Barreto-Núñez, R., Varela, V., Moura, I.C., Dubreuil, P., Hermine, O., Beckman, J.S., Barbeito, L. 证据表明肥大细胞参与了遗传性肌萎缩侧索硬化症(ALS)模型中的神经肌肉病理过程。《JCI Insight》,2: e95934, 2017; doi:10.1172/jci.insight.95934

Trias, E., King, P.H., Si, Y., Kwon, Y., Varela, V., Ibarburu, S., Kovacs, M., Moura, I.C., Beckman, J.S., Hermine, O., 巴贝托(Barbeito),L. 肥大细胞和中性粒细胞介导肌萎缩侧索硬化症(ALS)中周围运动通路的退化。《JCI Insight》,3: e123249,2018;doi:10.1172/jci.insight.123249

范·戴克(Van Dyke, J.M.)、斯密特-奥伊斯特德(Smit-Oistad, I.M.)、马克兰德(Macrander, C.), 克拉科拉(Krakora),D.,迈耶(Meyer),M.G.,铃木(Suzuki),M. 家族性肌萎缩侧索硬化症(ALS)大鼠模型中骨骼肌内巨噬细胞介导的炎症和胶质细胞反应。《实验神经学》, 277: 275–282,2016;doi:10.1016/j.expneurol.2016.01.008

Walker, A.K., Spiller, K.J., Ge, G., Zheng, A., 徐,Y.,周,M.,特里帕蒂,K.,邝,L.K.,特罗亚诺夫斯基,J.Q.,李,V.M.-Y. 清除病理性胞质TDP-43后,ALS/FTLD新小鼠模型的功能恢复。《神经病理学杂志》, 130: 643–660, 2015; doi:10.1007/s00401-015-1460-x

Wang, H.A., Lee, J.D., Lee, K.M., 伍德拉夫(Woodruff),T.M.,诺克斯(Noakes),P.G. 补体C5a–C5aR1信号传导驱动肌萎缩侧索硬化症hSOD1G93A小鼠模型中骨骼肌巨噬细胞的招募。 《骨骼肌》(Skelet. Muscle),7: 10,2017;doi:10.1186/s13395-017-0128-8


关键词

α-邦加毒素(α-BTX):一种蛇毒,能以高亲和力与乙酰胆碱受体结合;经荧光标记后,可标记神经肌肉接头(NMJ)的突触后运动终板。

CD11b:一种主要由巨噬细胞、单核细胞和中性粒细胞等髓系细胞表达的整合素亚单位,用于识别组织中的髓系免疫细胞。

CD45:一种存在于几乎所有白细胞表面的细胞表面磷酸酶,用作泛免疫细胞标志物以测定总炎性细胞负荷。

复合肌动作电位(CMAP):肌肉对其运动神经超最大强度刺激所产生的综合电反应;其振幅反映了功能性受神经支配的肌纤维数量。

βIII-微管蛋白:一种神经元特异性微管蛋白同工型,用于显影投射至神经肌肉接头(NMJ)的运动轴突及其末梢分支。

低多西环素 rNLS8 模型:Biospective 公司开发的 rNLS8 小鼠低多西环素诱导模型,可诱导 TDP-43 病理变化以更缓慢的速度发展(持续数月),适合用于治疗研究。

神经肌肉接头(NMJ):运动神经元末梢与骨骼肌纤维之间的突触,负责将神经冲动转化为肌肉收缩。

神经肌肉接头去神经支配:突触前神经末梢与突触后终板之间接触的丧失;此处定义为 SV2A 与 α-BTX 信号重叠率为 0–20%。

PERMITS™:Biospective公司专有的软件平台,用于全片显微镜图像的自动分割和定量分析。

rNLS8(TDP-43ΔNLS)小鼠:一种多西环素调控的双基因小鼠,其神经元中表达具有缺陷核定位信号的人源TDP-43,导致细胞质内TDP-43病理变化及类似肌萎缩侧索硬化症(ALS)的神经肌肉退行性变。

SV2A:突触小泡糖蛋白 2A,一种用于标记神经肌肉接头(NMJ)处运动神经末梢的突触前小泡蛋白。

tTA对照小鼠:仅携带NEFH-tTA驱动基因的单转基因同窝小鼠,其不携带人类TDP-43ΔNLS转基因,用作对照组。


更多信息

请告诉我们您感兴趣的内容。我们的团队很乐意与您探讨!

请发送电子邮件至 [email protected] 或填写并提交以下表格。

姓名*
电子邮件*
调查目的*
所属单位(公司/机构)*
留言内容*

我们非常重视您的隐私。我们将按照隐私声明中的规定保护您的数据。

我同意隐私声明的条款*

我们使用必要的cookie来确保网站正常运行。我们还使用其他cookie来衡量您使用网站的情况或用于营销目的,从而帮助我们进行改进。您可以选择全部接受或全部拒绝。关于我们使用的cookie的详细信息,请参阅我们的隐私声明。