


PSP的AAV-Tau小鼠模型中的神经炎症
一项研究,旨在量化Biospective公司用于渐进性核上性麻痹的AAV-hTau (2N4R) 小鼠模型中的星形胶质细胞增生、小胶质细胞增生及促炎性细胞因子。

研究报告摘要
简而言之:我们对Biospective公司建立的进行性核上性麻痹(PSP)AAV-Tau小鼠模型中的胶质细胞反应性和炎症细胞因子蛋白浓度进行了定量分析,从而解决了tau病变模型中一个常被推断而非直接测量的方面。 将表达人类野生型2N4R塔乌蛋白的腺相关病毒(AAV)载体注射到C57BL/6小鼠的左侧黑质致密部(SNc),并将AAV空载体注射到对侧黑质; 对照组小鼠接受双侧AAV空载体注射,并在注射后6周对大脑进行分析。同侧中脑、SNc和网状黑质(SNr)中的GFAP和Iba-1染色密度显著增加,其中SNc中这两种标志物的增加幅度最大。 神经炎症谱分析显示,包括IL-1β、IL-2和IL-6在内的多种细胞因子水平显著升高,而IL-4、IL-10和KC/GRO则无显著变化。综合来看,这些发现表明存在区域性集中的胶质细胞反应,并伴有选择性的炎症细胞因子变化。 IL-1β、IL-2和IL-6水平的升高也与PSP患者的研究结果一致(Dey, 2026;Rydbirk, 2019),这支持将这些神经炎症指标用作AAV-Tau模型中的转化性终点。
4.3x
黑质致密部(SNc)中的Iba-1小胶质细胞增生
3.5倍
黑质致密部(SNc)中的GFAP星形胶质细胞增生
12倍
中脑组织中的IL-1β
第 6 页,共 9 页
细胞因子水平显著升高
4.3x
黑质致密部(SNc)中的Iba-1小胶质细胞增生
3.5倍
黑质致密部(SNc)中的GFAP星形胶质细胞增生
12倍
中脑组织中的IL-1β
第 6 页,共 9 页
细胞因子水平显著升高
注射后第6周,与AAV阴性对照组相比的倍数变化。跳转至研究设计 ›
本研究背后的模型
PSP 和 CBD 的 AAV-Tau 小鼠模型
将人类野生型2N4R塔乌蛋白递送至黑质,可在较短时间内引发4R塔乌病理、多巴胺能神经元丧失、神经炎症以及帕金森样运动功能障碍。我们的全面表征数据、交互式显微镜观察、磁共振成像(MRI)及行为学数据均可在该模型页面查阅。
本研究背后的模型
PSP 和 CBD 的 AAV-Tau 小鼠模型
将人类野生型2N4R塔乌蛋白递送至黑质,可在较短时间内引发4R塔乌病理、多巴胺能神经元丧失、神经炎症以及帕金森样运动功能障碍。我们的全面表征数据、交互式显微镜观察、磁共振成像(MRI)及行为学数据均可在该模型页面查阅。
在进行性核上性麻痹中,神经炎症为何如此重要?
PSP中的神经炎症并非偶然发现:它在解剖学上集中于退行性病变区域,能提供超出临床评分量表范围的预后信息,且与遗传学因素有关。综合来看,这些发现支持将胶质细胞和细胞因子指标纳入PSP的临床前研究,而非仅将其视为描述性指标。
PSP是一种以皮层下病变为主的4R型tau蛋白病
PSP是一种散发性神经退行性疾病,主要表现为姿势不稳和跌倒、垂直上核性眼球运动麻痹、轴向强直以及额叶执行功能障碍(Höglinger,2017)。 从神经病理学角度看,过度磷酸化4重复tau蛋白在神经元中积聚,在少突胶质细胞中以螺旋体形式存在,在星形胶质细胞中则表现为簇状星形胶质细胞。 tau病理变化遵循一种典型的解剖学顺序:早期累及丘脑下核、苍白球和黑质(SN),随后累及纹状体、小脑齿状核和皮层(Kovacs,2020)。 这种分布对模型选择具有直接影响:与PSP相关的啮齿类动物模型应能显示中脑的tau病理,而不是仅依赖于海马体或大脑皮层的发现。
胶质细胞反应性与区域性变性相关
将神经炎症与PSP病理联系起来的证据既来自尸检组织研究,也来自活体成像。对HLA-DR染色的尸检图像分析发现,与对照组相比,PSP和皮质基底节变性(CBD)患者的小胶质细胞活化程度更高。 在小鼠模型中,小胶质细胞负荷与tau负荷呈正相关,尽管作者指出,在脑干中这种关系较弱(Ishizawa & Dickson, 2001)。 TSPO PET研究同样显示基底节、中脑和额叶区域的信号增强(Gerhard, 2006),且有报告指出在PSP-理查德森综合征(PSP-RS;Passamonti, 2018)。尸检验证表明,PSP中的TSPO信号主要反映小胶质细胞病理而非星形胶质细胞病理,并与CD68阳性的吞噬性小胶质细胞负荷相关(Wijesinghe, 2025)。
关于这些测量所涉及的标志物和受体的背景信息:
关于小胶质细胞的作用机制,学界尚未达成一致
尽管有证据表明PSP患者的小胶质细胞活性增加,但尸检结果并不完全一致,其他免疫反应也可能起到一定作用。 在包括PSP在内的FTLD-tau皮层中,CD16是唯一显著升高的小胶质细胞标志物,且显著的亚组增加发生在MAPT突变携带者中,而非PSP患者中(Hartnell,2024)。 在黑质(SN)中,PSP 组与对照组之间的 Iba-1 表达无显著差异,而 CD3+ 和 CD4+ T 细胞密度则明显更高(Backman,2025)。 中脑中的 CD8+ T 细胞也被描述为 PSP 的一个显著特征(Couto,2025),且神经炎症特征可能因HLA单倍型而异(Forrest,2026)。 综合来看,这些发现表明小胶质细胞活化仅是PSP炎症反应的一个组成部分,其作用可能取决于疾病阶段、解剖区域以及个体的免疫特征。
星形胶质细胞通过两种可区分的机制参与其中
要解释 PSP 中的星形胶质细胞变化,需要将星形胶质细胞的 tau 病理与常规的反应性星形胶质细胞增生区分开来。GFAP 阳性胶质增生的分布与簇状星形胶质细胞的分布没有重叠,这支持了将这两种过程区分开来的观点(Togo & Dickson,2002)。 与此同时,已有研究报道在PSP-RS患者中,¹H-MRS测得的肌醇水平及血浆GFAP水平均升高,且尽管前扣带回仅存在轻微的tau蛋白沉积,但仍观察到反应性星形胶质细胞(Hirata, 2024)。 因此,基于GFAP的检测结果主要用于评估反应性星形胶质细胞增生,不应被解释为PSP特征性病理——绒毛状星形胶质细胞tau病理的直接证据。
细胞因子主要集中在 IL-1β 和 IL-6 上
除了胶质细胞反应性之外,人类研究还提供了 PSP 中炎症细胞因子调节失调的证据,其中 IL-1β 和 IL-6 在组织和体液研究中反复出现。 与阿尔茨海默病或对照组织相比,PSP患者黑质(SN)中的IL-1β转录本水平显著更高(Fernández-Botrán,2011),而PSP患者前额叶皮层中的IL-2蛋白水平则有所升高(Rydbirk,2019)。 体液研究的结果因对照组和样本类型的不同而有所差异: 与帕金森病相比,PSP和MSA患者的脑脊液中TNF-α、IL-1β和IL-6水平升高,但与对照组相比无显著差异(Starhof, 2018);而有研究报道,与对照组相比,PSP患者的血浆中IL-1β和IL-6水平升高(Dey, 2026)。 细胞因子模式还因PSP表型和生物体液的不同而存在差异,研究显示PSP-RS患者的IL-1β和IL-6水平通常较低(Madetko-Alster, 2023)。 尽管存在这种变异性,这些发现表明炎症通路最终汇聚于 NF-κB和NLRP3炎性小体,这为在PSP前临床模型中同时检测细胞因子蛋白水平和胶质细胞反应性提供了机制依据。
细胞因子通路相关资源:
神经炎症可预测预后,但并非单向关系
神经炎症还可能为疾病进展和生存情况提供信息。使用¹¹C-PK11195PET测量的基线脑干和小脑神经炎症可预测PSP评分量表(PSPRS)的后续变化,而仅靠MRI体积测量则无法做到这一点(Malpetti,2021)。皮质下TSPO信号和血浆NfL水平与PSP患者的生存期缩短相关(Shapiro, 2025),且在调整基线疾病严重程度后,外周促炎谱也与生存期相关(Malpetti, 2025)。 然而,这些关联并非一成不变:TSPO信号与4重复tau病变的进展无相关性(Palleis,2021),而在β-淀粉样蛋白阴性的CBS患者中,全脑TSPO-PET信号越高,临床进展越慢(Palleis,2024)。这些发现提醒我们,不应武断地认为降低胶质细胞活化必然能改善临床预后。相反,必须通过匹配的检测指标来验证神经炎症的治疗意义。
遗传学研究指向胶质细胞,但不仅限于小胶质细胞
一项整合了细胞类型特异性表观基因组、转录组和组织学数据的大型PSP全基因组关联研究表明,胶质细胞活化和补体系统(包括新发现的风险基因C4A)与突出的少突胶质细胞信号有关(Farrell, 2024)。 鉴于抗tau免疫疗法虽已证实能与靶点结合却未带来临床获益,这种对PSP生物学更广泛的认识尤为重要: gosuranemab 降低了脑脊液中游离的 N 端 tau 蛋白水平(Dam, 2021),而 tilavonemab 虽显示出在脑脊液中与靶点结合的证据,但满足了预先设定的无效性标准(Höglinger, 2021)。 综合来看,这些发现支持在研究tau病理的同时,也应探索胶质细胞和免疫通路,并采用能够再现相关解剖特征且能直接测量由此产生的胶质细胞反应的临床前模型。
参见我们的资源: 神经退行性疾病中的小胶质细胞、星形胶质细胞与tau蛋白
视频 1: 60 秒速览本研究 。研究设计、GFAP 和 Iba-1 的定量分析、中脑九种分析物的细胞因子谱,以及 PSP 的 AAV-Tau 小鼠模型中患者与模型的读出映射。
 点击复制链接
在Biospective的AAV-Tau模型中,神经炎症是如何诱导和测量的?
通过配备自动微注射器的数字立体定向装置,将编码人类野生型2N4R微管蛋白的AAV载体(AAV-Tau)立体定向注射到年轻成年C57BL/6小鼠的左侧黑质致密部(SNc)。 对侧黑质致密部(SNc)则注射了缺乏tau转基因的AAV-null载体,从而可在同一只小鼠体内对表达tau的半球与对照半球进行比较。对照组小鼠则注射AAV-null载体代替AAV-Tau。在注射后6周处死动物之前, 对其进行了纵向行为测试和活体 MRI扫描 。 在研究终点,分别采用多重免疫荧光法检测GFAP和Iba-1,以评估星形胶质细胞和小胶质细胞的反应性,随后使用Biospective专有的PERMITS™显微镜图像分析平台进行定量图像分析。 通过超灵敏多重免疫测定法,测定了同侧和对侧中脑匀浆中的细胞因子和趋化因子浓度。
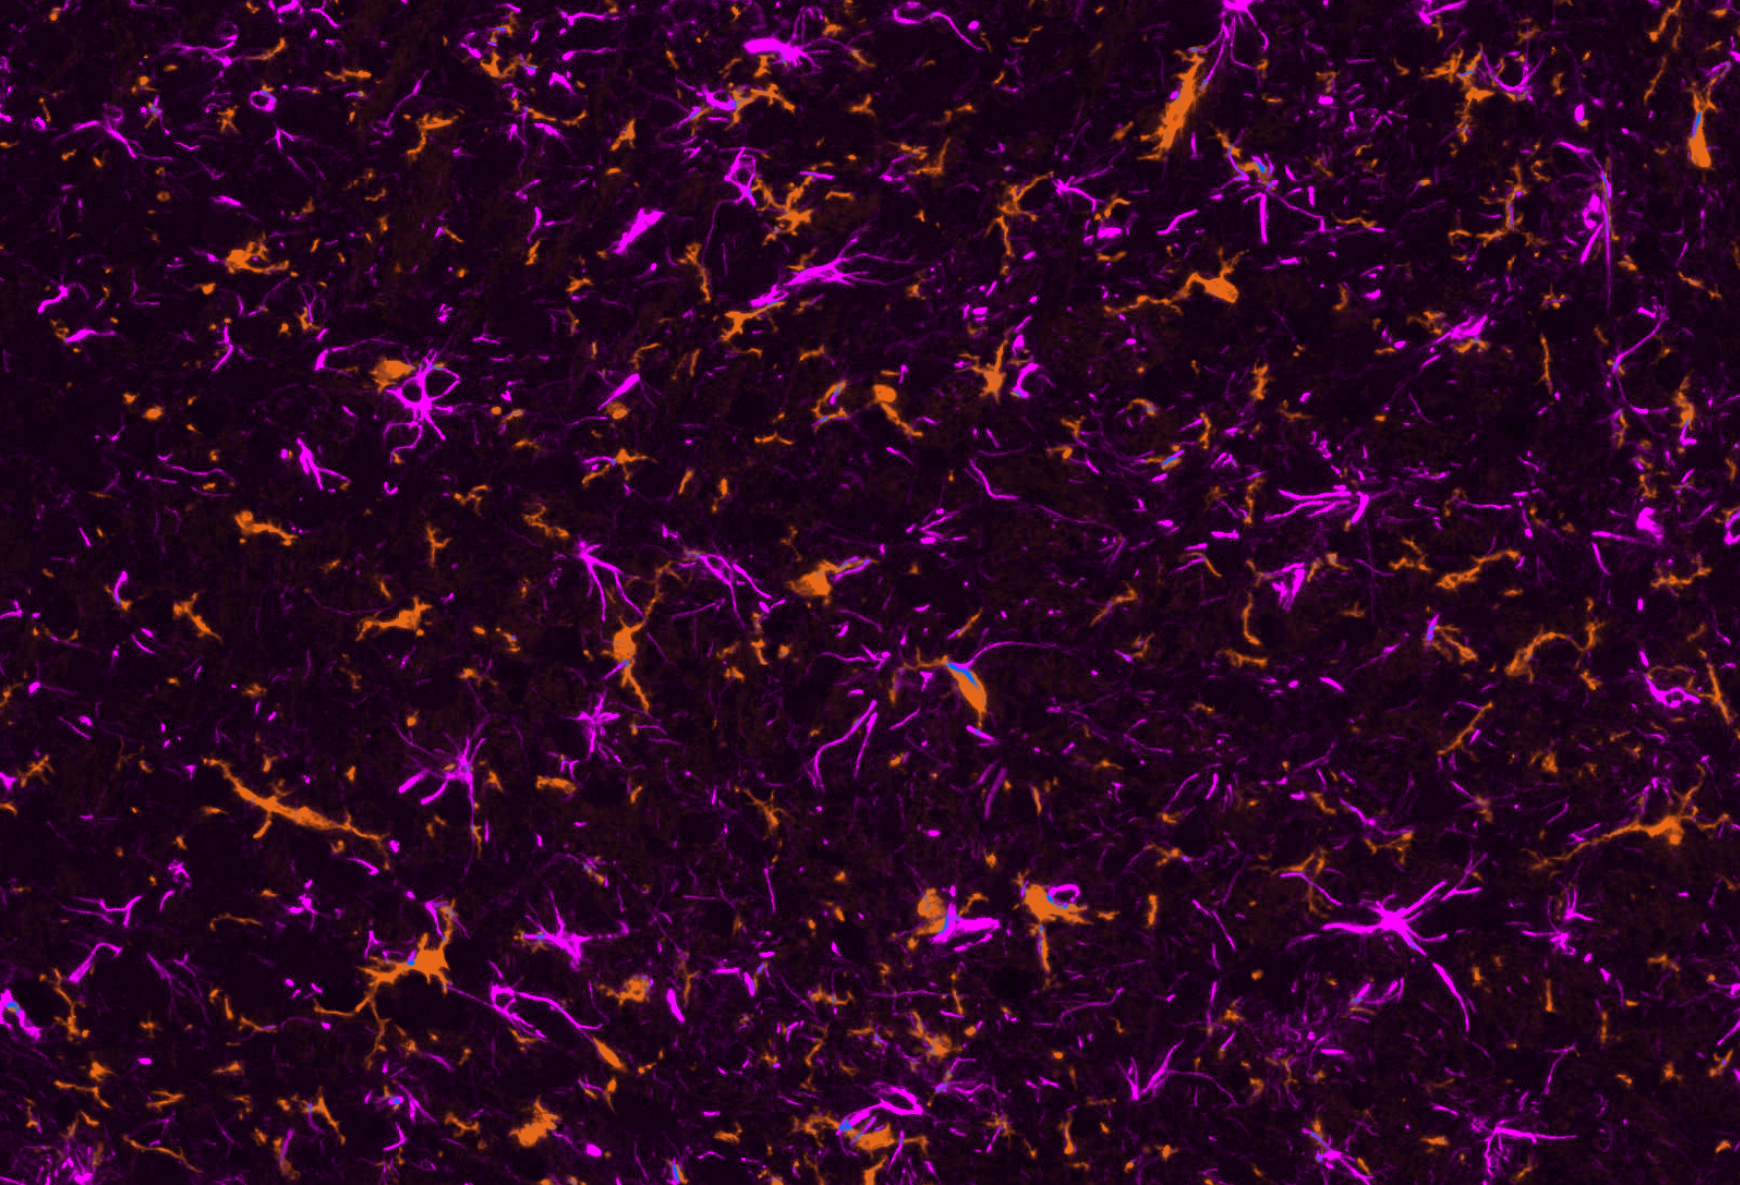
AAV-Tau小鼠注射后的黑质致密部(SNc)中,Iba-1(小胶质细胞,橙色)与GFAP(星形胶质细胞,紫色)的双免疫荧光染色。胶质细胞信号集中在tau蛋白表达最高的区域。
胶质细胞反应所呈现的表型
到第6周时,AAV-Tau小鼠在观察到的炎症反应之外,还表现出黑质纹状体退化的若干特征。这些特征包括黑质神经元中磷酸化且构象发生改变的tau蛋白、黑质纹状体(SNc)中酪氨酸羟化酶 (TH)阳性神经元的丧失,伴随纹状体多巴胺能神经元脱髓鞘;7T MRI扫描显示中脑黑质致密部(SNc)、中脑和纹状体出现显著同侧萎缩;脑脊液和血浆中NfL水平升高;以及在圆柱平衡、旋转杆、尾悬摆和后肢抓握测试中出现运动功能障碍。 因此,神经炎症的评估是在已确立的黑质-纹状体病理和功能缺陷的背景下进行的,而非孤立进行。这为解读胶质细胞和细胞因子测定结果提供了更广泛的背景。
如需了解该模型的完整特性描述(包括我们的交互式显微镜演示),请参阅:
在AAV-Tau模型中,星形胶质细胞增生程度增加了多少?
与AAV阴性对照组相比,同侧半球中脑的GFAP阳性染色密度增加了2.7倍,SNc增加了3.5倍,SNr增加了1.6倍。 在任何对侧区域均未观察到显著差异。这种区域梯度表明,最强烈的星形胶质细胞反应发生在SNc(靠近tau蛋白注射部位),而周围区域的增加幅度较小。
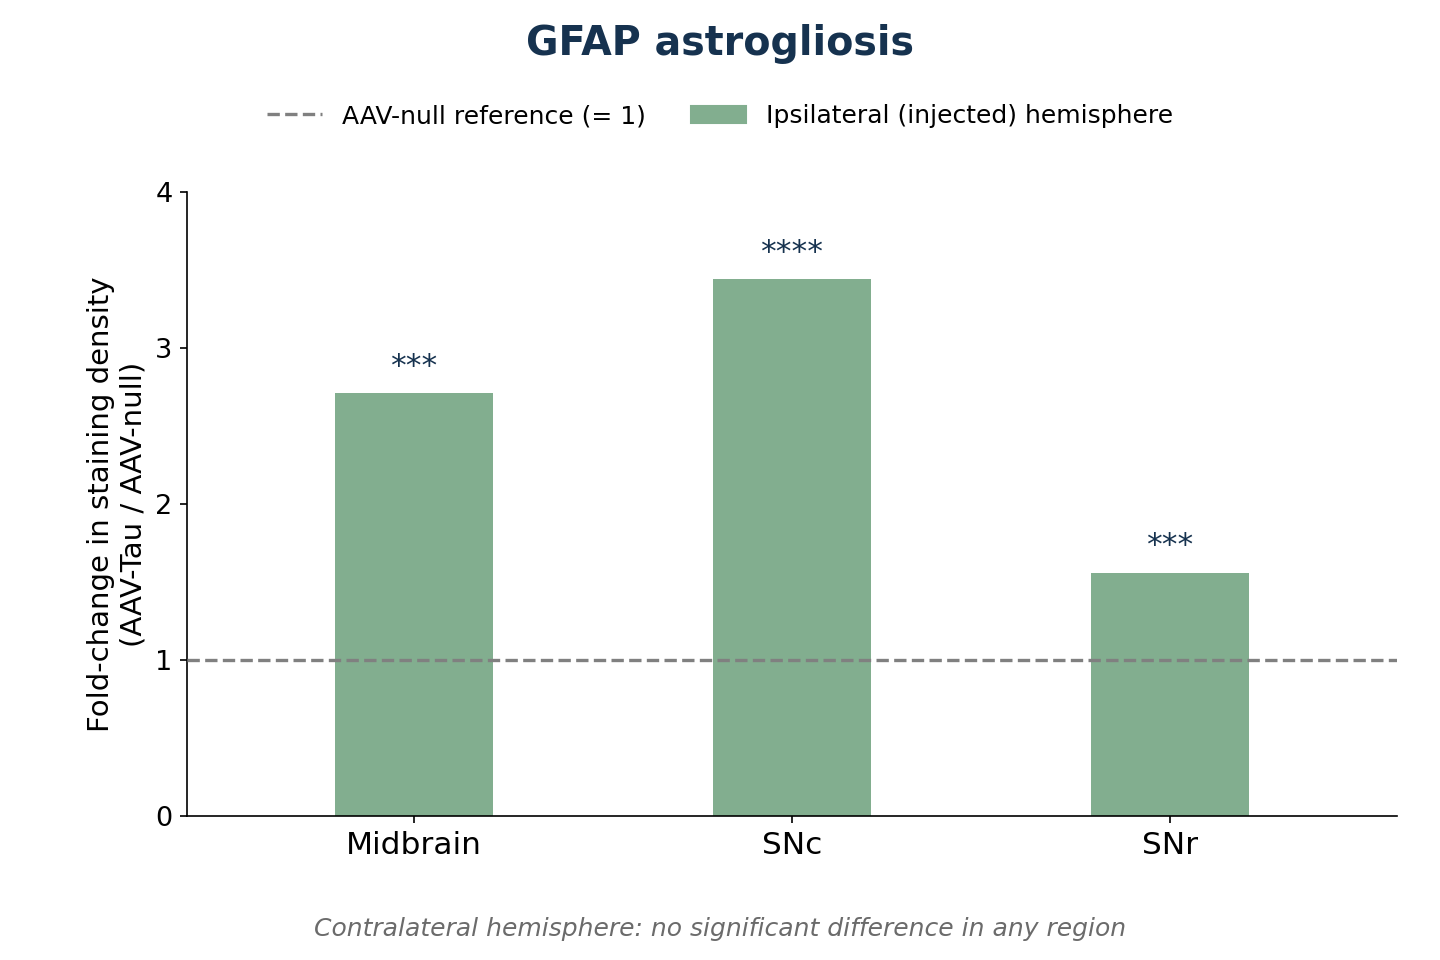
AAV-Tau小鼠中GFAP阳性染色密度,以相对于同一区域AAV-null对照组的倍数变化表示,其中AAV-null值设为1。 同侧(注射AAV-Tau或AAV-null)半球;每个区域AAV-null组n = 12,AAV-Tau组n = 13;基于均值的倍数变化,采用Welch's t检验; ***p<0.001,****p<0.0001。对侧(注射AAV-null)的数值在任何区域均无显著差异。
该结果有两个方面对于解读至关重要。首先,尽管手术方式和载体骨架相同,但AAV-Tau小鼠对侧(注射了AAV-null载体)半球中的GFAP阳性染色与AAV-null对照组织相比并无显著差异。 这一发现支持了与tau表达相关的局部星形胶质细胞反应,而非对手术或载体暴露的全身性反应。 其次,这种反应在解剖区域之间存在差异,其中黑质致密部(SNc)的增幅最大,中脑和黑质疏部(SNr)的增幅较小。这种模式与受 tau 表达影响区域中空间集中的反应一致,而非整个中脑的均匀变化。
在人类 PSP 的背景下,这种反应代表了什么?这些发现最符合反应性星形胶质细胞增生,该过程可通过血浆 GFAP 及1H-MRS测定的肌醇水平来反映。 这两项指标在PSP-RS中均呈升高,且与临床和认知评分相关(Hirata,2024)。然而,应将反应性星形胶质细胞增生与PSP特有的簇状星形胶质细胞tau病理区分开来。 后者代表一种截然不同的退行性病变过程(Togo & Dickson, 2002)。尽管这两种病理过程均存在于PSP患者的大脑中,但本文中呈现的GFAP测量结果评估的是反应性星形胶质细胞增生,而非簇状星形胶质细胞的存在。Biospective公司目前正在研究构建簇状星形胶质细胞模型的可能性。
超越染色密度。 Biospective 开发了计算机视觉和机器学习算法,能够根据形态对星形胶质细胞进行分类,区分静息型与肥大型表型。这种方法将分析范围扩展到了整体 GFAP 染色密度之外,有助于将星形胶质细胞形态和状态的变化与细胞数量的变化区分开来。 有关该方法的应用,请 参阅 《阿尔茨海默病星形胶质细胞与β-淀粉样蛋白小鼠模型》 。
小胶质细胞增生会增加多少?增加在哪些部位?
与AAV阴性对照组相比,同侧中脑的Iba-1阳性染色密度增加了3.4倍,黑质致密部(SNc)增加了4.3倍,黑质红部(SNr)增加了2.5倍。在这三个区域中,小胶质细胞密度的增加均超过了相应的星形胶质细胞反应。 反应最强烈的是SNc,该区域Tau蛋白表达最为集中。在对侧半球,中脑的Iba-1染色密度仅名义上增加了1.3倍,而对侧SNc和SNr的Iba-1染色密度与对照组水平相比无显著差异。
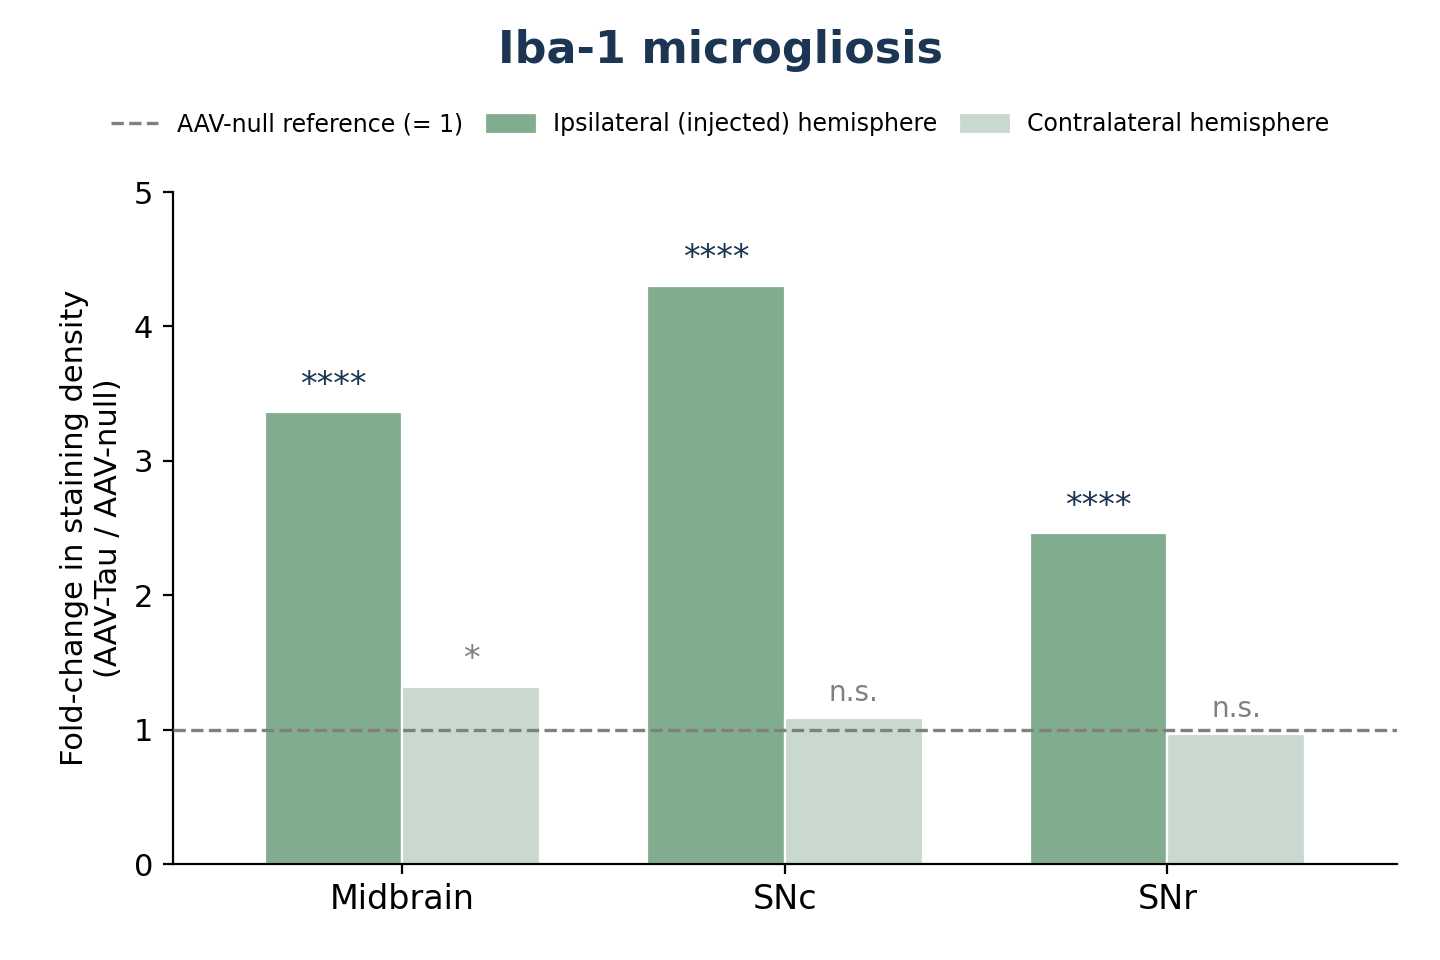
AAV-Tau小鼠中Iba-1阳性染色密度,以相对于同一区域和半球中AAV-null对照组的倍数变化表示,其中AAV-null对照组的值设为1。每个区域有12只AAV-null小鼠和13只AAV-Tau小鼠; 基于均值的倍数变化,采用韦尔奇t检验; * p<0.05,**** p<0.0001;n.s.,无统计学意义。
对侧中脑Iba-1染色的轻微增加值得关注。这是唯一一个与AAV-null对照组存在显著差异的对侧区域。应将该信号与AAV-null对照组进行比较,而非仅与该动物自身的对侧半球进行比较。 相比之下,对侧黑质致密部(SNc)和黑质网状部(SNr)与对照组水平相比未见显著差异。
小胶质细胞增生的区域分布模式也与人类PSP研究的发现一致。在此模型中,小胶质细胞的增加程度超过了星形胶质细胞增生,且在tau蛋白表达集中的SNc区域最为显著。 这种区域性聚集现象与人类研究证据一致——该证据表明小胶质细胞负荷与区域性变性相关(Ishizawa & Dickson, 2001),也与显示中脑和基底节区信号增强的TSPO PET研究结果一致(Gerhard, 2006;Passamonti, 2018)。 此外,尸检验证表明,PSP中的TSPO信号主要反映小胶质细胞病理(Wijesinghe, 2025)。因此,这些发现支持将Iba-1密度作为研究PSP中小胶质细胞反应的相关临床前指标。
密度不等于状态
尽管Iba-1染色密度可作为小胶质细胞丰度和分布的衡量指标,但它并不能全面表征小胶质细胞的激活状态。Iba-1是一种泛小胶质细胞标志物,这意味着仅凭染色密度无法区分细胞数量的变化与形态、突起覆盖范围或反应性的变化。 为克服这一局限性,Biospective采用全自动深度学习方法对小胶质细胞形态进行分类。该分析表明,AAV-Tau小鼠的黑质c区(SNc)中出现了向反应性小胶质细胞形态的显著转变,从而将评估范围扩展到了整体Iba-1染色密度之外。 在将该模型与人类进行性核上性麻痹(PSP)的研究结果进行比较时,这一区分尤为重要——在PSP研究中,与死前PET信号相关的并非总小胶质细胞数量,而是具有吞噬活性的CD68阳性小胶质细胞(Wijesinghe, 2025)。
请参阅我们的资源: 小胶质细胞组织学与分析 、 神经退行性疾病中的小胶质细胞、星形胶质细胞与Tau蛋白
第4节——续
需要了解胶质细胞的状态,而不仅仅是胶质细胞密度吗?
我们可在您的组织样本上,或通过我们开展的研究,将小胶质细胞和星形胶质细胞的自动形态分类、CD68及其他状态标志物,与Iba-1和GFAP检测结果相结合,用于在临床前研究中评估您的治疗药物。
中脑组织中哪些细胞因子的水平升高?
在9种测定的细胞因子/趋化因子中,有6种在AAV-Tau小鼠同侧中脑匀浆中的水平显著升高。 与AAV-null对照组相比,IFN-γ增加了24.3倍,IL-6增加了14.9倍,IL-1β增加了12.1倍,TNF-α增加了4.3倍,IL-2增加了2.2倍。 IL-5 的增加幅度较小,但仍达到 1.4 倍,且具有统计学意义。相比之下,抗炎细胞因子 IL-4 和 IL-10 以及趋化因子 KC/GRO 则未发生变化。这一特征表明存在选择性炎症反应,而非所有测定分析物均出现统一升高。 组织学测量证实了胶质细胞反应性增加,而细胞因子谱分析则为组织中存在的炎症介质提供了补充信息。
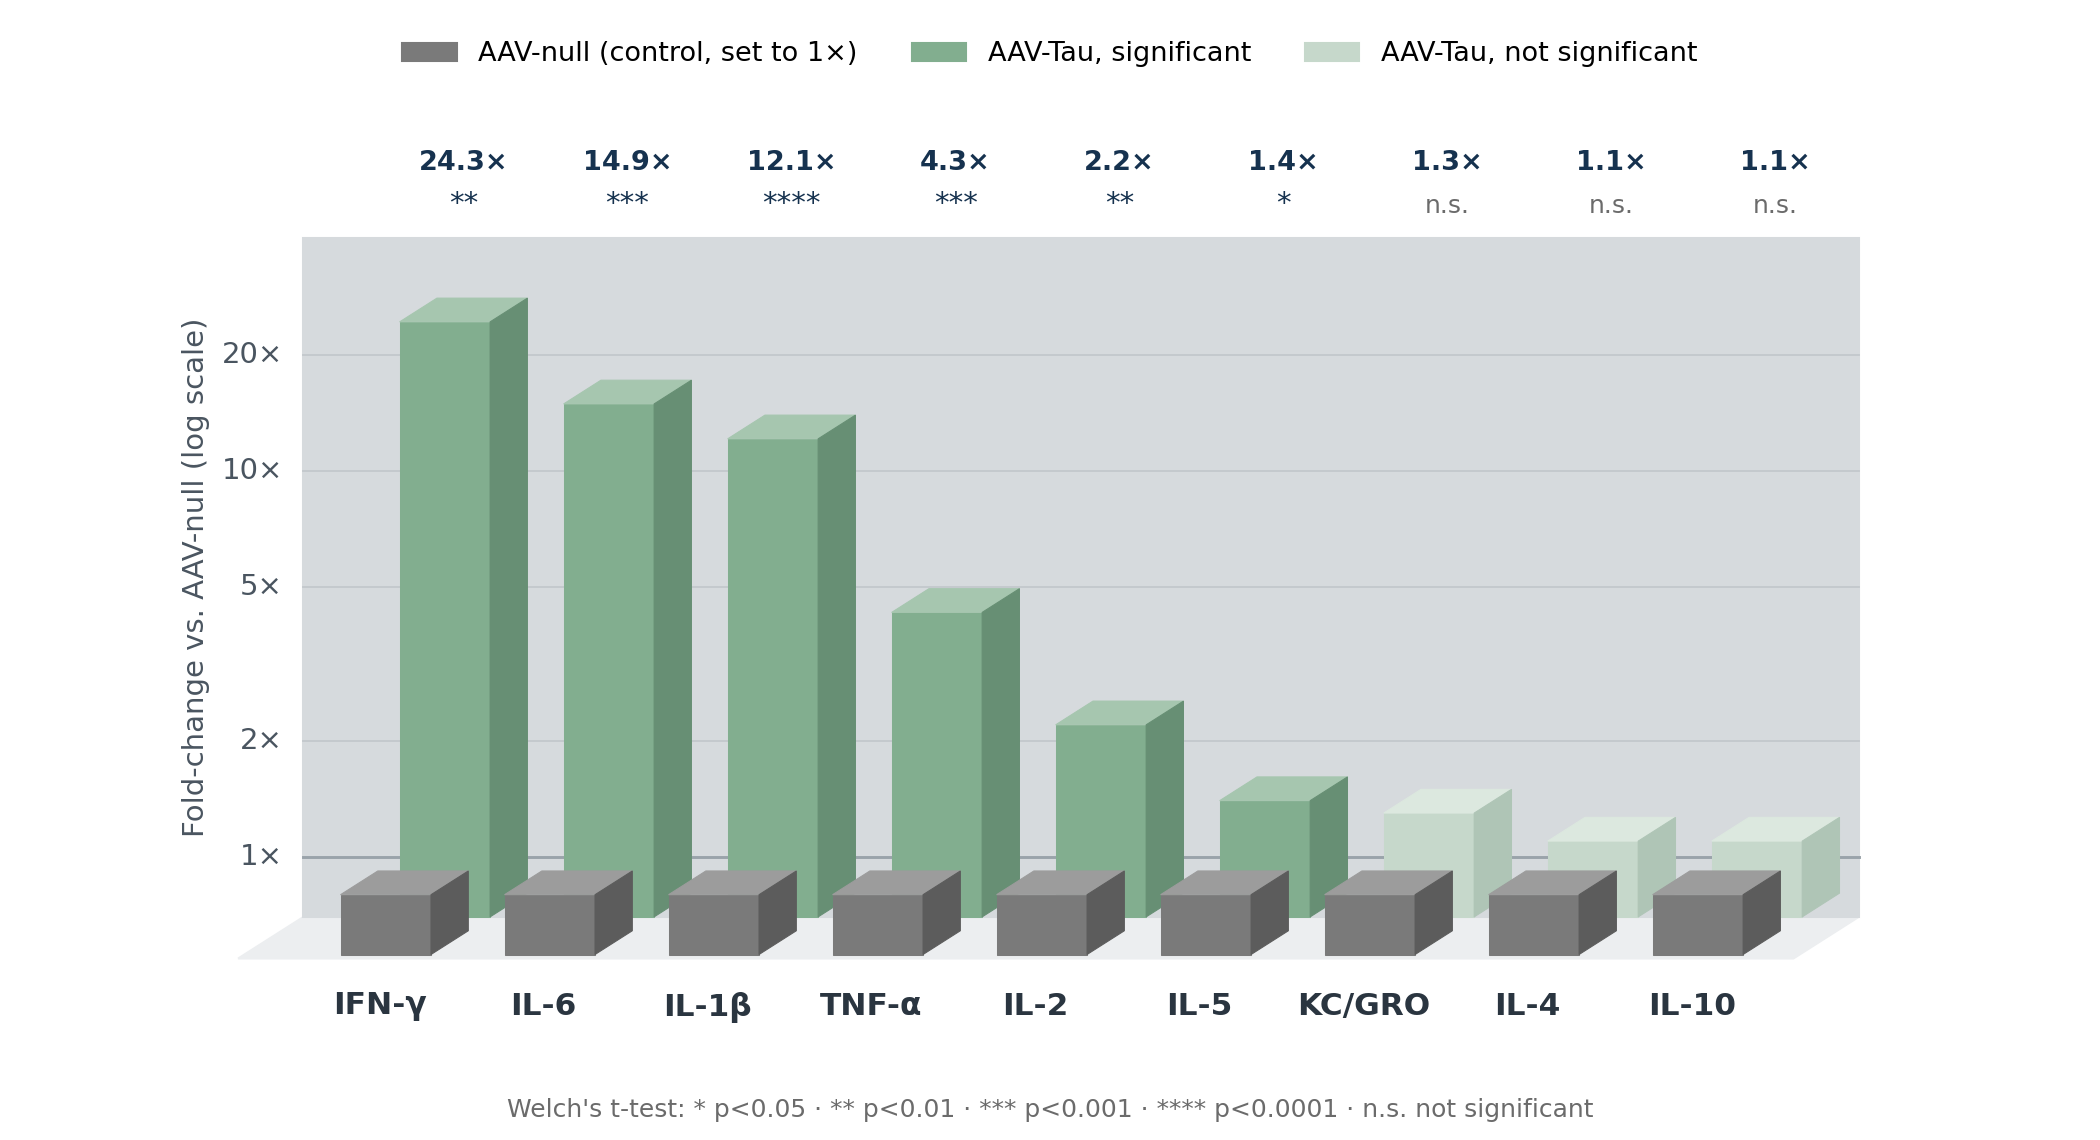
AAV-Tau小鼠(绿色,后排)同侧中脑匀浆中的细胞因子和趋化因子浓度,以对数坐标轴表示,相对于AAV-null对照组(灰色,前排,设定为1×)的相对变化倍数。 浅绿色标记表示未发生显著变化的分析物。九项分析物超灵敏多重免疫测定法,经检测质量控制后每组n = 8–10; Welch’s t检验; * p<0.05,** p<0.01,*** p<0.001,**** p<0.0001;n.s.,无统计学意义。
表1. AAV-Tau小鼠同侧中脑匀浆中的细胞因子反应及其与已报道的人类PSP病例的对应情况。
整体谱系所提供的信息比任何单一细胞因子的单独数据更为丰富。 IL-1β和IL-6这两种在人类PSP研究中均有报道的分析物,在本模型中也属于反应最显著的分析物。相比之下,IL-4和IL-10并未显著升高,这表明该反应并未伴随这些抗炎细胞因子的相应增加。 IL-2是这些显著结果中最出人意料的,因为它并非小胶质细胞的典型产物。其在PSP前额叶皮层中的升高已被证实与外周T细胞亚群的转变有关(Rydbirk,2019), 且 IL-2 与 IFN-γ 共同为细胞因子水平提供了参照点,可与目前在人类 PSP 中脑中逐渐显现的适应性免疫发现进行对比(Couto, 2025;Backman, 2025)。这暗示了免疫细胞可能参与其中,但仍需直接证据。
在前临床tau病变研究中,利用超灵敏多重检测法对匹配组织和生物体液进行直接蛋白质定量仍不常见,该领域通常以临床评分、组织学和基因表达为主。 在多发性硬化症的EAE小鼠模型中应用相同方法时发现,细胞因子升高仅限于中枢神经系统(CNS),且未见相应的血浆信号,这说明了为何应直接在相关组织中测量炎症变化,而非仅凭推测。
相关资源: NLRP3炎症小体与神经退行性疾病 、 IL-1β与神经退行性疾病
第5节——续
作为研究终点的细胞因子谱分析
在您的tau蛋白病研究中加入多重细胞因子和趋化因子检测面板
同一套九项分析物检测面板可应用于您研究队列中的脑组织匀浆、脑脊液和血浆样本,同时还可对匹配组织中的GFAP和Iba-1进行定量检测。
这些检测结果在多大程度上能反映人类PSP的情况?
本研究中的每一项读数都有在PSP患者中测得的对应数据。该模型还能够进行组织水平和时间维度的分析,而这些分析在人类研究中往往难以实现或无法进行。本节探讨了该模型与人类研究结果的一致性、其提供了哪些补充信息,以及该模型未来可能的扩展方向。
表 2. AAV-Tau 小鼠模型与人类 PSP 测量结果之间的终点水平映射。
该模型补充了在人类研究中难以获得的信息
目前尚未有关于人类PSP黑质中蛋白质水平的多重细胞因子数据发表:关于黑质中IL-1β的发现仅基于转录水平(Fernández-Botrán, 2011), 关于IL-2蛋白的研究来自前额叶皮层(Rydbirk, 2019),而其余关于PSP细胞因子的文献均基于体液样本(Starhof, 2018;Dey, 2026)。 因此,对同侧中脑匀浆的测定可提供与现有人类证据特别相关的组织水平比较。 此外,关于这些关系的人类研究依赖于横断面测量,或仅基于一次基线扫描后进行的临床随访。相比之下,在tau蛋白表达始于已知时间点的模型中,可以探究尸检和单次扫描研究设计无法直接解决的时间关系。
一个可供进一步发展的平台
当前的 AAV-Tau 模型捕捉了 PSP 生物学中与早期治疗决策相关的若干特征:黑质中的 4R tau 病理、黑质-纹状体退化、帕金森样运动功能障碍以及由 tau 引发的神经炎症反应,所有这些特征都在适合临床前研究的压缩时间线内呈现。 该模型并非人类疾病的完全复刻,而是为研究这些特征提供了基础。Biospective 正在探索将这一独特模型扩展以纳入更多与 PSP 相关特征的方法。
表3. AAV-Tau模型的当前能力及其扩展方向,以捕捉人类PSP的更多特征。
每个扩展项目都将保留本节所述的评估指标——定量胶质细胞组织学、多重细胞因子谱分析、磁共振成像(MRI)、体液生物标志物及运动功能测试——因此,结果仍可与当前数据集直接进行比较。 若赞助方有针对特定PSP特征的研究构想,可协助规划此项工作; 请联系我们 ,共同探讨拟开展的扩展研究如何支持您的药物研发项目。
正在计划开展一项关于PSP或4R型塔病疗效的研究吗?
与构建并表征该模型的科学家们交流
基于本页所列效应量确定的研究设计和样本量
涵盖胶质细胞、细胞因子、tau蛋白、多巴胺能神经元丧失、MRI及行为的终点指标选择
大致成本和时间表,随后提交正式提案
正在计划开展一项关于PSP或4R型塔病疗效的研究吗?
与构建并表征该模型的科学家们交流
基于本页所列效应量确定的研究设计和样本量
涵盖胶质细胞、细胞因子、tau蛋白、多巴胺能神经元丧失、MRI及行为的终点指标选择
大致成本和时间表,随后提交正式提案
这些终点指标在治疗研究中如何应用?
该模型结合了由Tau蛋白引发的快速胶质细胞表型与临床相关的检测指标,因此特别适用于针对小胶质细胞的药物、炎症小体和细胞因子通路抑制剂、星形胶质细胞调节方法,以及那些其下游胶质细胞效应尚待阐明机制的抗Tau候选药物。 由于大约在第6周时就会出现稳健的多模式表型,因此是否继续研究的决策无需像转基因tau病变模型那样耗时数月。
两个内置对照组
一项研究可包括一个 AAV 阴性对照组,以控制各动物间的手术和载体暴露情况;此外,每只 AAV-Tau 小鼠都拥有自己对侧半球内注射的 AAV 阴性对照,这为相同的手术和载体骨架提供了动物内的参考。 AAV-null组是所有终点的主要对照组。 对侧半球提供了动物内部的验证,以确认该效应是由tau驱动且局部的:它在每个区域与AAV-null对照组在GFAP方面均无显著差异,在SNc和SNr中的Iba-1方面也是如此,因此可以对照这两个参考组来确认对tau注射半球产生的治疗效果。
从两个维度解读结果
由于胶质细胞反应性和神经轴突损伤是在同一动物体内测量的,因此一种既能抑制 GFAP 和 Iba-1 又不会改变 NfL 水平的候选药物(或反之),会产生可解释的解离现象,而非模棱两可的结果。鉴于炎症在患者中承载着预后信息(Malpetti, 2021;Shapiro, 2025),尽管这种关联的方向在不同队列中并不一致(Palleis, 2024),因此应根据治疗药物是否改变了胶质细胞指标和神经退行性病变指标来评估其疗效,而不能仅凭胶质细胞抑制作用来判断。
Biospective 提供的端到端服务
在此模型中,神经炎症研究作为单一项目实施,涵盖从手术到最终定量报告的全部流程。研究通常可快速启动。
参见: 体液与细胞生物标志物 & PSP和CBD的Tau小鼠模型
摘要
在小鼠黑质中表达人2N4R tau蛋白会引发区域性集中的胶质细胞反应,并伴有选择性的炎性细胞因子变化,这些变化可在6周内于细胞和蛋白质水平上检测到。GFAP和Iba-1的密度在中脑、SNc、 及黑质致密部(SNr)中均呈上升趋势,其中小胶质细胞增生程度超过星形胶质细胞增生;中脑组织中IFN-γ、IL-6、IL-1β、TNF-α、IL-2和IL-5水平升高,而IL-4和IL-10则无显著增加。
这一特征与 PSP 患者中报道的 IL-1β 和 IL-6 升高(Dey,2026)以及 TSPO PET 扫描和尸检中观察到的皮质下神经炎症定位(Ishizawa & Dickson,2001;Passamonti, 2018),而适应性免疫反应(Couto, 2025)和簇状星形胶质细胞(Togo & Dickson, 2002)则仍超出该模型当前的研究范围。 在承认这些局限性的前提下,该模型提供了一个可操作的系统,用于探究候选治疗药物是否会改变由tau蛋白引发的胶质细胞生物学,并采用与PSP临床试验中使用的生物标志物相对应的终点指标。
常见问题解答
常见问题解答
对这款机型还有其他疑问,但这里没有解答吗?
我们的科研团队将直接为您解答技术问题。