


Neuroinflammation dans le modèle murin AAV-Tau de la PSP
Une étude de recherche visant à quantifier l'astrogliose, la microgliose et les cytokines pro-inflammatoires dans le modèle murin AAV-hTau (2N4R) de Biospective, reproduisant la paralysie supranucléaire progressive.
 Pourquoi la neuroinflammation joue-t-elle un rôle important dans la paralysie supranucléaire progressive ?
- Comment la neuroinflammation a-t-elle été induite et mesurée dans le modèle AAV-Tau de Biospective ?
- Dans quelle mesure l'astrogliose s'aggrave-t-elle dans le modèle AAV-Tau ?
- Dans quelle mesure la microgliose augmente-t-elle, et où ?
- Quelles sont les cytokines dont les taux sont élevés dans le tissu du mésencéphale ?
- Dans quelle mesure ces résultats sont-ils transposables à la PSP chez l'être humain ?
- Comment ces critères d'évaluation peuvent-ils être utilisés dans une étude thérapeutique ?
- Résumé
Résumé de l'étude de recherche
En bref : Nous avons quantifié la réactivité gliale et les concentrations protéiques des cytokines inflammatoires dans le modèle murin AAV-Tau de Biospective dédié à la paralysie supranucléaire progressive (PSP), abordant ainsi un aspect des modèles de tauopathie qui est souvent déduit de la pathologie de la protéine tau plutôt que mesuré directement. Des vecteurs de virus adéno-associés (AAV) exprimant la protéine tau humaine de type sauvage 2N4R ont été injectés dans la substance noire compacte gauche (SNc) de souris C57BL/6, tandis qu’un vecteur AAV nul a été injecté dans la substance noire controlatérale ; les souris témoins ont reçu des injections bilatérales de vecteur AAV nul, et les cerveaux ont été analysés 6 semaines après l’injection. Les densités de coloration de la GFAP et de l’Iba-1 étaient significativement accrues dans le mésencéphale ipsilatéral, la SNc et la substance noire pars reticulata (SNr), les augmentations les plus importantes pour ces deux marqueurs ayant été observées dans la SNc. Le profilage neuroinflammatoire a mis en évidence des élévations significatives de plusieurs cytokines, notamment l’IL-1β, l’IL-2 et l’IL-6, tandis que l’IL-4, l’IL-10 et le KC/GRO ne présentaient pas de modification significative. Ensemble, ces résultats démontrent une réponse gliale concentrée au niveau régional, accompagnée de modifications sélectives des cytokines inflammatoires. L’élévation de l’IL-1β, de l’IL-2 et de l’IL-6 concorde également avec les résultats rapportés chez des patients atteints de PSP (Dey, 2026; Rydbirk, 2019), ce qui confirme l’utilité de ces mesures neuroinflammatoires en tant que critères d’évaluation translationnels dans le modèle AAV-Tau.
4,3x
Microgliose Iba-1 dans le SNc
3,5x
Astrogliose liée à la GFAP dans le SNc
12x
L'IL-1β dans le tissu du mésencéphale
6 sur 9
taux de cytokines nettement élevés
4,3x
Microgliose Iba-1 dans le SNc
3,5x
Astrogliose liée à la GFAP dans le SNc
12x
L'IL-1β dans le tissu du mésencéphale
6 sur 9
taux de cytokines nettement élevés
Variation relative par rapport au groupe témoin AAV-null six semaines après l'injection. Accéder à la description de l'étude ›
Le modèle sur lequel repose cette étude
Modèle murin AAV-Tau de la PSP et de la CBD
La protéine tau humaine de type sauvage 2N4R, introduite dans la substance noire, a entraîné l'apparition d'une pathologie liée à la protéine tau 4R, une perte dopaminergique, une neuroinflammation et des déficits moteurs parkinsoniens dans un délai très court. Notre caractérisation complète, ainsi que les données issues de la microscopie interactive, de l'IRM et des tests comportementaux, sont disponibles sur la page consacrée à ce modèle.
Pourquoi la neuroinflammation joue-t-elle un rôle important dans la paralysie supranucléaire progressive ?
La neuroinflammation dans la PSP n’est pas une découverte fortuite : elle est concentrée, d’un point de vue anatomique, dans les régions touchées par la dégénérescence, fournit des informations pronostiques allant au-delà des échelles d’évaluation cliniques et est liée à des facteurs génétiques. Pris dans leur ensemble, ces résultats plaident en faveur de l’intégration de critères d’évaluation liés aux cellules gliales et aux cytokines dans les études précliniques sur la PSP, plutôt que de les considérer comme de simples mesures descriptives.
La PSP est une tauopathie 4R à prédominance sous-corticale
La PSP est une maladie neurodégénérative sporadique qui se manifeste par une instabilité posturale et des chutes, une paralysie du regard vertical supranucléaire, une rigidité axiale et des troubles des fonctions exécutives frontales (Höglinger, 2017). Sur le plan neuropathologique, la protéine tau à 4 répétitions hyperphosphorylée s’accumule dans les neurones, dans les oligodendrocytes sous forme de corps enroulés, et dans les astrocytes sous forme d’astrocytes en touffes. La pathologie de la protéine tau suit une séquence anatomique stéréotypée, avec une atteinte précoce du noyau sous-thalamique, du globus pallidus et de la substance noire (SN), suivie d’une atteinte du striatum, des noyaux dentés du cervelet et du cortex (Kovacs, 2020). Cette répartition a des implications directes sur le choix du modèle : un modèle murin pertinent pour la PSP devrait mettre en évidence une pathologie de la protéine tau au niveau du mésencéphale plutôt que de se fonder uniquement sur des observations dans l’hippocampe ou le cortex cérébral.
La réactivité gliale est associée à une dégénérescence régionale
Les preuves reliant la neuroinflammation à la pathologie de la PSP proviennent à la fois d’études post-mortem sur les tissus et de l’imagerie in vivo. L’analyse d’images post-mortem de la coloration HLA-DR a révélé une activation microgliale plus importante dans la PSP et la dégénérescence corticobasale (CBD) que chez les sujets témoins. La charge microgliale était corrélée à la charge de protéine tau dans la plupart des régions examinées, bien que les auteurs aient précisé que cette relation était plus faible au niveau du tronc cérébral (Ishizawa & Dickson, 2001). De même, les études TSPO par TEP montrent un signal accru dans les ganglions de la base, le mésencéphale et les régions frontales (Gerhard, 2006) ; un signal élevé au niveau du thalamus, du putamen et du pallidum a également été rapporté dans le syndrome de PSP-Richardson (PSP-RS ; Passamonti, 2018). Une validation post mortem indique que le signal de la TSPO dans la PSP reflète principalement une pathologie microgliale plutôt qu’astrocytaire et est en corrélation avec la charge microgliale phagocytaire CD68-positive (Wijesinghe, 2025).
Contexte concernant les marqueurs et les récepteurs à l'origine de ces mesures :
Les avis concernant le rôle des microglies ne font pas l'unanimité
Malgré des preuves d’une activité microgliale accrue dans la PSP, les résultats post-mortem ne sont pas tout à fait cohérents, et d’autres réponses immunitaires pourraient également jouer un rôle. Dans le cortex atteint de FTLD-tau, y compris la PSP, le CD16 était le seul marqueur microglial significativement élevé, l’augmentation significative au sein d’un sous-groupe étant observée chez les porteurs de la mutation MAPT plutôt que chez les patients atteints de PSP (Hartnell, 2024). Dans la substance noire (SN), l’expression de l’Iba-1 ne différait pas de manière significative entre la PSP et les témoins, tandis que les densités de lymphocytes T CD3+ et CD4+ étaient nettement plus élevées (Backman, 2025). La présence de lymphocytes T CD8+ dans le mésencéphale a également été décrite comme une caractéristique distincte de la PSP (Couto, 2025), et les profils neuroinflammatoires peuvent varier en fonction de l’haplotype HLA (Forrest, 2026). Dans l’ensemble, ces résultats suggèrent que l’activation microgliale n’est qu’une composante de la réponse inflammatoire dans la PSP et que sa contribution peut dépendre du stade de la maladie, de la région anatomique et des caractéristiques immunitaires individuelles.
Les astrocytes interviennent par le biais de deux processus distincts
Pour interpréter les modifications astrocytaires dans la PSP, il faut distinguer la pathologie astrocytaire liée à la protéine tau de l’astrogliose réactive classique. La distribution de la gliose GFAP-positive ne recoupe pas celle des astrocytes à touffes, ce qui confirme la distinction entre ces processus (Togo & Dickson, 2002). Parallèlement, des taux élevés de myo-inositol à la 1H-MRSet de GFAP plasmatique ont été rapportés dans la PSP-RS, et des astrocytes réactifs ont été observés dans le cortex cingulaire antérieur malgré un dépôt de protéine tau seulement modéré (Hirata, 2024). Par conséquent, les mesures basées sur la GFAP fournissent principalement des informations pour l’évaluation de l’astrogliose réactive et ne doivent pas être interprétées comme une preuve directe de la pathologie tau liée aux astrocytes à touffes qui caractérise la PSP.
Les cytokines convergent vers l’IL-1β et l’IL-6
Au-delà de la réactivité gliale, des études chez l’homme fournissent des preuves d’une dérégulation des cytokines inflammatoires dans la PSP, l’IL-1β et l’IL-6 apparaissant comme des signaux récurrents dans les études sur les tissus et les fluides biologiques. Les transcrits de l’IL-1β sont significativement plus élevés dans la substance noire (SN) des patients atteints de PSP que dans les tissus de la maladie d’Alzheimer ou les tissus témoins (Fernández-Botrán, 2011), tandis que la protéine IL-2 est augmentée dans le cortex préfrontal des patients atteints de PSP (Rydbirk, 2019). Les études sur les liquides biologiques varient selon le groupe de référence et le type d’échantillon : Les taux de TNF-α, d’IL-1β et d’IL-6 dans le LCR sont élevés dans la PSP et la MSA par rapport à la maladie de Parkinson, mais pas par rapport aux témoins (Starhof, 2018), tandis que des taux plasmatiques élevés d’IL-1β et d’IL-6 ont été rapportés par rapport aux témoins (Dey, 2026). Les profils de cytokines varient également selon le phénotype de la PSP et le type de liquide biologique, des taux généralement plus faibles d’IL-1β et d’IL-6 ayant été rapportés dans la PSP-RS (Madetko-Alster, 2023). Malgré cette variabilité, ces résultats mettent en évidence des voies inflammatoires qui convergent vers le NF-κB et l’inflammasome NLRP3, fournissant ainsi une justification mécanistique pour l’étude des taux de cytokines parallèlement à la réactivité gliale dans les modèles précliniques de la PSP.
Ressources sur les voies de signalisation des cytokines :
La neuroinflammation permet de prédire l'évolution de la maladie, mais pas de manière unidirectionnelle
La neuroinflammation peut également fournir des informations sur la progression de la maladie et la survie. La neuroinflammation initiale du tronc cérébral et du cervelet, mesurée par TEP au 11C-PK11195, a permis de prédire l’évolution ultérieure sur l’échelle d’évaluation de la PSP (PSPRS), contrairement à la volumétrie IRM seule (Malpetti, 2021). Le signal TSPO sous-cortical et le taux plasmatique de NfL étaient associés à une survie plus courte dans la PSP (Shapiro, 2025), et un profil pro-inflammatoire périphérique était également associé à la survie après ajustement en fonction de la gravité initiale de la maladie (Malpetti, 2025). Cependant, ces relations ne sont pas uniformes : le signal TSPO n’était pas corrélé à la progression dans les tauopathies à 4 répétitions (Palleis, 2021), et dans la CBS négative pour la β-amyloïde, un signal TSPO global plus élevé à la TEP était associé à une progression clinique plus lente (Palleis, 2024). Ces résultats invitent à la prudence quant à l’hypothèse selon laquelle la réduction de l’activation gliale améliorerait nécessairement les résultats cliniques. Il convient plutôt d’évaluer la pertinence thérapeutique de la neuroinflammation à l’aide de mesures appariées.
La génétique pointe du doigt la glie, mais pas uniquement les microglies
Une vaste étude d’association pangénomique sur la PSP, intégrant des données épigénomiques, transcriptomiques et histologiques spécifiques à chaque type cellulaire, a mis en évidence l’implication de l’activation gliale et du système du complément, y compris le nouveau gène de risque C4A, avec un signal oligodendrocytaire marqué (Farrell, 2024). Cette vision plus large de la biologie de la PSP est particulièrement pertinente étant donné que les immunothérapies anti-tau ont démontré une liaison à la cible sans bénéfice clinique : le gosuranemab a réduit la tau N-terminale non liée dans le LCR (Dam, 2021), tandis que le tilavonemab a montré des signes d’engagement de la cible dans le LCR mais a répondu à des critères de futilité prédéfinis (Höglinger, 2021). Ensemble, ces résultats plaident en faveur de l’étude des voies gliales et immunitaires parallèlement à la pathologie de la protéine tau, à l’aide de modèles précliniques reproduisant les caractéristiques anatomiques pertinentes et permettant de mesurer directement la réponse gliale qui en résulte.
Consultez notre ressource : Microglia, astrocytes et protéine tau dans les maladies neurodégénératives
Vidéo 1 : L'étude en 60 secondes. Protocole de l'étude, quantification de la GFAP et de l'Iba-1, profil des cytokines du mésencéphale (neuf analytes) et carte de correspondance entre les patients et le modèle chez la souris AAV-Tau, modèle murin de la PSP.
 Cliquez pour copier le lien
Comment la neuroinflammation a-t-elle été induite et mesurée dans le modèle AAV-Tau de Biospective ?
Des vecteurs AAV codant pour la protéine tau humaine de type sauvage 2N4R (AAV-Tau) ont été injectés dans la SNc gauche de souris C57BL/6 jeunes adultes par injection stéréotaxique à l'aide d'un dispositif stéréotaxique numérique équipé d'un micro-injecteur automatisé. Le SNc controlatéral a reçu un vecteur AAV-null dépourvu du transgène tau, ce qui a permis d’effectuer des comparaisons intra-animales entre l’hémisphère exprimant la protéine tau et l’hémisphère témoin. Les souris témoins ont reçu un vecteur AAV-null à la place de l’AAV-Tau. Les animaux ont été soumis à des tests comportementaux longitudinaux et à une IRM in vivo avant d’ être sacrifiés 6 semaines après l’injection. À la fin de l’étude, la réactivité astrocytaire et microgliale a été évaluée par immunofluorescence multiplexe pour la GFAP et l’Iba-1, respectivement, suivie d’une analyse quantitative des images à l’aide de la plateforme d’analyse d’images microscopiques PERMITS™, propriété exclusive de Biospective. Les concentrations de cytokines et de chimiokines ont été mesurées dans des homogénats du mésencéphale ipsilatéral et controlatéral à l’aide de dosages immunologiques multiplex ultrasensibles.
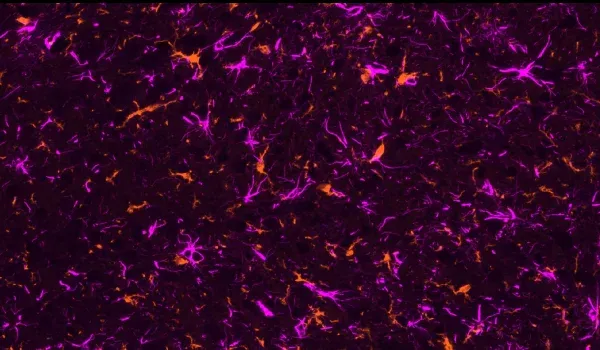
Double immunofluorescence de l'Iba-1 (microglies, orange) et de la GFAP (astrocytes, violet) dans la SNc ayant reçu une injection chez une souris AAV-Tau. Le signal glial est concentré dans la région où l'expression de la protéine tau est la plus élevée.
Le phénotype dans lequel s'inscrit la réponse gliale
À la fin de la période d’observation de 6 semaines, les souris AAV-Tau présentaient plusieurs caractéristiques de dégénérescence nigrostriatale parallèlement à la réponse inflammatoire observée. Parmi celles-ci figuraient la présence de protéine tau phosphorylée et présentant une altération conformationnelle dans les neurones nigraux, la perte de neurones (TH) dans la SNc, accompagnée d’une dénervation dopaminergique striatale, une atrophie ipsilatérale significative de la SNc, du mésencéphale et du striatum visible sur les IRM à 7 T, des taux élevés de NfL dans le LCR et le plasma, ainsi que des déficits moteurs lors des tests du cylindre, du rotarod, de la suspension par la queue et de la préhension des membres postérieurs. La neuroinflammation a donc été évaluée dans le contexte d’une pathologie nigrostriatale établie et de déficits fonctionnels, plutôt que de manière isolée. Cela offre un contexte plus large pour l’interprétation des mesures gliales et des cytokines.
Pour une caractérisation complète du modèle, y compris notre présentation interactive sur la microscopie, consultez :
Dans quelle mesure l'astrogliose s'aggrave-t-elle dans le modèle AAV-Tau ?
La densité de coloration GFAP-positive dans l'hémisphère ipsilatéral a été multipliée par 2,7 dans le mésencéphale, par 3,5 dans le SNc et par 1,6 dans le SNr, par rapport aux témoins AAV-null. Aucune différence significative n’a été observée dans aucune région controlatérale. Ce gradient régional indique que la réponse astrocytaire la plus forte se produit dans le SNc, près du site d’injection de la protéine tau, avec des augmentations plus faibles dans les régions environnantes.
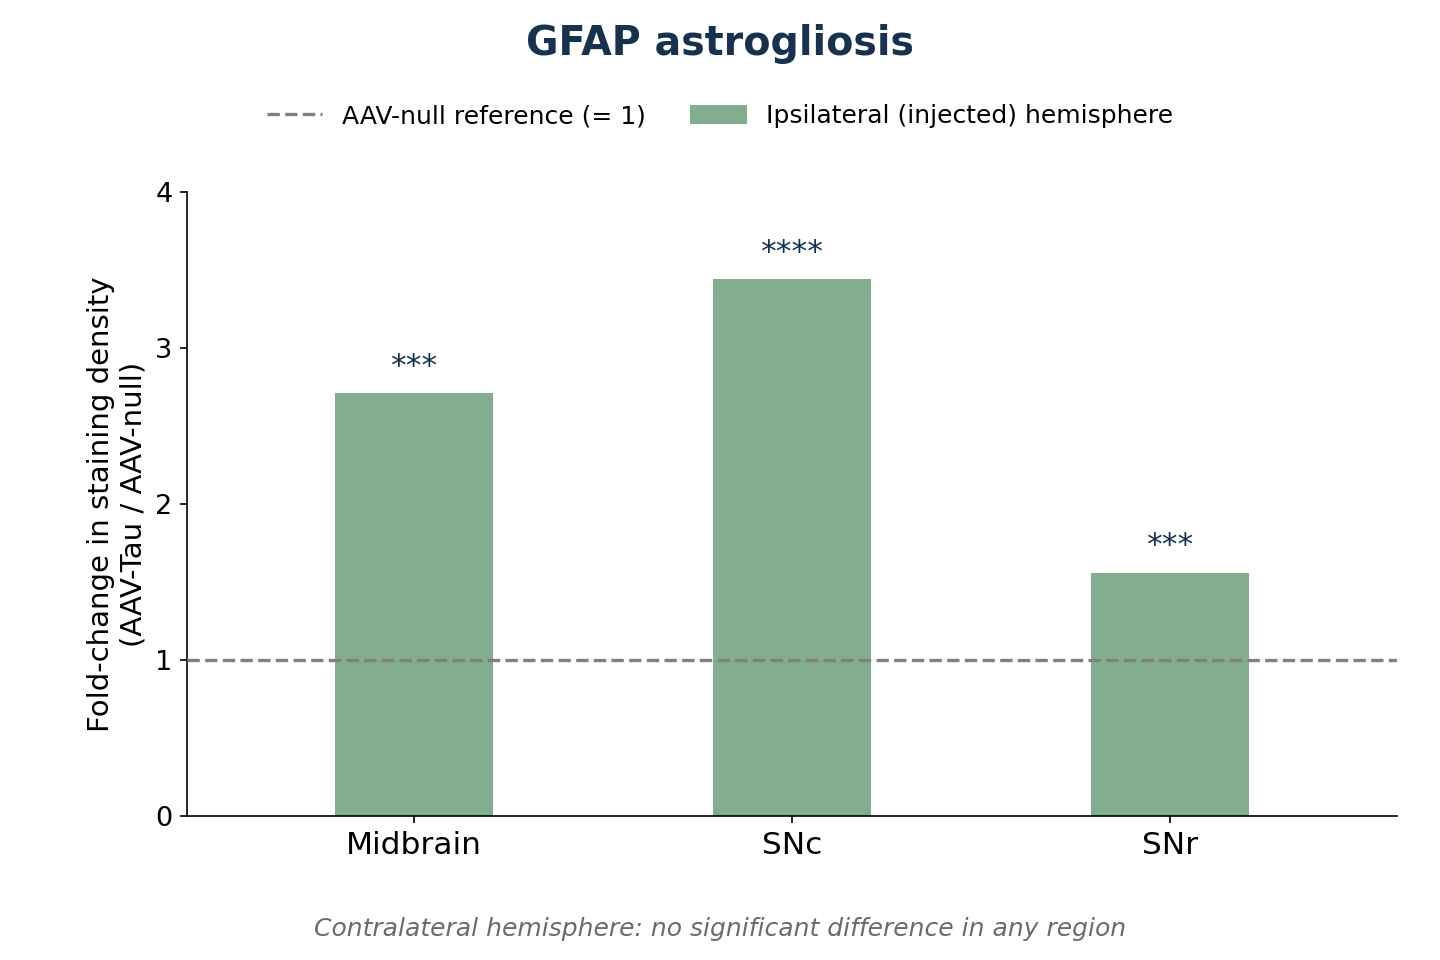
Densité de coloration GFAP-positive chez les souris AAV-Tau, exprimée en variation relative par rapport aux témoins AAV-null dans la même région, la valeur AAV-null étant fixée à 1. Hémisphère ipsilatéral (injecté avec AAV-Tau ou AAV-null) ; n = 12 AAV-null et 13 AAV-Tau par région ; variation relative calculée à partir de la moyenne avec le test t de Welch ; *** p < 0,001, **** p < 0,0001. Les valeurs controlatérales (injection d’AAV-null) ne présentaient pas de différence significative dans aucune région.
Deux aspects de ce résultat sont importants pour son interprétation. Premièrement, la coloration GFAP-positive dans l’hémisphère controlatéral des souris AAV-Tau, où l’AAV avait été injecté sans gène, ne différait pas de manière significative de celle observée dans le tissu témoin AAV-null, malgré une intervention chirurgicale et une structure vectorielle identiques. Ce résultat corrobore l’hypothèse d’une réponse astrocytaire localisée associée à l’expression de la protéine tau, plutôt qu’une réponse généralisée à l’intervention chirurgicale ou à l’exposition au vecteur. Deuxièmement, la réponse variait selon les régions anatomiques, avec l’augmentation la plus importante dans le SNc et des augmentations plus modestes dans le mésencéphale et le SNr. Ce profil correspond à une réponse spatialement concentrée dans les régions touchées par l’expression de la protéine tau, plutôt qu’à une modification uniforme dans l’ensemble du mésencéphale.
Que représente cette réponse dans le contexte de la PSP humaine ? Ces résultats concordent le plus avec une astrogliose réactive, un processus mis en évidence par la GFAP plasmatique et par le myo-inositol en 1H-MRS. Ces deux paramètres sont élevés dans la PSP-RS et ont été associés aux scores cliniques et cognitifs (Hirata, 2024). L’astrogliose réactive doit toutefois être distinguée de la pathologie tau des astrocytes à touffes, caractéristique de la PSP. Cette dernière représente un processus dégénératif distinct (Togo & Dickson, 2002). Bien que ces deux processus se produisent dans le cerveau atteint de PSP, les mesures de GFAP présentées ici évaluent l’astrogliose réactive plutôt que la présence d’astrocytes à touffes. La possibilité de modéliser les astrocytes à touffes fait actuellement l’objet de recherches menées par Biospective.
Au-delà de la densité de coloration. Biospective a développé des algorithmes de vision par ordinateur et d'apprentissage automatique qui classent les astrocytes en fonction de leur morphologie, en distinguant les phénotypes au repos des phénotypes hypertrophiques. Cette approche va au-delà de l'analyse de la densité globale de coloration de la GFAP, ce qui permet de distinguer les modifications de la morphologie et de l'état des astrocytes des variations de leur nombre. Voir «Modèles murins de la maladie d'Alzheimer basés surles astrocytes et l'amyloïde-β » pour une application de cette méthodologie.
Dans quelle mesure la microgliose augmente-t-elle, et où ?
La densité de coloration Iba-1-positive a été multipliée par 3,4 dans le mésencéphale ipsilatéral, par 4,3 dans le SNc et par 2,5 dans le SNr, par rapport aux témoins AAV-null. L'augmentation de la densité microgliale a dépassé la réponse astrocytaire correspondante dans ces trois régions. La réponse la plus forte a été observée dans la SNc, où l’expression de la protéine tau est concentrée. Dans l’hémisphère controlatéral, le mésencéphale a présenté une augmentation nominale de 1,3 fois, tandis que la densité de coloration Iba-1 dans la SNc et la SNr controlatérales ne différait pas de manière significative des niveaux observés chez les témoins.
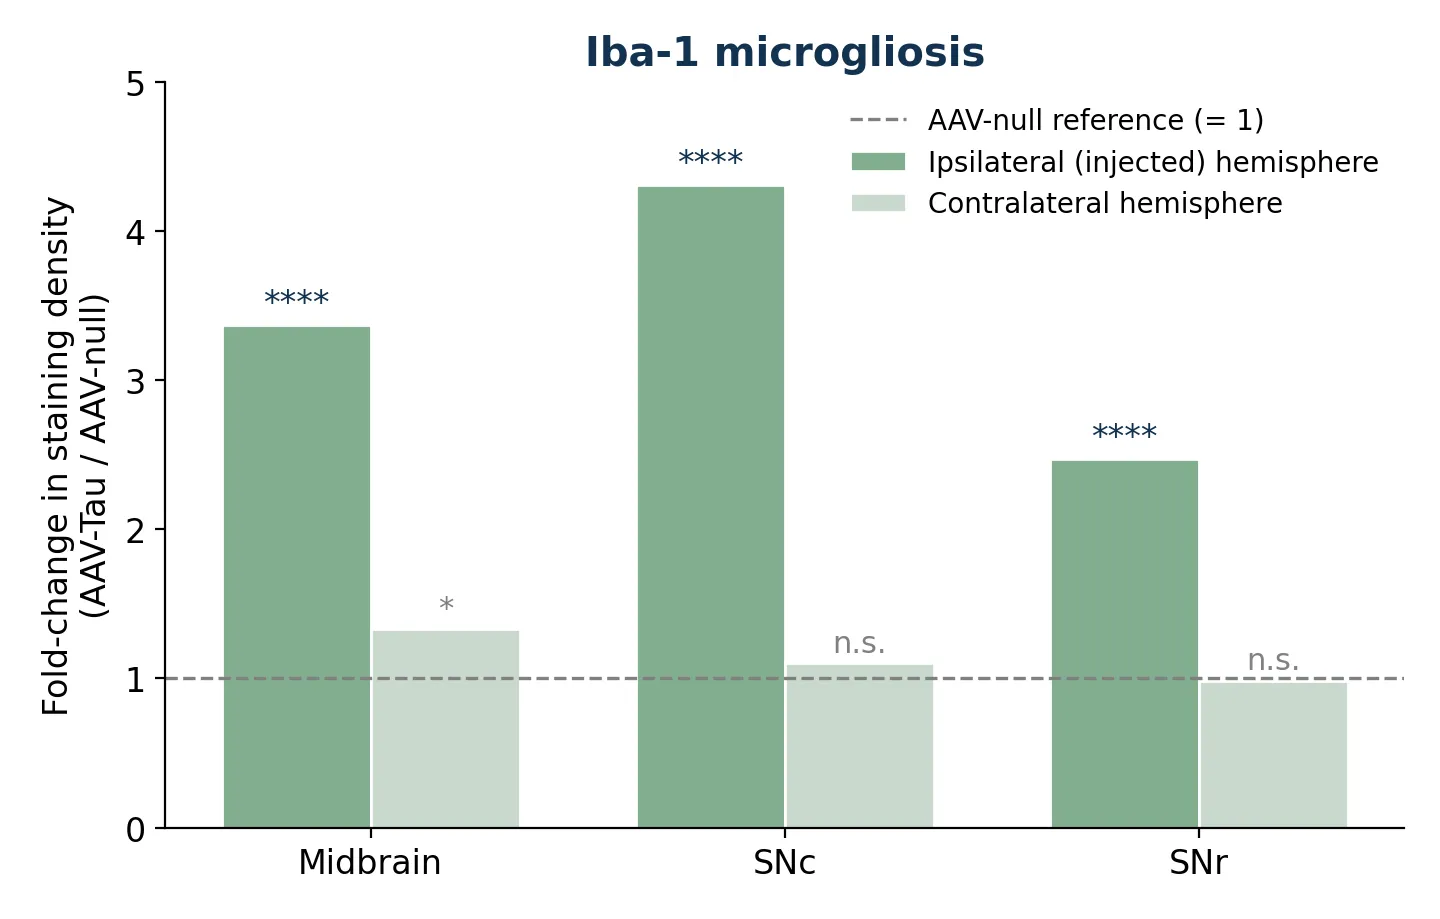
Densité de coloration Iba-1-positive chez les souris AAV-Tau, exprimée en variation relative par rapport aux témoins AAV-null dans la même région et le même hémisphère, la valeur AAV-null étant fixée à 1. n = 12 souris AAV-null et 13 souris AAV-Tau par région ; variation relative calculée à partir de la moyenne à l'aide du test t de Welch ; * p < 0,05, **** p < 0,0001; n.s., non significatif.
La légère augmentation de la coloration de l'Iba-1 dans le mésencéphale controlatéral mérite d'être prise en compte. Il s'agit de la seule région controlatérale présentant une différence significative par rapport au groupe témoin AAV-null. Ce signal doit être interprété par rapport au groupe témoin AAV-null plutôt que par rapport à l'hémisphère controlatéral de l'animal lui-même. En revanche, les régions SNc et SNr controlatérales n’ont présenté aucune différence significative par rapport aux niveaux du groupe témoin.
La répartition régionale de la microgliose correspond également aux résultats des études sur la PSP chez l’homme. Dans ce modèle, l’augmentation du nombre de microglies a dépassé celle de l’astrogliose et était la plus importante dans la SNc, où l’expression de la protéine tau est concentrée. Cette concentration régionale est cohérente avec les données humaines établissant un lien entre la charge microgliale et la dégénérescence régionale (Ishizawa & Dickson, 2001) ainsi qu’avec les études TSPO par TEP montrant un signal accru dans le mésencéphale et les ganglions de la base (Gerhard, 2006; Passamonti, 2018). De plus, une validation post-mortem a indiqué que le signal TSPO dans la PSP reflète principalement la pathologie microgliale (Wijesinghe, 2025). Par conséquent, ces résultats confirment que la densité d’Iba-1 constitue un indicateur préclinique pertinent pour l’étude des réponses microgliales dans la PSP.
La densité n’est pas synonyme d’état
Bien que la densité de coloration de l’Iba-1 fournisse une mesure de l’abondance et de la distribution des microglies, elle ne caractérise pas pleinement leur activation. L’Iba-1 est un marqueur pan-microglial, ce qui signifie que la densité de coloration seule ne permet pas de distinguer les variations du nombre de cellules des modifications de la morphologie, de la couverture des prolongements ou de la réactivité. Pour pallier cette limite, Biospective applique une approche d’apprentissage profond entièrement automatisée afin de classer la morphologie microgliale. Cette analyse met en évidence une évolution significative vers une morphologie microgliale réactive dans la SNc des souris AAV-Tau, élargissant ainsi l’évaluation au-delà de la densité globale de coloration de l’Iba-1. Cette distinction est particulièrement pertinente lorsqu’on compare ce modèle aux résultats obtenus chez l’homme dans le cadre de la PSP, où ce sont les microglies phagocytaires CD68-positives, plutôt que le nombre total de microglies, qui ont été associées au signal TEP ante mortem (Wijesinghe, 2025).
Consultez nos ressources : Histologie et analyse des microglies & Microglies, astrocytes et protéine Tau dans les maladies neurodégénératives
Section 4 - Suite
Vous avez besoin de connaître l'état des cellules gliales, et pas seulement leur densité ?
Nous ajoutons une classification automatisée de la morphologie des microglies et des astrocytes, le CD68 et d’autres marqueurs d’état aux mesures d’Iba-1 et de GFAP, sur vos tissus ou dans le cadre d’une étude que nous menons pour évaluer vos agents thérapeutiques lors d’essais précliniques.
Quelles sont les cytokines dont les taux sont élevés dans le tissu du mésencéphale ?
Six des neuf cytokines/chimiokines mesurées présentaient des taux significativement élevés dans les homogénats du mésencéphale ipsilatéral des souris AAV-Tau. L'IFN-γ a été multiplié par 24,3, l'IL-6 par 14,9, l'IL-1β par 12,1, le TNF-α par 4,3 et l'IL-2 par 2,2 par rapport aux témoins AAV-null. L’IL-5 a présenté une augmentation plus modeste mais statistiquement significative, de 1,4 fois. En revanche, les cytokines anti-inflammatoires IL-4 et IL-10 ainsi que la chimiokine KC/GRO sont restées inchangées. Ce profil suggère une réponse inflammatoire sélective plutôt qu’une élévation uniforme de tous les analytes mesurés. Les mesures histologiques établissent que la réactivité gliale est accrue, tandis que le profilage des cytokines fournit des informations complémentaires sur les médiateurs inflammatoires présents dans le tissu.
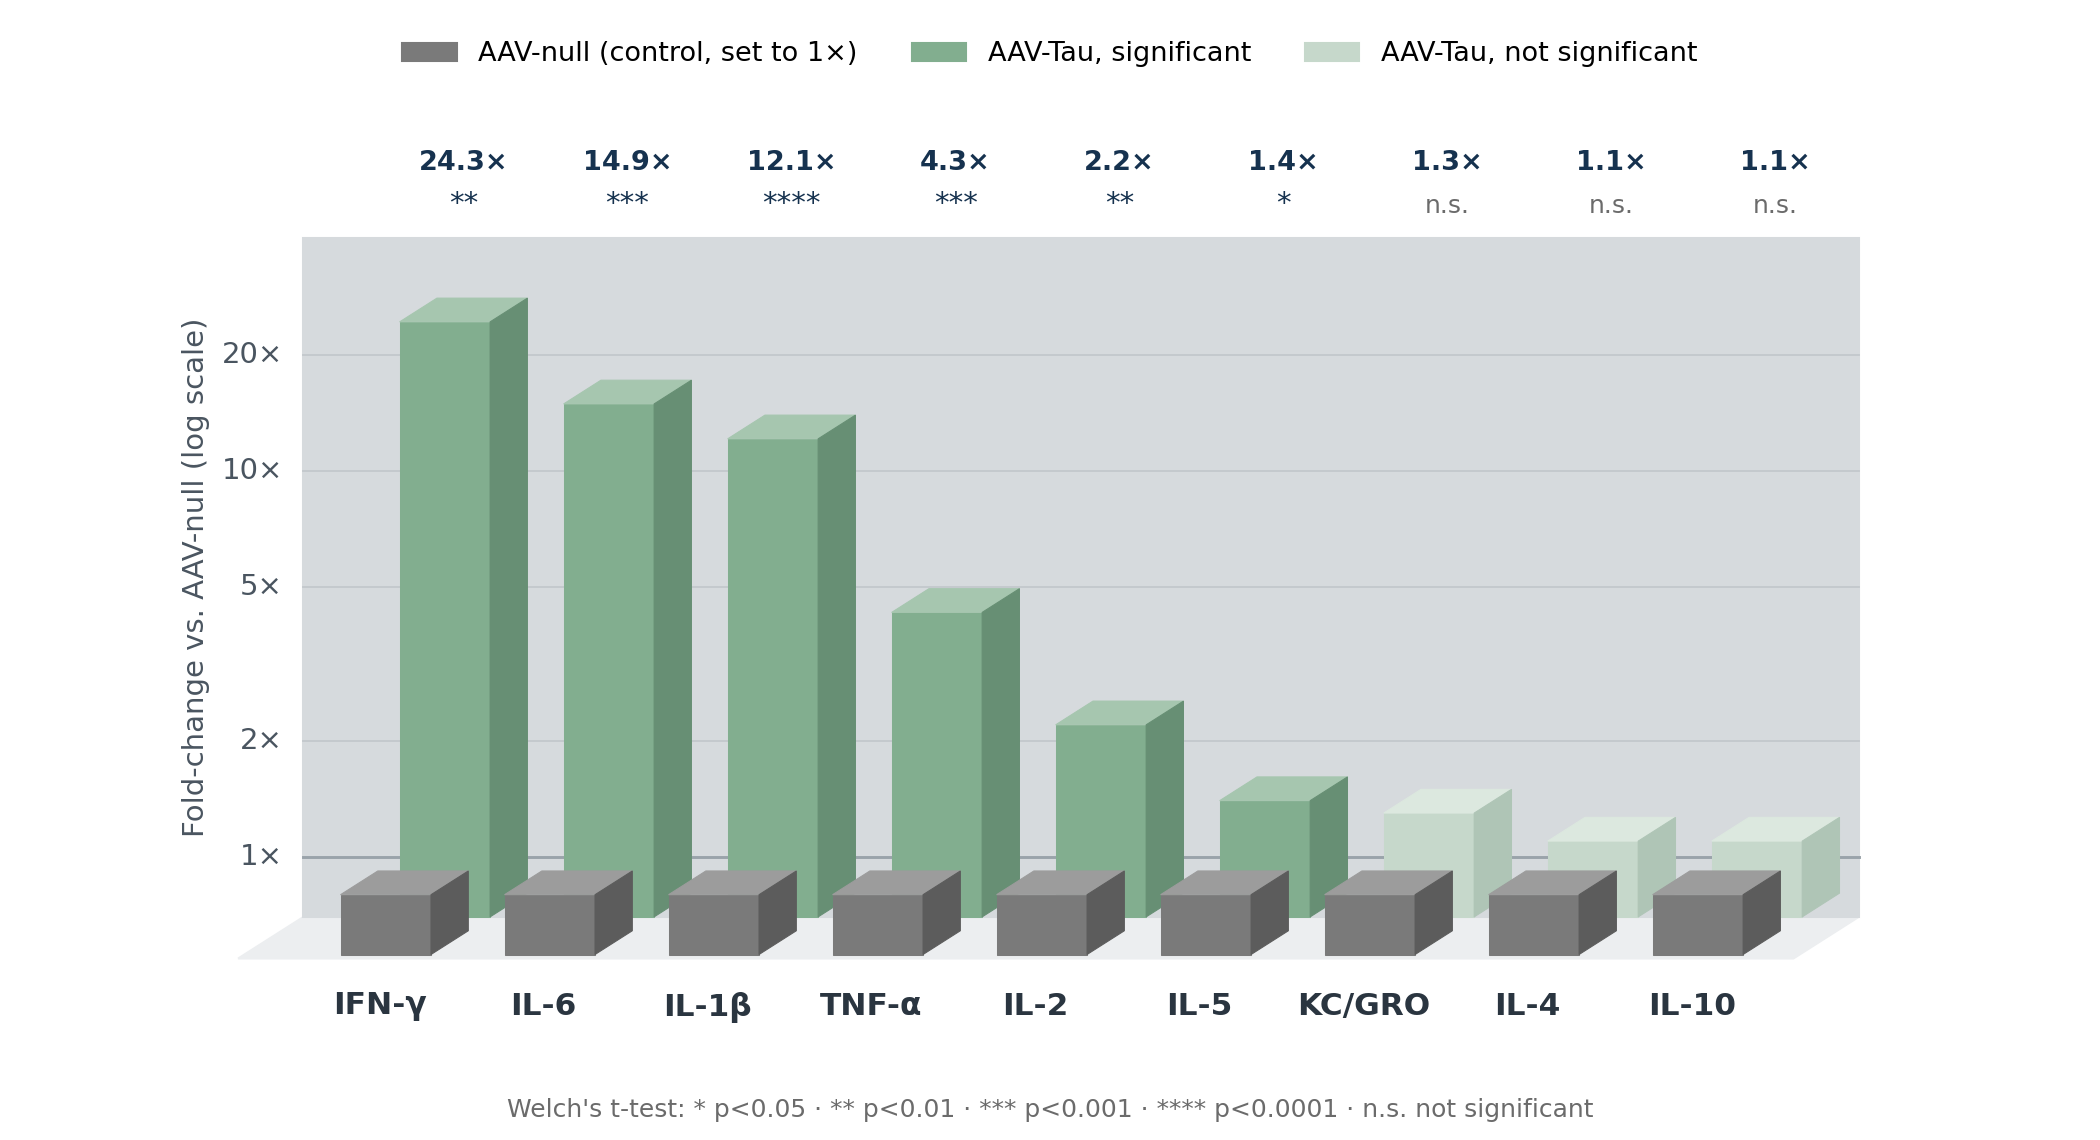
Concentrations de cytokines et de chimiokines dans les homogénats du mésencéphale ipsilatéral de souris AAV-Tau (en vert, rangée du fond), exprimées en variation relative par rapport aux témoins AAV-null (en gris, rangée de devant, référence fixée à 1×) sur un axe logarithmique. Le vert plus clair indique les analytes qui n’ont pas subi de variation significative. Dosage immunologique multiplexe ultrasensible portant sur neuf analytes, n = 8 à 10 par groupe après contrôle qualité du dosage ; test t de Welch ; * p < 0,05, ** p < 0,01, *** p < 0,001, **** p < 0,0001; n.s., non significatif.
Tableau 1. Réponses cytokiniques dans les homogénats du mésencéphale ipsilatéral de souris AAV-Tau et leurs équivalents rapportés chez les patients atteints de PSP.
Le profil global est plus révélateur que n'importe quelle cytokine prise isolément. L’IL-1β et l’IL-6, deux analytes mentionnés dans les études sur la PSP chez l’homme, figuraient également parmi les analytes les plus réactifs dans ce modèle. En revanche, l’IL-4 et l’IL-10 n’ont pas augmenté de manière significative, ce qui indique que la réponse n’était pas accompagnée d’une augmentation comparable de ces cytokines anti-inflammatoires. L’IL-2 est le résultat significatif le plus inattendu, car il ne s’agit pas d’un produit microglial canonique. Son élévation dans le cortex préfrontal des patients atteints de PSP a été associée à une modification des compartiments des lymphocytes T périphériques (Rydbirk, 2019), et l’IL-2 et l’IFN-γ fournissent ensemble des points de comparaison au niveau des cytokines avec les résultats relatifs à l’immunité adaptative qui émergent actuellement dans le mésencéphale humain atteint de PSP (Couto, 2025; Backman, 2025). Cela suggère une implication potentielle des cellules immunitaires, mais des preuves directes sont nécessaires.
La quantification directe des protéines dans des tissus et des liquides biologiques appariés à l’aide de dosages multiplex ultrasensibles reste peu courante dans la recherche préclinique sur les tauopathies, où les scores cliniques, l’histologie et l’expression génique prédominent souvent. L’application de cette même approche au modèle murin de la sclérose en plaques (EAE), où l’élévation des cytokines était confinée au SNC sans signal plasmatique correspondant, illustre pourquoi les modifications inflammatoires doivent être mesurées dans le compartiment concerné plutôt que supposées.
Ressources connexes : Inflammasome NLRP3 & Maladies neurodégénératives & IL-1β & Maladies neurodégénératives
Section 5 - Suite
LE PROFIL CYTOKINIQUE COMME CRITÈRE D'ÉVALUATION
Ajoutez des panels multiplex de cytokines et de chimiokines à votre étude sur les tauopathies
Ce même panel de neuf analytes peut être appliqué aux homogénats cérébraux, au LCR et au plasma issus de votre propre cohorte, parallèlement à la quantification de la GFAP et de l'Iba-1 dans des tissus appariés.
Dans quelle mesure ces résultats sont-ils transposables à la PSP chez l'être humain ?
Chaque résultat de cette étude trouve son équivalent chez les patients atteints de PSP. Le modèle permet également de réaliser des analyses au niveau tissulaire et temporelles qui sont difficiles à mener, voire impossibles, dans le cadre d'études chez l'homme. Cette section examine dans quelle mesure le modèle correspond aux résultats obtenus chez l'homme, dans quels domaines il apporte des informations supplémentaires et comment il pourrait être étendu.
Tableau 2. Correspondance au niveau des paramètres entre le modèle murin AAV-Tau et les mesures effectuées chez des patients atteints de PSP.
Le modèle apporte des informations difficiles à obtenir dans le cadre d’études menées chez l’homme
Aucune donnée multiplexe sur les cytokines au niveau protéique n’a été publiée concernant la substance noire chez l’homme atteint de PSP : la découverte de l’IL-1β dans la substance noire se situe au niveau de la transcription (Fernández-Botrán, 2011), les travaux sur la protéine IL-2 concernent le cortex préfrontal (Rydbirk, 2019), et le reste de la littérature sur les cytokines dans la PSP repose sur des analyses de liquides biologiques (Starhof, 2018; Dey, 2026). Les mesures réalisées dans des homogénats du mésencéphale ipsilatéral offrent donc une comparaison au niveau tissulaire particulièrement pertinente avec les données humaines disponibles. Par ailleurs, les études humaines portant sur ces relations s’appuient sur des mesures transversales ou sur un seul examen de référence suivi d’un suivi clinique. En revanche, un modèle dans lequel l’expression de la protéine tau commence à un moment connu permet d’étudier des relations temporelles que les autopsies et les études basées sur un seul examen ne peuvent pas directement élucider.
Une plateforme sur laquelle s’appuyer
Le modèle AAV-Tau actuel reproduit plusieurs caractéristiques de la biologie de la PSP pertinentes pour les décisions thérapeutiques précoces : une pathologie de la protéine tau de type 4R localisée dans la substance noire, une dégénérescence nigrostriatale, des déficits moteurs parkinsoniens et une réponse neuroinflammatoire déclenchée par la protéine tau, le tout sur un calendrier condensé adapté aux études précliniques. Plutôt que d’être une réplique exacte de la maladie humaine, ce modèle fournit une base pour l’étude de ces caractéristiques. Biospective explore actuellement des moyens d’étendre ce modèle unique afin d’y inclure d’autres caractéristiques pertinentes pour la PSP.
Tableau 3. Capacités actuelles du modèle AAV-Tau et pistes d'extension pour intégrer des caractéristiques supplémentaires de la PSP humaine.
Chaque extension conserverait les paramètres décrits dans cette section — histologie quantitative des cellules gliales, profilage multiplexe des cytokines, IRM, biomarqueurs liquidiens et tests moteurs — afin que les résultats restent directement comparables à ceux de l'ensemble de données actuel. Les promoteurs ayant en tête un aspect spécifique de la PSP peuvent contribuer à orienter ces travaux ; contactez-nous pour discuter de la manière dont une extension prévue pourrait soutenir votre programme de développement de médicaments.
Envisagez-vous de mener une étude d'efficacité sur la tauopathie de type PSP ou 4R ?
Discutez avec les scientifiques qui ont développé et caractérisé ce modèle
Conception de l'étude et taille des groupes déterminées en fonction des tailles d'effet indiquées sur cette page
Sélection des critères d'évaluation parmi la glie, les cytokines, la protéine tau, la perte dopaminergique, l'IRM et le comportement
Estimation approximative des coûts et du calendrier, puis proposition formelle
Comment ces critères d'évaluation peuvent-ils être utilisés dans une étude thérapeutique ?
La combinaison d’un phénotype glial rapide, induit par la protéine tau, et de paramètres cliniques correspondants rend ce modèle particulièrement adapté aux agents ciblant la microglie, aux inhibiteurs de l’inflammasome et des voies des cytokines, aux approches modulant les astrocytes, ainsi qu’aux candidats anti-tau dont les effets gliaux en aval constituent une question mécanistique. Comme un phénotype multimodal robuste est présent au bout d’environ 6 semaines, les décisions de poursuite ou d’abandon du projet ne nécessitent pas les délais de plusieurs mois requis par les modèles transgéniques de tauopathie.
Deux groupes témoins intégrés
Une étude peut inclure un groupe AAV-null servant de contrôle pour la chirurgie et l’exposition au vecteur chez tous les animaux ; de plus, chaque souris AAV-Tau possède son propre hémisphère controlatéral ayant reçu une injection d’AAV-null, ce qui fournit une référence intra-animale pour la même intervention chirurgicale et la même structure de vecteur. Le groupe AAV-null constitue le comparateur principal pour tous les critères d’évaluation. L’hémisphère controlatéral permet de vérifier, au sein même de l’animal, que l’effet est induit par la protéine tau et localisé : il ne présente aucune différence significative en termes de GFAP par rapport aux témoins AAV-null dans toutes les régions, ni pour l’Iba-1 dans les SNc et SNr ; ainsi, l’effet du traitement sur l’hémisphère ayant reçu l’injection de tau peut être confirmé par rapport à ces deux références.
Interprétation d’un résultat en deux dimensions
Étant donné que la réactivité gliale et les lésions neuroaxonales sont mesurées chez les mêmes animaux, un candidat qui supprime la GFAP et l’Iba-1 sans modifier le NfL, ou l’inverse, produit une dissociation interprétable plutôt qu’ambiguë. Étant donné que l’inflammation véhicule des informations pronostiques chez les patients (Malpetti, 2021; Shapiro, 2025), bien que le sens de cette association ne soit pas uniforme d’une cohorte à l’autre (Palleis, 2024), un traitement doit être évalué en fonction de son incidence sur les marqueurs gliaux et les marqueurs de dégénérescence, et non sur la seule suppression gliale.
Ce que Biospective prend en charge de bout en bout
Une étude sur la neuroinflammation dans ce modèle est proposée sous la forme d’un programme unique, de l’intervention chirurgicale jusqu’au rapport quantitatif final. Les études peuvent généralement être lancées rapidement.
Induction des modèles et maintenance en service
Administration unilatérale d'AAV par chirurgie stéréotaxique, administration du produit à l'étude et évaluations motrices et sensorielles longitudinales .
Imagerie translationnelle in vivo
Acquisitiond'IRMà 7 T et mesures volumétriques régionales automatisées.
Biomarqueurs liquides et cellulaires
Prélèvements de LCR et de sang destinés à l'analyse de panels multiplex de cytokines et de chimiokines, ainsi qu'au dosage de la NfL.
Pathologie quantitative
IHC et immunofluorescence multiplex (mIF) pour les microglies et la protéine tau, analysées à l'aide du kit PERMITS™.
Résumé
L'expression de la protéine tau humaine 2N4R dans la substance noire de la souris induit une réponse gliale concentrée localement, accompagnée de modifications sélectives des cytokines inflammatoires, détectables tant au niveau cellulaire qu'au niveau protéique en l'espace de 6 semaines. La densité de GFAP et d'Iba-1 augmente dans le mésencéphale, la SNc, et la SNr, la microgliose dépassant l’astrogliose, et l’IFN-γ, l’IL-6, l’IL-1β, le TNF-α, l’IL-2 et l’IL-5 augmentent dans le tissu du mésencéphale, tandis que l’IL-4 et l’IL-10 n’augmentent pas de manière significative.
Ce profil correspond aux élévations de l’IL-1β et de l’IL-6 rapportées chez les patients atteints de PSP (Dey, 2026) ainsi qu’à la localisation sous-corticale de la neuroinflammation observée en TEP au TSPO et à l’autopsie (Ishizawa & Dickson, 2001; Passamonti, 2018), tandis que la réponse immunitaire adaptative (Couto, 2025) et les astrocytes à touffes (Togo & Dickson, 2002) restent en dehors du champ d’application actuel du modèle. Compte tenu de ces limites, le modèle offre un système maniable permettant d’étudier si un candidat thérapeutique modifie la biologie gliale induite par la protéine tau, à l’aide de critères d’évaluation correspondant aux biomarqueurs utilisés dans les essais cliniques sur la PSP.
Appel à l'action final
Nous serions ravis de discuter de ce modèle et de notre caractérisation.
Foire aux questions
Foire aux questions
Vous avez une question sur ce modèle qui ne trouve pas de réponse ici ?
Notre équipe scientifique répond directement à vos questions techniques.