


Atrophie hypothalamique dans un modèle murin de PSP induit par le virus AAV-Tau : pertinence translationnelle pour la maladie chez l'homme
La perte de volume hypothalamique observée dans le modèle murin AAV-Tau de Biospective, au niveau d'une structure située en dehors de la zone cible d'injection dans la substance noire, correspond aux résultats d'IRM observés chez les patients atteints de paralysie supranucléaire progressive (PSP).
 L'hypothalamus présente-t-il une atrophie dans le cas de la paralysie supranucléaire progressive ?
- En quoi le modèle murin AAV-Tau de Biospective reproduit-il la PSP ?
- Le modèle murin AAV-Tau présente-t-il une atrophie hypothalamique ?
- Observe-t-on une pathologie tau dans l'hypothalamus des souris AAV-Tau ?
- Quel est le lien entre la protéine tau hypothalamique du modèle AAV-Tau et la PSP humaine ?
- Comment l'atrophie hypothalamique peut-elle être exploitée dans les études précliniques sur les médicaments destinés au traitement de la PSP ?
Résumé de l'étude de recherche
La perte de volume hypothalamique est un signe émergent mis en évidence par IRM dans la paralysie supranucléaire progressive (PSP) qui n'a pas été observé dans la maladie de Parkinson (Kassubek, 2026). Nous avons cherché à déterminer si notre analyse d’images permettait de détecter ce signe chez des patients humains atteints de PSP et si le modèle murin AAV-Tau de Biospective pouvait le reproduire.
Sur les IRM pondérées en T1 de référence des cohortes 4RTNI (PSP) et FTLDNI (témoins), le volume hypothalamique bilatéral était significativement plus faible chez les patients atteints de PSP que chez les témoins. Chez les souris AAV-Tau, l’injection unilatérale de protéine tau humaine 2N4R dans la substance noire a entraîné une atrophie hypothalamique ipsilatérale significative, mise en évidence par IRM in vivo à 7T, une protéine tau MC1-positive à conformation altérée, une protéine tau AT8-positive phosphorylée et une protéine tau oligomérique TOC1-positive dans l’hypothalamus. L’hypothalamus se situant en dehors de la zone cible de l’injection, ces résultats indiquent des modifications pathologiques et structurelles liées à la protéine tau s’étendant au-delà de la région injectée et constituent un critère d’évaluation IRM translationnel mesurable dans la même structure chez la souris et chez les patients.
Un critère d’évaluation translationnel candidat pour l’efficacité thérapeutique. Le volume hypothalamique est calculé par volumétrie automatisée, basée sur un atlas, à partir des mêmes images IRM anatomiques in vivo que celles utilisées pour les critères d’évaluation de l’atrophie de la substance noire, du mésencéphale et du striatum. Cela permet d’évaluer le volume hypothalamique sans temps d’imagerie supplémentaire pour les essais cliniques chez l’homme et peut également être mesuré de manière répétée chez les mêmes animaux au cours des études précliniques. Étant donné que la même structure est quantifiée chez les patients atteints de PSP, un effet thérapeutique sur l’atrophie hypothalamique chez les souris AAV-Tau peut être exprimé comme un critère d’évaluation d’imagerie ayant un équivalent clinique direct en IRM. Le volume hypothalamique devient ainsi un critère d’efficacité potentiel pour les études portant sur des traitements modificateurs de la maladie ciblant les tauopathies 4R.
Pour une caractérisation complète du modèle, voir : Modèle murin « Tau » de la PSP et de la CBD
Vidéo n° 1. L'atrophiehypothalamique dans la PSP humaine et dans le modèle murin AAV-Tau de Biospective en 60 secondes : volumétrie IRM humaine, protocole de l'étude AAV-Tau, volumétrie IRM murine, pathologie tau hypothalamique et indicateurs multidomaines de la maladie. Une transcription complète est disponible.
L'hypothalamus présente-t-il une atrophie dans le cas de la paralysie supranucléaire progressive ?
Analyse biospective des IRM de la 4RTNI et de la FTLDNI
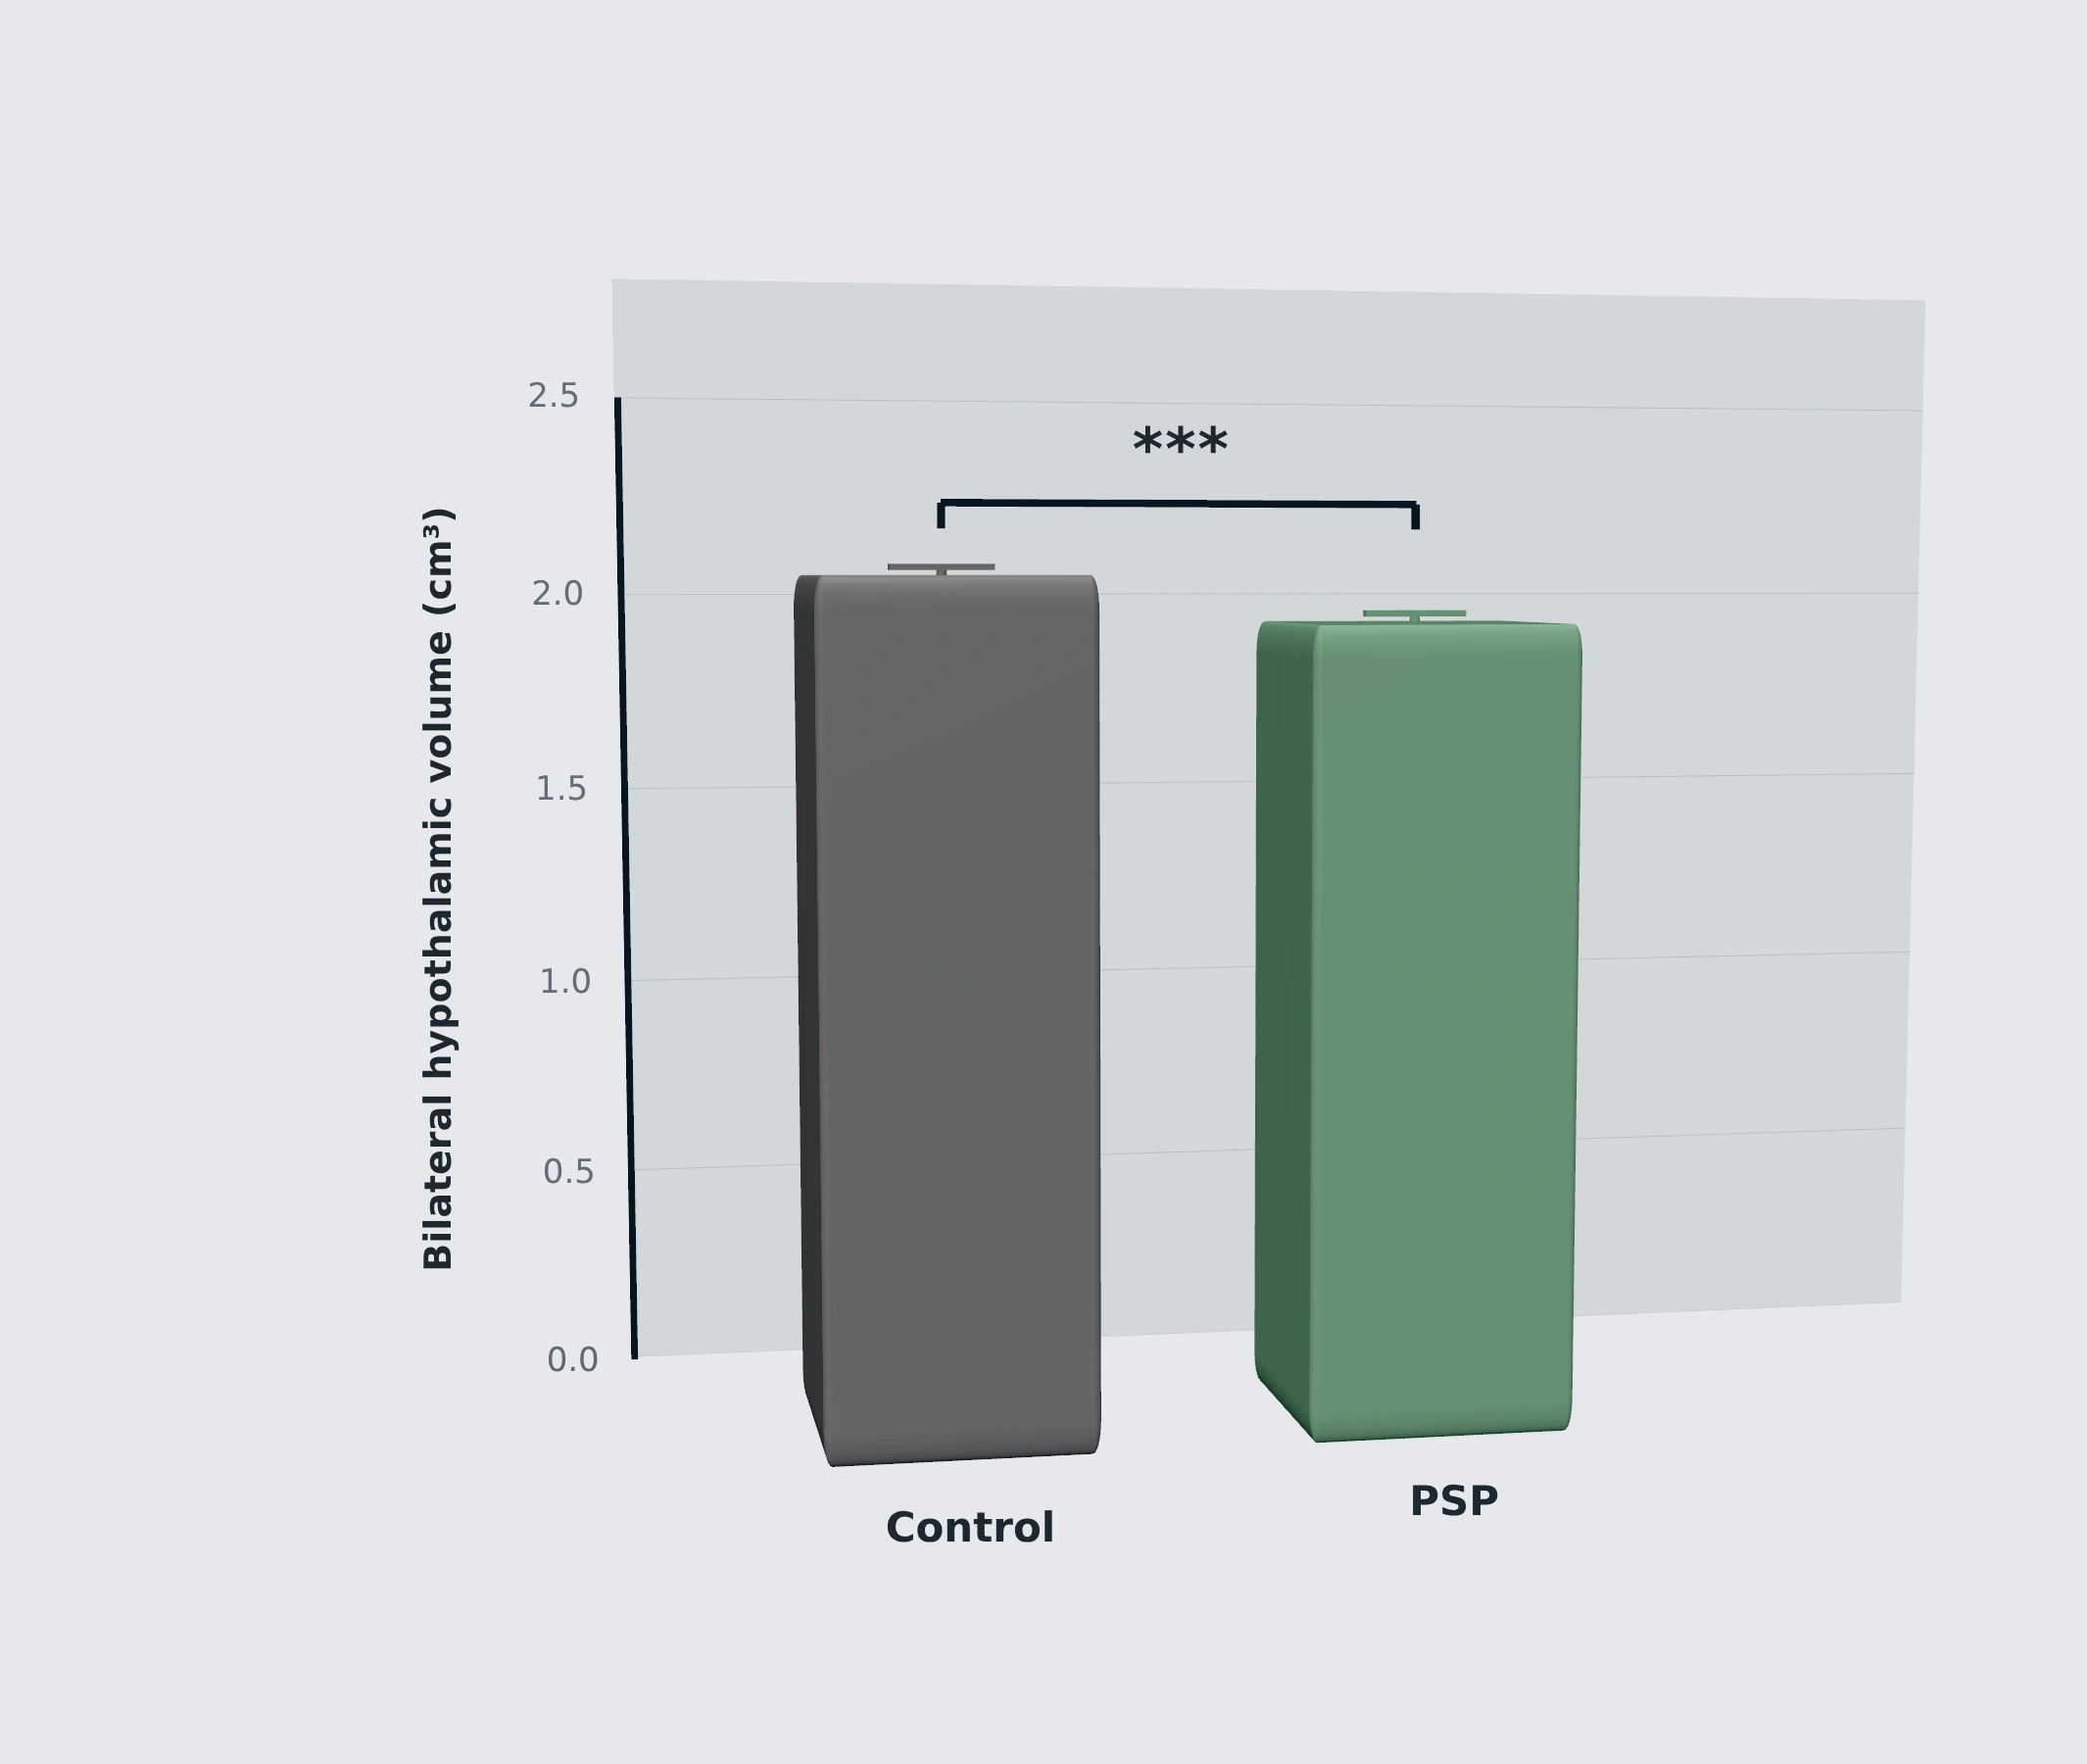
Une analyse biospective a été réalisée sur les IRM 3D pondérées en T1de référence de participants atteints de PSP dans le cadre de la 4-Repeat Tauopathy Neuroimaging Initiative (4RTNI) et de témoins sains issus de la Frontotemporal Lobar Degeneration Neuroimaging Initiative (FTLDNI), à l’aide de notre pipeline entièrement automatisé PIANO™. Cette approche est décrite dans notre présentation sur les mesures IRM de la progression de la maladie dans le cadre des essais cliniques sur la PSP. L’analyse a révélé un volume hypothalamique bilatéral significativement plus faible chez 51 participants atteints de PSP par rapport à 72 témoins sains (test t de Student, t(121) = 3,97, p = 0,0001), avec une ampleur d’effet modérée à importante (d de Cohen = 0,73 ; figure 1), ce qui concorde avec les résultats publiés précédemment à l’aide d’une segmentation automatisée (Kassubek, 2026).
.png)
Figure 1. Volume hypothalamique bilatéral (cm³) chez les témoins sains (en gris ; n = 72, FTLDNI) et chez les participants atteints de PSP (en vert ; n = 51, 4RTNI) au début de l'étude. Les barres indiquent la moyenne ± SEM ; test t de Student, t(121) = 3,97, p = 0,0001, d de Cohen = 0,73 ; *** p < 0,001. Les volumes absolus reflètent la définition de l’hypothalamus établie par Biospective à partir d’un atlas. Analyse interne réalisée par Biospective à partir des données 4RTNI et FTLDNI.
Les données utilisées dans cette analyse proviennent des bases de données 4RTNI et FTLDNI. Les chercheurs des études 4RTNI et FTLDNI ont contribué à la conception et à la mise en œuvre de ces études et/ou ont fourni des données, mais n’ont pas participé à cette analyse ni à la rédaction de cette ressource.
En accord avec les cohortes d'IRM publiées
Deux cohortes indépendantes analysées à l’aide d’une segmentation basée sur un réseau neuronal convolutif (CNN) ont également montré un hypothalamus plus petit chez les patients atteints de PSP. Dans une cohorte multicentrique à 3 T comprenant 78 patients et 63 témoins, le volume hypothalamique moyen était de 774 mm³ chez les patients atteints de PSP contre 817 mm³ chez les témoins. Une cohorte 1,5 T menée sur un seul site a confirmé cette réduction, sans toutefois mettre en évidence de perte significative de volume hypothalamique dans la maladie de Parkinson (Kassubek, 2026). La même méthode a permis de détecter une atrophie hypothalamique dans la sclérose latérale primaire et la SLA (Kassubek, 2025), alors qu’une étude antérieure de volumétrie IRM portant sur 232 patients atteints de la maladie de Parkinson n’avait révélé aucune perte significative de volume hypothalamique (Gorges, 2019). Dans l’ensemble, ces résultats suggèrent que l’atrophie hypothalamique pourrait constituer un signe d’imagerie permettant de différencier la PSP de la maladie de Parkinson.
Pourquoi ce résultat a-t-il pu passer inaperçu ?
De nombreuses études IRM sur la PSP rapportent des mesures du diencéphale ventral plutôt que de l’hypothalamus lui-même. Cette dénomination anatomique inclut également le noyau sous-thalamique, la substance noire et le noyau rouge. Ces régions présentent des modifications précoces dans la classification de la PSP selon le « brain-chart » (Planche, 2024) et une atrophie précoce dans le sous-type sous-cortical de la PSP, comme l’a mis en évidence l’apprentissage automatique (Scotton, 2023). Par conséquent, la perte de volume du diencéphale ventral ne doit pas être interprétée comme une preuve directe d’atrophie hypothalamique.
L’hypothalamus est également absent du système de stadification neuropathologique en six stades de la PSP (Kovacs, 2020) et des critères de la Rainwater Charitable Foundation pour le diagnostic neuropathologique (Roemer, 2022). Son implication a été sous-étudiée plutôt qu’écartée, ce qui souligne l’intérêt d’une mesure directe du volume hypothalamique.
Pour en savoir plus sur la neuroimagerie de la PSP, voir : « Marqueurs d’imagerie pour la paralysie supranucléaire progressive» et « Mesures IRM de la progression de la maladie pour les essais cliniques sur la PSP ».
En quoi le modèle murin AAV-Tau de Biospective reproduit-il la PSP ?
Le modèle AAV-Tau de Biospective reproduit plusieurs caractéristiques essentielles de la tauopathie 4R associée à des signes parkinsoniens, grâce à l’administration de protéine tau humaine de type sauvage 2N4R dans la substance noire compacte (SNc) de souris C57BL/6.
À la suite d’une injection stéréotaxique unilatérale, les souris développent dans le mésencéphale ipsilatéral des formes de protéine tau phosphorylées, à conformation altérée, oligomères et clivées ; une perte de neurones nigraux positifs à la tyrosine hydroxylase et de dopamine striatale ; une microgliose, une astrogliose et une élévation des cytokines dans le mésencéphale ; une augmentation des taux plasmatiques de protéine tau, de GFAP et de NfL; des déficits moteurs asymétriques ; ainsi qu’une atrophie, détectée par IRM, de la substance noire, du mésencéphale et du striatum. L'IRM in vivo est réalisée à la 5e semaine, les critères d'évaluation finaux étant évalués à la 6e semaine après l'injection. Pour en savoir plus, consultez notre page consacrée au modèle AAV-Tau.
Section 3 - L'étude AAV-Tau en bref
L'étude AAV-Tau en bref
Semaine 0
Injection unilatérale d'AAV-hTau (2N4R) dans le SNc
Semaines 1 à 5
Évaluation longitudinale de la motricité
Semaine 5
IRM 7Tin vivo
Semaine 6
Prélèvement de liquides et de tissus en fin de vie
Semaine 0
Injection unilatérale d'AAV-hTau (2N4R) dans le SNc
Semaines 1 à 5
Évaluation longitudinale de la motricité
Semaine 5
IRM 7Tin vivo
Semaine 6
Prélèvement de liquides et de tissus en fin de vie
Quels éléments peuvent être inclus dans une étude d'efficacité thérapeutique menée sur notre modèle AAV-Tau de la PSP :
Volumétrie IRM : hypothalamus, substance noire, mésencéphale et striatum
Pathologie de la protéine tau : hTau, AT8, MC1, pTau-T181, PHF1, TOC1, TauΔD421 et protéine tau agrégée
Intégrité dopaminergique : densité de coloration TH dans la substance noire et numération cellulaire, TH striatal et dopamine striatale
Neuroinflammation : GFAP et Iba-1/CD68 évalués par immunofluorescence multiplexe ; TNF-α, IL-6, IL-2, IL-1β et IFN-γ du mésencéphale mesurés par des dosages immunologiques à ultra-haute sensibilité
Biomarqueurs liquides: tau totale, GFAP, NfL et pTau-T181 dans le plasma et/ou le LCR
Fonction motrice : test du cylindre, test de suspension par la queue (TSST), rotarod et SNAP (Simple Neuroassessment of
déficience asymétrique)
Le calendrier et les critères d’évaluation sont basés sur la caractérisation du modèle interne de Biospective. La cible d’injection, le schéma posologique et les critères d’évaluation peuvent être adaptés à chaque programme thérapeutique.
Section 3 (suite)
Pourquoi l'atrophie hypothalamique n'a-t-elle pas été étudiée chez les souris tau ?
Notre revue de la littérature n’a révélé aucune étude publiée mesurant directement le volume hypothalamique par IRM dans un modèle murin tau. Les modèles transgéniques tau présentent toutefois une pathologie hypothalamique : des enchevêtrements neurofibrillaires hypothalamiques et préoptiques ont été signalés chez les souris JNPL3 (Lewis, 2000), tandis qu’une pathologie tau du noyau suprachiasmatique et un allongement de la période circadienne ont été décrits chez les souris rTg4510 (Stevanovic, 2017). Des modifications progressives du sommeil et de l’EEG ont également été rapportées chez les souris rTg4510 (Holton, 2020). Cependant, le volume hypothalamique n’a pas été quantifié directement dans ces études.
Découvrez d’autres modèles liés à la protéine tau : Aperçu des modèles de tauopathies, Modèle murin d’ensemencement par des fibrilles préformées de tau (PFF) et Guide des modèles murins de démence frontotemporale (DFT)
À propos du modèle
Le modèle murin « Tau » de Biospective pour la PSP et la CBD administre la protéine tau humaine de type sauvage 2N4R à la substance noire via un vecteur AAV, ce qui entraîne une pathologie tau, une neurodégénérescence dopaminergique, une neuroinflammation, une atrophie visible à l'IRM et des déficits moteurs en l'espace de quelques semaines. Ce modèle est disponible pour des études d'efficacité, de mécanisme d'action et d'interaction avec la cible.
Le modèle murin AAV-Tau présente-t-il une atrophie hypothalamique ?
Les souris AAV-Tau présentent une atrophie hypothalamique significative dans l'hémisphère injecté par rapport à l'hémisphère controlatéral, comme le montrent les IRM in vivo.
Les volumes hypothalamiques dans l’espace natif ont été mesurés à l’aide d’une IRM anatomique à 7 T et de notre logiciel NIGHTWING™, qui fait partie de nos services d’IRM préclinique. Découvrez comment nous mesurons l’atrophie cérébrale chez les modèles de rongeurs. Sur les 15 souris AAV-Tau, le volume hypothalamique ipsilatéral moyen était significativement inférieur au volume hypothalamique controlatéral (test t apparié, t(14) = −4,89, p = 0,0002), avec un effet intra-animal important (d de Cohen = −1,26 ; figure 2).
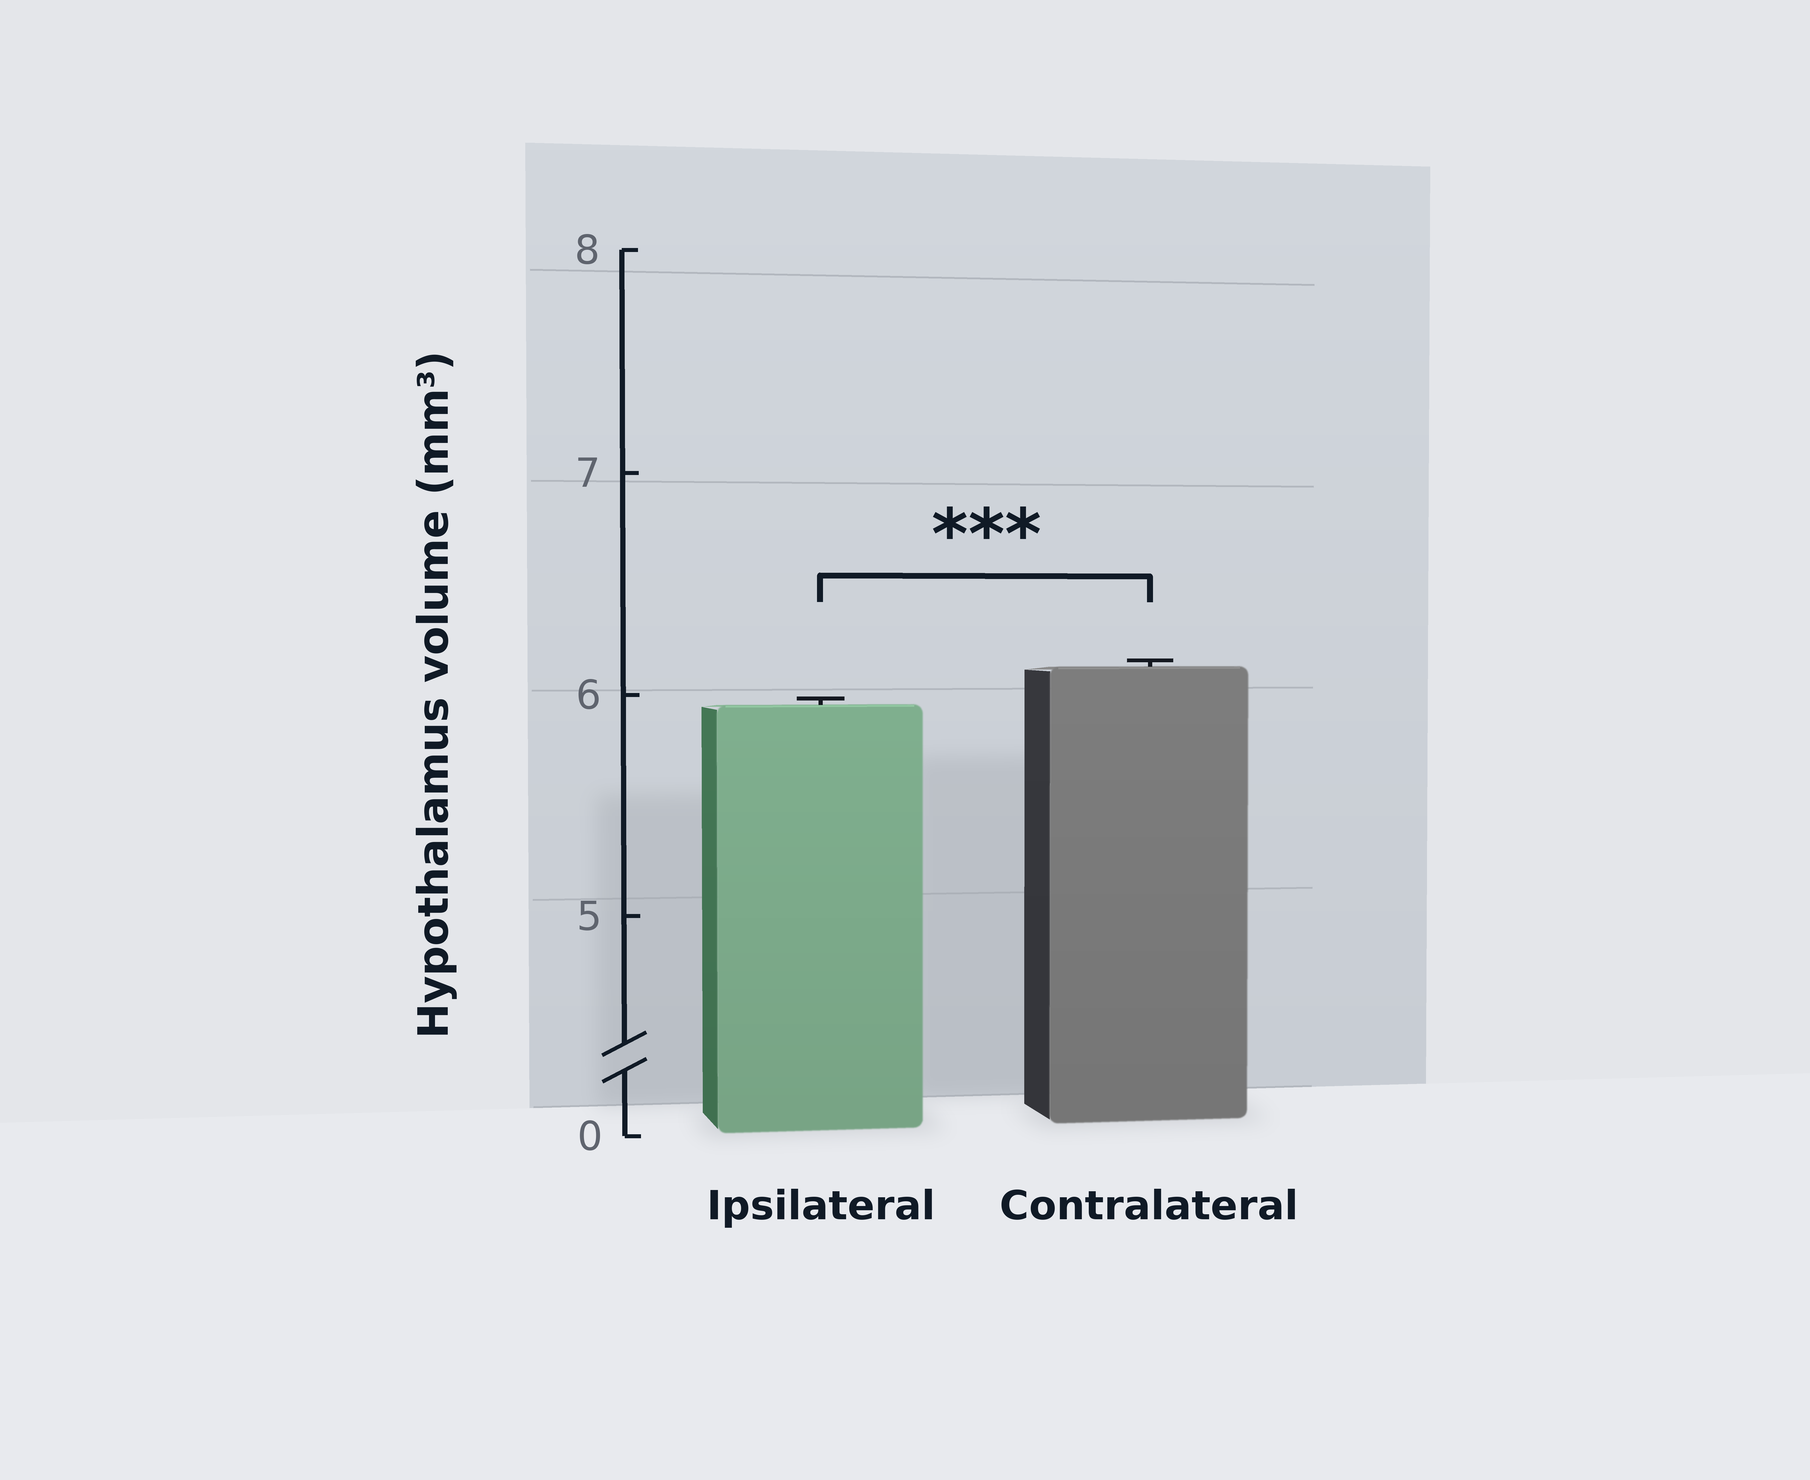
Figure 2. Volumehypothalamique (mm³) dans les hémisphères ipsilatéral (injecté ; gauche, vert) et controlatéral (droite, gris) de souris AAV-Tau, mesuré par IRM 7T in vivo. Test t apparié, t(14) = −4,89, p = 0,0002, n = 15 souris, les deux hémisphères ayant été mesurés chez chaque animal. d de Cohen = −1,26. Les barres indiquent la moyenne ± SEM ; *** p < 0,001.
Les résultats obtenus chez les souris AAV-Tau concordent avec la tendance observée chez l’homme. Cependant, les ampleurs d’effet ne sont pas directement comparables : l’ampleur d’effet chez la souris reflète une comparaison appariée au sein d’un même animal, qui tient compte des variations inter-animaux en termes de taille cérébrale et d’enregistrement, tandis que l’ampleur d’effet chez l’homme compare deux groupes indépendants. Le volume hypothalamique est calculé à partir des mêmes examens déjà acquis pour les critères d’évaluation de l’atrophie de la substance noire, du mésencéphale et du striatum. Il peut donc fournir une mesure structurelle supplémentaire sans nécessiter d’acquisition IRM distincte lorsque ces examens font déjà partie du protocole d’étude.
Place de l’hypothalamus dans le profil IRM du modèle
Sur la même IRM in vivo , la substance noire, le mésencéphale et le striatum ipsilatéraux présentent également une atrophie par rapport à l’hémisphère controlatéral chez les souris AAV-Tau. Ces régions se situent au sein ou en aval de la voie nigrostriatale ciblée par l’injection. L’hypothalamus fournit une mesure supplémentaire provenant d’une région située en dehors de la cible d’injection nigrale. Une seule séance d’IRM permet donc de mettre en évidence les modifications structurelles au sein du système nigrostriatal ciblé ainsi que l’atrophie hypothalamique en dehors du site d’injection. Pour les promoteurs, cette combinaison peut aider à évaluer si les effets d’un traitement s’étendent au-delà du système nigrostriatal ciblé.
Observe-t-on une pathologie tau dans l'hypothalamus des souris AAV-Tau ?
L'immunofluorescence met en évidence la présence de plusieurs formes pathologiques de la protéine tau dans l'hypothalamus des souris AAV-Tau, notamment la protéine tau présentant une altération conformationnelle et positive à MC1, la protéine tau phosphorylée et positive à AT8, ainsi que la protéine tau oligomérique et positive à TOC1. La coloration MC1 est concentrée du côté ipsilatéral à l'injection dans la substance noire.
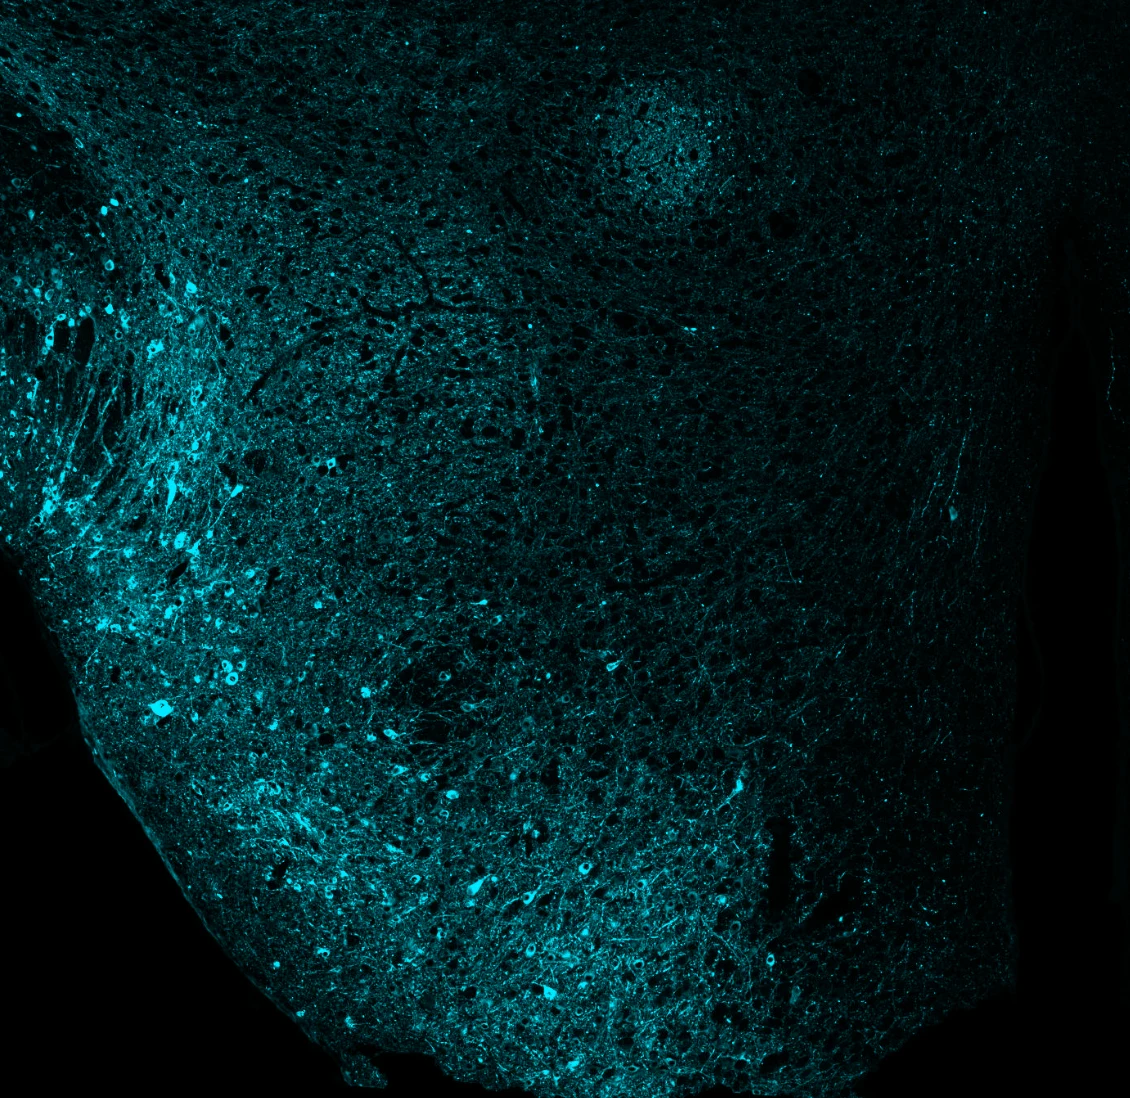
Figure 3. Immunofluorescence MC1 (cyan), indiquant une protéine tau présentant une altération conformationnelle, dans une coupe coronale traversant l’hypothalamus d’une souris AAV-Tau après injection unilatérale d’AAV-hTau (2N4R) dans la substance noire compacte gauche. L'image montre l'hypothalamus ipsilatéral, avec des somas neuronaux et des neurites denses positifs au MC1. L'image s'étend juste au-delà de la ligne médiane du troisième ventricule, visible sous la forme d'une fente verticale sombre à droite.
Le MC1 reconnaît une conformation pathologique de la protéine tau, l’AT8 reconnaît la protéine tau phosphorylée en Ser202/Thr205, et le TOC1 reconnaît la protéine tau oligomérique. La détection de ces trois marqueurs dans l’hypothalamus indique que la pathologie de la protéine tau dans cette région comprend des formes présentant une conformation altérée, phosphorylées et oligomériques. Dans l’hypothalamus ipsilatéral illustré à la figure 3, les corps cellulaires et les prolongements positifs au MC1 sont nombreux. Sur la coupe complète, la coloration controlatérale est clairsemée, ce qui correspond au côté de l’atrophie détectée par IRM. La combinaison de la volumétrie et de la coloration de la protéine tau chez les mêmes animaux permet d’évaluer les modifications structurelles parallèlement à la pathologie de la protéine tau. Ces analyses peuvent être quantifiées à l’aide de notre plateforme d’analyse d’images microscopiques PERMITS™. Cela permet d’étudier la relation entre l’atrophie hypothalamique et la pathologie de la protéine tau dans ce modèle.
Un site pathologique éloigné du site d’injection
L’hypothalamus se situe en dehors de la zone cible de l’injection. L’AAV-hTau est administré dans le SNc du mésencéphale, mais tant l’atrophie détectée par IRM que la protéine tau positive au MC1 sont observées dans l’hypothalamus. Ces résultats indiquent que les modifications pathologiques associées à la protéine tau s’étendent au-delà de la région injectée.
Quel est le lien entre la protéine tau hypothalamique du modèle AAV-Tau et la PSP humaine ?
La pathologie de la protéine tau au niveau de l’hypothalamus chez les souris AAV-Tau pourrait présenter un intérêt clinique, car des études menées chez l’homme ont mis en évidence une accumulation de la protéine tau et une dégénérescence neuronale dans les régions hypothalamiques impliquées dans le sommeil et l’éveil. Ces modifications pourraient contribuer aux troubles du sommeil associés à la PSP (Rastegar-Pouyani, 2026; Oh, 2022; Walsh, 2017).
La même classe d’isoformes de la protéine tau
La PSP est une tauopathie à 4 répétitions (4R) (Kovacs, 2020). Le modèle AAV-Tau exprime la protéine tau humaine 2N4R, ce qui place la protéine tau exprimée dans la même classe d’isoformes que celle caractérisant la PSP.
Vulnérabilité sélective des noyaux hypothalamiques dans la PSP
Des études post-mortem chez l’homme indiquent que l’atteinte hypothalamique dans la PSP varie selon les populations neuronales. Une analyse stéréologique a révélé une diminution de 84 % du nombre de neurones dans le noyau intermédiaire favorisant le sommeil chez les patients atteints d’une PSP à un stade avancé, par rapport à des tissus présentant un stade de Braak faible. Ce noyau a été proposé comme l’équivalent humain du noyau préoptique ventrolatéral chez les rongeurs. Cependant, seuls neuf cerveaux atteints de PSP ont été examinés (Rastegar-Pouyani, 2026). Des inclusions de protéine tau ont été identifiées dans tous les noyaux suprachiasmatiques de la PSP disponibles pour analyse dans un échantillon de cinq cas (De Pablo-Fernández, 2018). Néanmoins, l’atteinte du noyau suprachiasmatique dans les tauopathies reste peu étudiée (Son, 2024).
Conséquences cliniques
Ces résultats pathologiques concordent avec certains aspects des troubles du sommeil et d’autres perturbations cliniques observés dans la PSP. Tant dans la maladie d’Alzheimer que dans la PSP, un plus grand nombre de neurones promoteurs de l’éveil encore en vie est associé à une durée totale de sommeil plus courte (Oh, 2022). Les patients atteints de PSP peuvent dormir moins de cinq heures par nuit (Baschieri, 2026), et les résultats polysomnographiques suggèrent une diminution de la pulsion homéostatique de sommeil (Walsh, 2017). Le poids corporel diminue également au cours des premières années de la PSP, mais pas dans la maladie de Parkinson (Tsuge, 2017).
Tableau 1. Caractéristiques hypothalamiques de la PSP humaine et leur état actuel dans le modèle AAV-Tau de Biospective (données internes de Biospective).
Prochaines étapes : caractérisation de l'hypothalamus prévue par Biospective
Biospective prévoit d’étendre la caractérisation du phénotype hypothalamique dans le modèle AAV-Tau afin de déterminer dans quelle mesure celui-ci reproduit fidèlement les schémas observés dans la PSP humaine. La coloration MC1, AT8 et TOC1 confirme la présence de protéine tau pathologique dans l’hypothalamus. Les prochaines étapes consistent à cartographier les noyaux touchés et à déterminer si leurs neurones sont perdus. Les mesures prévues incluent également des enregistrements non invasifs du cycle veille-sommeil à l’aide de PiezoSleep.
Ces études abordent des questions encore en suspens concernant la PSP humaine. L’hypothalamus n’étant pas considéré comme une région distincte dans le système de stadification neuropathologique cité (Kovacs, 2020), le moment de l’atteinte hypothalamique chez les patients reste incertain. De plus, les noyaux hypothalamiques présentent des degrés de vulnérabilité variables face à la pathologie neurodégénérative ; les noyaux supraoptiques et paraventriculaires, par exemple, sont relativement résistants à de nombreux processus neurodégénératifs (Stewart & Finger, 2021). La cartographie de la pathologie spécifique à chaque noyau dans le modèle permettra de déterminer s’il reproduit la vulnérabilité sélective rapportée dans les études humaines.
Ajoutez un critère d'évaluation par IRM hypothalamique translationnelle à votre prochaine étude sur la protéine tau
Biospective mène en interne des études d'efficacité sur l'AAV-Tau entièrement caractérisées, allant de la chirurgie stéréotaxique et de l'administration du traitement à l'IRM 7T, en passant par l'histologie de la protéine tau et l'analyse des biomarqueurs dans les liquides biologiques, de sorte que chaque résultat provient des mêmes animaux.
Comment l'atrophie hypothalamique peut-elle être exploitée dans les études précliniques sur les médicaments destinés au traitement de la PSP ?
Le volume hypothalamique pourrait constituer un critère d'évaluation translationnel par IRM dans les études d'efficacité de l'AAV-Tau, car une réduction de ce volume a été rapportée chez les patients atteints de PSP et a également été observée dans ce modèle (Kassubek, 2026; données internes de Biospective).
Même structure, même modalité
Biospective quantifie le volume hypothalamique à l’aide de pipelines d’analyse d’images automatisés, tant sur des ensembles de données IRM de rongeurs que sur des ensembles de données IRM humaines. Pour les souris, les mesures sont obtenues à l’aide d’ une IRM préclinique à 7 T; pour les participants humains, le pipeline PIANO™ est appliqué aux données IRM issues de la cohorte 4RTNI.
Lien entre la structure, la pathologie et la biochimie
Les mesures volumétriques peuvent être associées aux marqueurs MC1, AT8 et autres marqueurs de la protéine tau, ainsi qu’à la GFAP et à l’Iba-1/CD68, dans des coupes hypothalamiques provenant des mêmes souris grâce à nos services d’histologie de la protéine tau. Dans notre revue de la littérature, nous n’avons pas identifié d’études quantifiant directement la pathologie gliale dans l’hypothalamus chez les patients atteints de PSP. La quantification des marqueurs gliaux hypothalamiques dans le modèle AAV-Tau pourrait donc contribuer à l’étude d’un aspect potentiellement sous-étudié de la maladie. Les cellules gliales réactives peuvent être caractérisées à l’aide d’ une analyse automatisée de la morphologie microgliale et d’une classification de la morphologie astrocytaire.
Cette même cohorte peut également fournir des mesures biochimiques obtenues à l’aide de dosages immunologiques ultrasensibles et de tests ELISA. Chez les souris AAV-Tau, par rapport aux témoins AAV-null, les taux plasmatiques finaux de tau totale, de GFAP et de NfL sont élevés. La pTau-T181 est élevée dans le plasma et le tissu mésencéphalique ipsilatéral, tandis que les homogénats mésencéphaliques ipsilatéraux présentent des taux accrus de TNF-α, d’IL-6, d’IL-2, d’IL-1β et d’IFN-γ. La dopamine striatale est réduite. Ces biomarqueurs plasmatiques et tissulaires permettent aux promoteurs d’étudier le volume hypothalamique parallèlement aux marqueurs systémiques de la neurodégénérescence et aux mesures locales de la pathologie de la protéine tau, de l’inflammation et de l’intégrité dopaminergique chez les mêmes animaux. Certains de ces biomarqueurs présentent également un intérêt clinique. La NfL plasmatique est élevée dans la PSP et a été associée à la progression clinique et à l’atrophie cérébrale (Rojas, 2016). La GFAP plasmatique peut aider à distinguer la PSP des témoins sains et a été associée à une atrophie du tronc cérébral (Huang, 2023). Ces résultats fournissent des points de comparaison supplémentaires entre les études précliniques et cliniques. En revanche, la p-tau181 plasmatique n’a pas permis de distinguer la PSP des témoins dans la cohorte rapportée par Huang et al. (2023).
Mesures fonctionnelles
Le comportement veille-sommeil peut être évalué de manière non invasive à l’aide du système de surveillance PiezoSleep. Ceci est pertinent car les troubles du sommeil sont très présents dans la PSP (Baschieri, 2026), et les mesures du sommeil ont été associées au nombre de neurones favorisant l’éveil encore en vie dans diverses maladies neurodégénératives (Oh, 2022). L’enregistrement du cycle veille-sommeil et la surveillance du poids corporel font partie intégrante de la caractérisation en cours du modèle AAV-Tau menée par Biospective et pourraient également être intégrés dans les études menées par les promoteurs.
Appel à l'action final
Vous envisagez de mener une étude d'efficacité sur la PSP ou la tauopathie 4R ?
Notre équipe de scientifiques peut concevoir une étude AAV-Tau combinant la volumétrie IRM hypothalamique, nigrale et striatale avec l'évaluation de la pathologie tau, de la neuroinflammation, des biomarqueurs liquidiens et des tests moteurs.
Résumé
L'atrophie hypothalamique est un signe émergent mis en évidence par IRM dans la PSP ; des études d'imagerie publiées font état de volumes hypothalamiques plus faibles chez les patients atteints de PSP que chez les témoins, sans réduction comparable observée dans la maladie de Parkinson (Kassubek, 2026). Des études post-mortem ont également mis en évidence une pathologie tau et une perte neuronale dans les régions hypothalamiques impliquées dans le sommeil, la régulation circadienne et l’éveil (Rastegar-Pouyani, 2026; De Pablo-Fernández, 2018; Oh, 2019). L’analyse par Biospective des données IRM des cohortes 4RTNI et FTLDNI a également mis en évidence une réduction du volume hypothalamique chez les patients atteints de PSP. Dans le modèle murin AAV-Tau, une atrophie hypothalamique ipsilatérale significative s’accompagnait d’une pathologie tau positive aux marqueurs MC1, AT8 et TOC1 en dehors de la zone cible d’injection dans la substance noire. Ensemble, ces résultats plaident en faveur de la volumétrie hypothalamique par IRM comme critère d’évaluation translationnel candidat pour l’évaluation des traitements dans le modèle AAV-Tau.
Nous serions ravis de discuter avec vous de la manière dont l’atrophie hypothalamique et nos autres critères d’évaluation validés pourraient soutenir votre programme de recherche. N’hésitez pas à nous contacter.
Foire aux questions
Foire aux questions