


摘要
简而言之:SOD1 G93A小鼠被广泛用作ALS的动物模型,但在欧洲人群中,SOD1突变仅占散发性ALS病例的约1.2%,占家族性ALS病例的14.8%(Zou,2017)。 人类SOD1突变病例的特征是缺乏散发性及非SOD1家族性ALS病例中常见的TDP-43包涵体(Mackenzie,2007)。 相比之下,rNLS8 hTDP-43ΔNLS小鼠再现了大多数人类ALS特有的细胞质TDP-43蛋白病,其疾病发作由停用多西环素引发,且在发病后抑制转基因时,若干与疾病相关的特征得以逆转(Walker,2015)。 汇总 SOD1 小鼠试验结果显示,无症状期治疗可使加权平均生存期延长 13 天,症状出现后开始治疗可延长 15 天,但未能提供有效的人类治疗方案(Benatar,2007)。 在针对SOD1的候选药物中,应选择SOD1 G93A模型;对于研究TDP-43生物学机制的项目,rNLS8是更合适的默认模型。
视频 1: 60秒速览模型选择 。TDP-43 与 SOD1 病理学、诱导性发病、SOD1 治疗效果汇总,以及 rNLS8 TDP-43 和 SOD1 G93A 肌萎缩侧索硬化症(ALS)小鼠模型的人类一致性图谱。
 点击复制链接
什么是 SOD1 G93A 和 rNLS8 TDP-43 小鼠?
SOD1 G93A小鼠是一种转基因小鼠,其体内过表达突变的人超氧化物歧化酶1(SOD1);而rNLS8小鼠则是一种双基因小鼠,其中缺乏功能性核定位信号(NLS)的人TDP-43受多西环素调控。
这两条品系通过完全不同的蛋白质模拟了肌萎缩侧索硬化症(ALS),而这种差异决定了每种模型最适合解决哪些治疗问题。
SOD1 G93A 小鼠
SOD1 G93A 品系高水平表达人类 SOD1,其第 93 位点发生甘氨酸到丙氨酸的替换,这一变化对酶活性影响甚微。这些小鼠会出现脊髓运动神经元变性、四肢无力及瘫痪,通常在 5 到 6 个月大时死亡。 该模型提供了关键证据,证明显性 SOD1 突变是通过功能获得而非超氧化物歧化酶活性的丧失导致 ALS 的(Gurney,1994)。 自1994年开发以来,该模型已被广泛应用,并据此制定了许多ALS临床前研究方案(Mead,2011)。
然而,其表型受转基因拷贝数和表达水平的影响很大。标准的高拷贝品系携带多达25个转基因拷贝,通常在130天左右死亡。相比之下,仅携带4个拷贝且表达水平极低的品系表现出明显减弱的表型: 肌肉无力可能要到9个月大时才会出现,到18个月时仅有74%的小鼠出现症状,而约20%存活超过24个月的小鼠则未表现出任何运动症状(Deitch,2014)。
rNLS8小鼠
rNLS8小鼠模型携带一个由NEFH启动子驱动的tet-off驱动子,以及一个编码具有缺陷性核定位信号(ΔNLS)的人源TDP-43的响应转基因,从而可通过多西环素抑制神经元中的表达,并在停药后诱导其表达。
诱导后,大脑和脊髓中会产生不溶性的、磷酸化胞质TDP-43,同时伴随内源性小鼠核TDP-43的丢失、脑萎缩、肌肉去神经支配、运动神经元丧失以及进行性运动功能障碍,最终可能导致死亡。 疾病发作后恢复多西环素治疗可减轻磷酸化 TDP-43 引起的病理变化,恢复核内 TDP-43 水平,限制运动神经元的进一步丧失,增加肌肉神经支配,改善运动功能并延长寿命(Walker,2015)。 Biospective 利用这些小鼠及相关TDP-43 转基因模型,作为其更广泛的ALS 模型体系的一部分。
由于疾病发作时间由实验设计而非基因型和年龄决定,因此可以同步诱导各组小鼠发病,并在疾病发作后抑制转基因表达,以研究功能恢复的可能性——这是SOD1模型无法实现的实验操作。
表1. SOD1 G93A与rNLS8 TDP-43小鼠模型的直接对比。
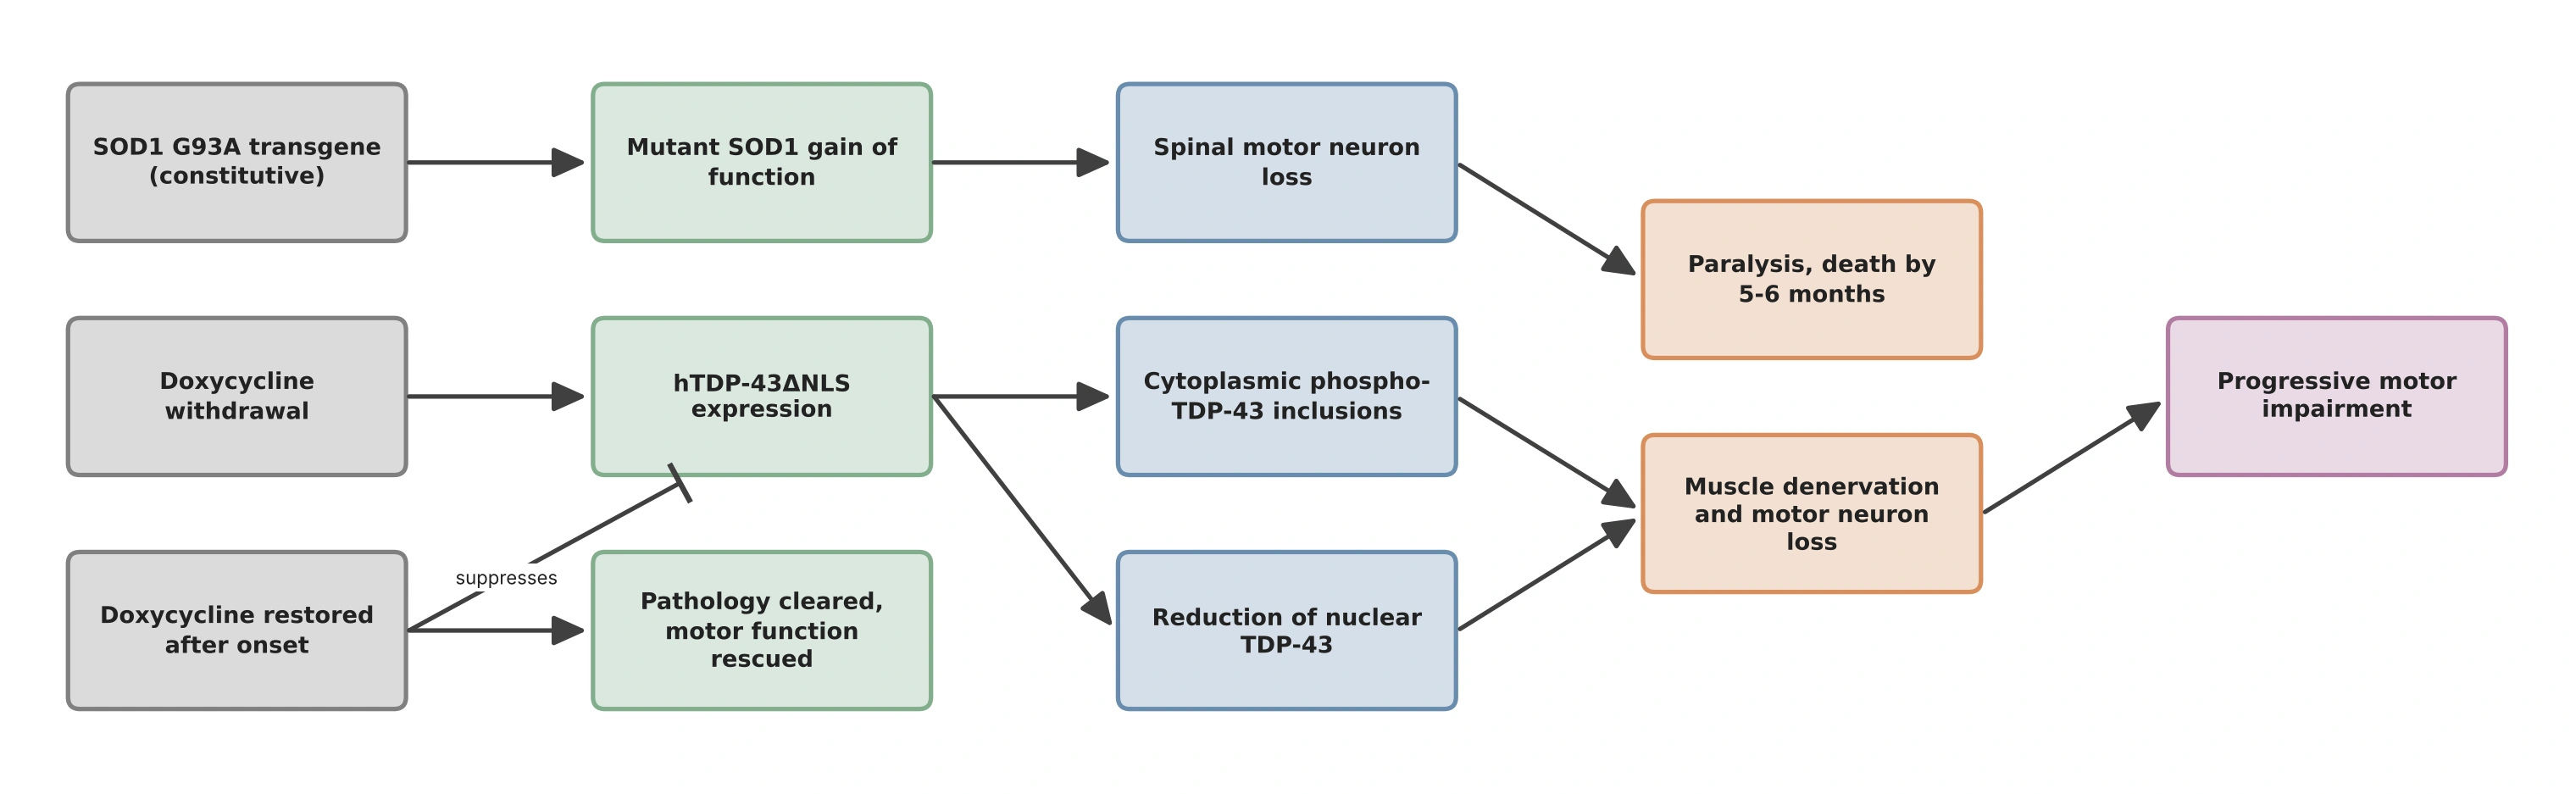
两种疾病级联反应的示意图。SOD1 G93A转基因呈持续表达,而rNLS8小鼠中hTDP-43ΔNLS的表达则由停用多西环素触发,且在疾病发作后可再次被抑制。 来源:Gurney 等,1994;Walker 等,2015。
每种模型与人类肌萎缩侧索硬化症(ALS)的病理特征吻合程度如何?
rNLS8小鼠再现了绝大多数ALS患者中发现的蛋白质病理学特征,而SOD1 G93A小鼠则再现了一种具有特征性不同病理学表现的罕见遗传亚型。这是这两个模型之间最具决定性的一点差异,因为它决定了在小鼠中鉴定出的靶点是否也与大多数患者相关。
在大多数人类ALS病例中均可发现病理性的TDP-43
在大多数ALS病例中,TDP-43会发生积累,而FUS病理仅见于一小部分病例。结合额颞叶痴呆中类似的病理特征,这些发现支持应基于潜在的聚集蛋白(而非仅基于临床综合征)对这两种疾病进行神经病理学分类(Mackenzie,2010)。
与SOD1相关的ALS较为罕见,且其包涵体具有独特性
综合111项遗传学研究的结果,在欧洲人群中,14.8%的家族性ALS病例和1.2%的散发性ALS病例中发现了SOD1突变。 在亚洲人群中,SOD1是ALS最常见的致病基因,占家族性病例的30.0%和散发性病例的1.5%(Zou, 2017)。 根据人群患病率数据推算,这些数字相当于2020年全球121,028例现存ALS病例中约有2,876例为SOD1相关病例,其中53%为散发性而非家族性(Brown, 2021)。
病理学上的区别则更为明显。在一项针对111例ALS病例的尸检研究中——其中59例为散发性病例,15例为SOD1突变病例, 11例SOD1阴性的家族性ALS,以及26例痴呆病例——所有散发性、SOD1阴性的家族性及痴呆相关病例的神经元和胶质细胞包涵体均对泛素和TDP-43呈双重阳性。 相比之下,SOD1突变病例虽存在泛素阳性包涵体,但均未显示TDP-43免疫反应性,且其他组别中通过生化方法检测到的病理TDP-43亚型在这些病例中均未发现。 作者得出结论:SOD1突变病例可能通过不同的机制发生退行性变,可能并不代表散发性ALS的家族性对应类型(Mackenzie,2007)。 在 SOD1 p.Gly141X 家族中也观察到了同样的模式,该家族中两名接受尸检的成员均具有 SOD1 阳性、TDP-43 阴性的包涵体,其中包括一名表现为额颞叶痴呆样疾病的先证者(Nakamura,2015)。
这种区别很明显,但并非绝对
在一项规模较小的脊髓病例系列研究中,四例 SOD1 病例中有三例未发现 TDP-43 阳性包涵体,而一例患者仅有一个 TDP-43 阳性包涵体。 因此,作者将SOD1相关家族性ALS中的TDP-43包涵体描述为“罕见”,而非“完全缺失”(Maekawa, 2009)。这些证据同样来自规模相对较小的尸检队列,其中最大的一组包含15例SOD1病例,其余两组分别为4例和2例。
对于专注于TDP-43定位异常、隐性剪接或核内TDP-43丢失下游后果的研究项目,Biospective关于TDP-43在ALS和FTD中作用的背景资料对相关生物学机制进行了更详细的阐述。
这两种模型在发病、进展和可逆性方面有何不同?
在SOD1 G93A小鼠中,疾病的发病遵循转基因的时间进程,且无法预防。 相比之下,rNLS8小鼠的发病可通过停用多西环素或采用特定的多西环素给药方案进行实验性控制,并且可以通过恢复多西环素给药在疾病进展过程中期阻止病情发展,或通过调整剂量来延缓病情进展。 就研究设计而言,这一区别至关重要:SOD1 G93A 使研究人员能够观察疾病的进展,而 rNLS8 则使他们能够主动控制疾病。
实验控制的疾病发作
由于多西环素会抑制 hTDP-43ΔNLS 的表达,rNLS8 小鼠的疾病发作是由饮食转换触发的,而不是由动物的年龄决定的。 这使得可以同步诱发各组小鼠,并将治疗开始时间定在相对于疾病发作而非实际年龄的特定时间点(Walker,2015)。
选择性易损性与退化顺序
rNLS8小鼠的变性是选择性的,而非广泛性的。在转基因表达八周后,舌下神经核和脊髓中明显出现运动神经元丢失,而动眼神经、三叉神经和面神经神经元则未受影响(在“Off Dox”模型中)。 在脊髓内,快疲劳型运动神经元发生退化,而慢型运动神经元则能存活至疾病终末期。 轴突退化也呈现选择性模式,首先发生在快缩肌纤维上,而慢缩肌纤维则保持受神经支配(Spiller,2016)。这种选择性对终点设计具有重要意义:所选取的肌肉样本可能决定去神经支配现象能否被检测到。
逆转:哪些功能可恢复,哪些不可恢复
疾病发作后恢复多西环素治疗,可逆转rNLS8小鼠的多种疾病相关特征:磷酸化TDP-43病理改变被清除,核内TDP-43水平恢复至对照组水平,进一步的运动神经元丧失被阻止,肌肉神经支配显著增加, 运动功能得到改善,且寿命得以延长(Walker,2015)。
然而,有两个重要的限制条件影响着对这种恢复现象的解读。首先,功能恢复并不反映已丢失的快速疲劳型运动神经元群体的替代。相反,存活的运动神经元会萌发新突触,重新支配被腾出的终板(Spiller, 2016)。 其次,恢复情况与年龄相关。当在12个月及以上的小鼠中诱导转基因表达时,与年轻小鼠相比,疾病进展加速,且转基因抑制后的功能恢复并不完全。再神经支配往往仅为部分恢复,神经肌肉接头褶皱仍较为紊乱(Spiller, 2016)。
一篇2025年的预印本研究揭示了另一个维度:rNLS8小鼠在早期便会出现运动功能以外的行为异常,且这些异常即使在运动功能恢复后仍会持续存在。 这些持续存在的表型伴随着突触基因表达的变化和剪接变化,这表明运动功能的恢复并不一定意味着更广泛的神经系统恢复(Luan,2025)。
延长治疗窗口
标准的 rNLS8 实验方案会导致疾病相对快速进展,约 4 至 6 周内即可观察到可测量的功能衰退。这使得用于给药候选治疗方案并检测显著疗效的治疗窗口期十分狭窄。 为克服这一局限,Biospective开发了“低多西环素(Low Dox)”版rNLS8模型,该模型诱导的疾病进程较温和,进展更缓慢。通过延长疾病修饰效果的评估周期,该方法为治疗干预和评估提供了更大的灵活性。
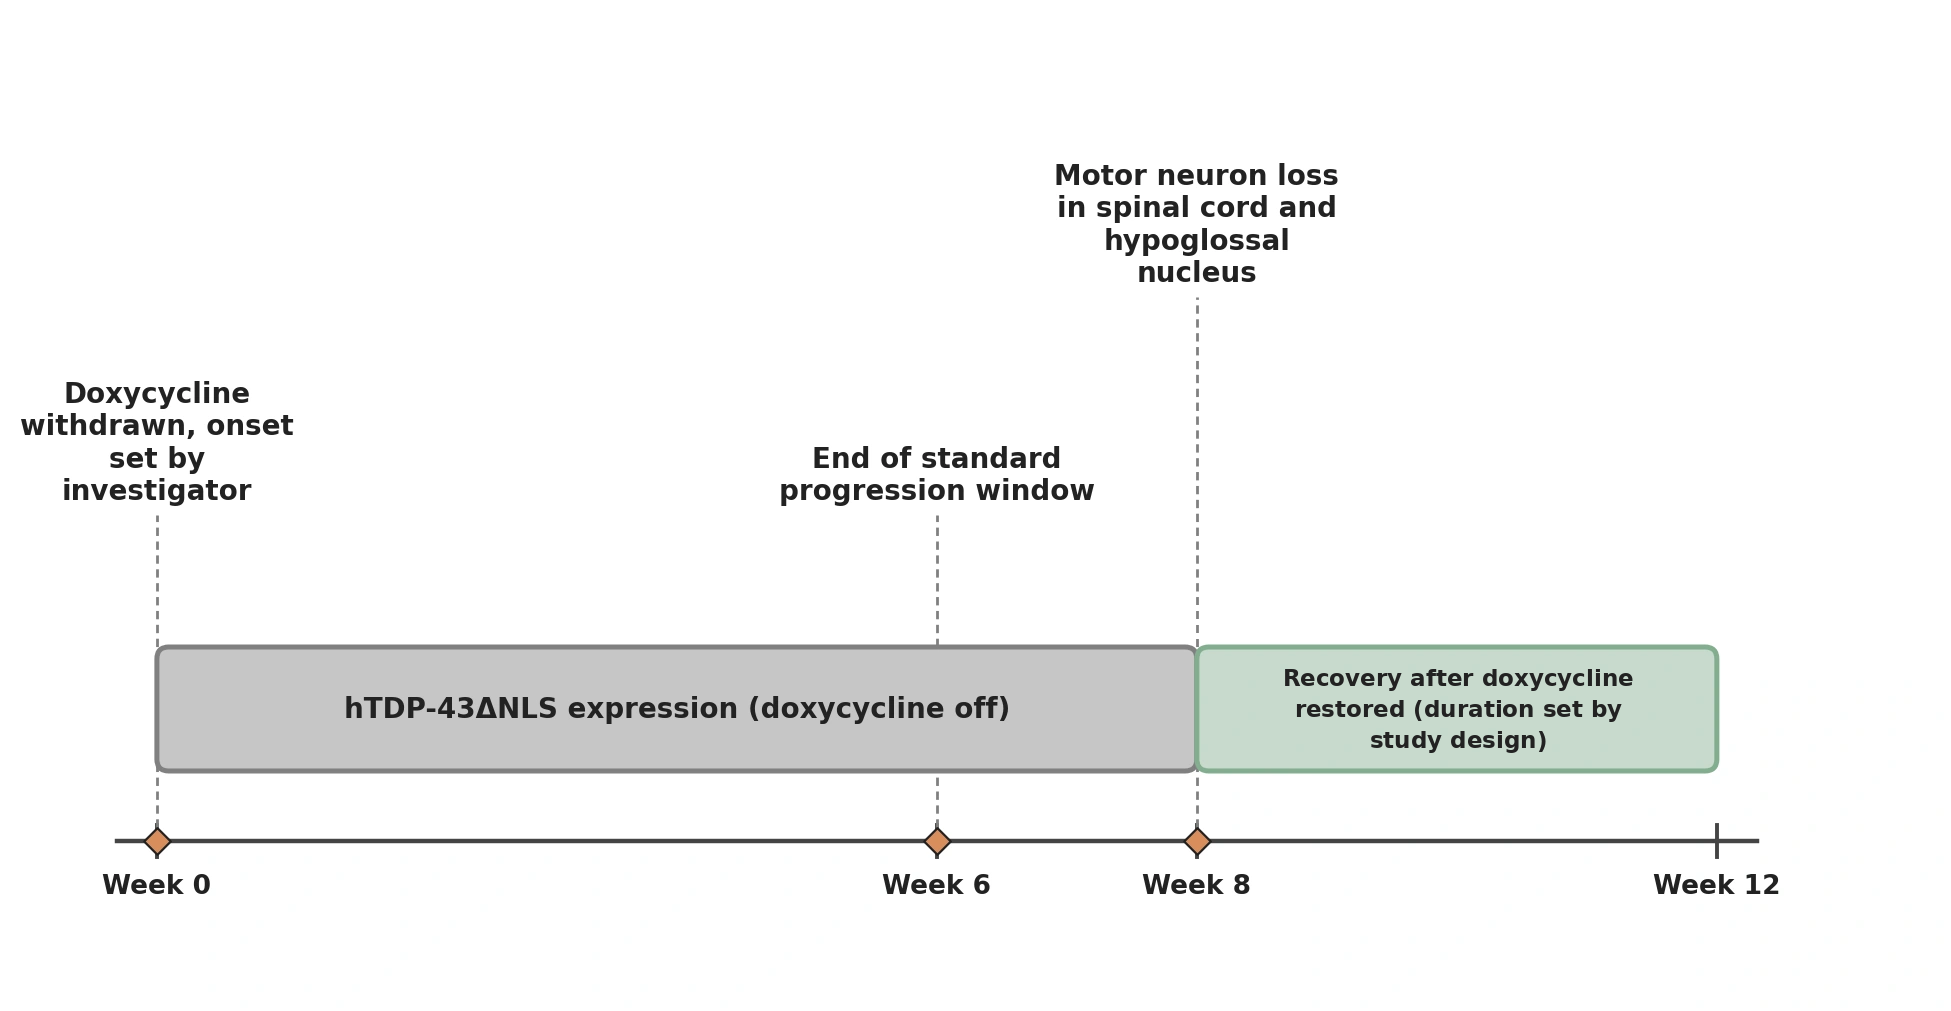
基于文献报道的rNLS8诱导方案示意图:起始时间设定为第0周停用多西环素,标准进展期持续至第6周左右,表达8周后,脊髓和舌下神经核中出现运动神经元丧失。 恢复期始于恢复多西环素给药;其持续时间取决于研究设计,而非可测量的终点指标。来源:Walker 等,2015;Spiller 等,2016
请注意,Biospective 已开发出针对评估治疗干预措施而优化的、具有不同研究时间线的替代方案。欢迎联系我们,与我们的科学家共同探讨您治疗项目的潜在研究设计。
为什么SOD1 G93A在临床应用方面成效有限?
在SOD1小鼠身上取得的治疗成功并未转化为针对人类ALS的有效治疗方法。已发表的分析指出,造成这一转化鸿沟的根本原因在于两个截然不同的挑战:所追求的治疗效果相对有限,以及显著的生物学变异性使得治疗效果的检测变得复杂。
治疗效果一直较为有限
为专门探究这一转化研究中的失败,针对SOD1小鼠治疗试验开展了一项随机效应荟萃分析。在症状出现前即开始治疗的研究中,治疗组与对照组动物在发病时间、生存期及生存间隔方面的加权均值差分别为12天、13天和5天。 当治疗在症状出现时开始,相应的差异为:生存期延长15天,生存间隔延长8天(Benatar,2007)。这些相对温和的效果很难与该模型固有的变异性进行可靠区分。
生物学变异性显著且具有系统性
转基因拷贝数。疾病发作和生存期与突变型 SOD1 转基因的拷贝数直接相关。携带约 25 个拷贝的标准高拷贝品系,通常在 130 天左右达到终末期。 相比之下,四拷贝品系仅在9个月龄时才出现虚弱症状;到18个月龄时,74%的小鼠已受影响,而约20%年龄超过24个月的小鼠仍未出现运动症状(Deitch,2014)。 因此,同一品系内的拷贝数变异或漂移会显著改变疾病的时间进程及所测量的终点指标。
遗传背景比性别更为重要。一项针对97项研究的荟萃分析,考察了疾病起病时间、病程和寿命,结果发现,与性别匹配的B6SJL小鼠相比,具有C57BL/6遗传背景的SOD1 G93A小鼠起病时间推迟、寿命更长且病程更长。 性别效应同样存在:雌性 B6SJL 小鼠通常发病较晚,存活时间也比雄性更长。然而,在 C57BL/6 小鼠中,雌性虽然发病较晚,但并未表现出相应的生存优势。用于评估发病时间的方法——包括震颤观察和旋转杆测试——得出的估计值也存在显著差异。 总体而言,尽管突变型SOD1的表达水平相当,但遗传背景对疾病结局的影响大于性别(Pfohl, 2015)。
遗传背景的影响不仅限于转基因表达。遗传背景之间的差异不能简单地用转基因拷贝数或突变蛋白丰度的变化来解释。即使在这些因素匹配的情况下,携带SOD1 G93A转基因的C57和小鼠与129Sv小鼠仍表现出不同的疾病进展速度。 在症状出现时,快速进展型 129Sv-SOD1G93A 小鼠中有 1,276 个基因表达发生差异,而缓慢进展型 C57-SOD1G93A 小鼠中仅有 346 个(Q ≤ 0.01)。 进展迅速的品系表现出线粒体、蛋白质降解和轴突运输通路的下调,而进展较慢的品系则表现出补体激活以及神经保护基因的上调(Nardo,2013)。
该领域作何回应
这些变异来源已广受认可,针对这些问题的应对措施主要集中在提高实验一致性上。研究发现,杂交 SJLxC57 SOD1 G93A 小鼠存在与遗传背景相关的混杂因素,若未得到充分控制,这些因素可能会增加实验噪声并产生假阳性的治疗效应。 在所讨论的研究中,每个实验组需要约24只动物。随后,研究人员开发了一种疾病进程更为一致的近交系C57BL/6 SOD1 G93A品系,部分原因正是为了减轻这一实验负担(Mead, 2011)。
控制变异性并不能解决疾病相关性问题
这并不意味着 SOD1 G93A 是一个糟糕的模型。相反,这突显了为获得可靠且可重复的结果,必须在多大程度上控制实验变异性。但还有另一项方法学严谨性无法克服的局限性:SOD1 相关的 ALS 仅占人类 ALS 病例中极小的一部分。 降低变异性可以提高对所观察到的治疗效果真实性的信心,但无法证明其潜在的疾病机制能代表更广泛的ALS人群。这是一个构念效度的问题,与实验可重复性的挑战截然不同。
模型选择如何影响研究持续时间和队列规模?
确定您的ALS模型研究的范围
请向我们说明您的作用机制、治疗方式和时间表,我们的团队将据此设计一项rNLS8研究:包括诱导方案、给药窗口以及相关终点指标——这些均基于我们在该模型中开展疗效研究的丰富经验。
确定您的ALS模型研究的范围
请向我们说明您的作用机制、治疗方式和时间表,我们的团队将据此设计一项rNLS8研究:包括诱导方案、给药窗口以及相关终点指标——这些均基于我们在该模型中开展疗效研究的丰富经验。
模型选择决定了实验的持续时间、为在模型固有变异性背景下检测治疗效果所需的动物数量,以及是否可以纳入逆转组。SOD1 G93A和rNLS8会带来不同的实验限制,且两者在成本方面均无绝对优势。
研究时长:固定或可调整
针对 SOD1 G93A 小鼠的常规治疗研究通常持续三到四个月(Mead,2011)。标准型(Off Dox)rNLS8 小鼠在停用多西环素后,病情进展约需六周。尽管时间较短,但这种相对较快的病情进展速度可能会限制需要长期给药的治疗研究。
rNLS8模型的“低多西环素(Low Dox)”版本通过饮食中多西环素的调节来延缓疾病进展,从而解决了这一局限性。 Biospective通常采用该方案开展约8周的研究,与标准的“停用多西环素(Off Dox)”模型相比,提供了更长的干预窗口期。因此,rNLS8在确定实验时间表方面具有灵活性,而非强行规定固定的疾病进程。
队列规模
对于 SOD1 G93A 小鼠,已发表的临床前指南明确指出需要控制实验变异性。在 SJLxC57 杂交小鼠中,如果未能充分控制与遗传背景相关的混杂因素,可能会增加生物学噪声并产生假阳性的治疗效果。 因此,指南建议采用同窝配对的治疗组和对照组,每组24只动物;对纳入治疗研究的每只小鼠进行转基因拷贝数分析;并对因非ALS相关事件死亡的同窝小鼠数据进行剔除(Mead,2011)。
相比之下,Biospective公司在其“Off Dox”和“Low Dox” rNLS8模型中进行研究时,通常每组仅使用12-15只小鼠。
仅rNLS8实验组才具备这一可能性
rNLS8的一个显著优势在于能够纳入逆转组。由于在疾病发作后可通过恢复多西环素来抑制转基因表达,研究人员可以评估在特定队列中可实现的恢复程度。 这为评估候选疗法提供了一个重要的基准:与其仅将治疗效果与未经治疗的疾病进展进行比较,不如将候选疗法的疗效与关闭致病转基因后可能实现的恢复程度进行对比(Walker,2015)。 而SOD1 G93A等构成性模型则无法提供这种实验控制。
Biospective 能在 rNLS8 TDP-43 小鼠中测量哪些指标?
Biospective 提供端到端的 rNLS8 有效性研究,涵盖从疾病诱导到治疗剂量给药的全过程,涉及体液生物标志物、电生理学、行为测试、成像以及定量组织病理学。所选的评估指标旨在反映该模型中观察到的具体病理和功能变化。
体液生物标志物
血清神经丝轻链(NfL)是 rNLS8 小鼠中已报道的对治疗反应最敏感的生物标志物之一。 在一项主动免疫研究中,尽管体重、磷酸化 TDP-43 病理变化或胶质增生均未出现可检测到的变化,但使用含磷酸化 Ser409/410 的 C 端 TDP-43 肽进行治疗后,血清 NfL 水平显著降低(Riemenschneider,2023)。
Biospective 提供血浆、血清和脑脊液中神经丝轻链的测定服务,可配合更广泛的体液和细胞生物标志物检测项目,实现生物标志物的纵向监测。
神经肌肉接头(NMJ)完整性
由于 rNLS8 小鼠的神经脱髓鞘主要影响快缩肌纤维,而慢缩肌纤维则保持相对完好的神经支配,因此肌肉的选择对于检测与疾病相关的变化至关重要(Spiller,2016)。
Biospective 通过神经肌肉接头染色和定量分析,评估各肌肉的神经支配状况。更多详情请参阅我们关于ALS 模型中 NMJ 形态学及ALS 神经肌肉接头显微镜观察的资源。
TDP-43病理学与神经炎症
Biospective 可定量评估人类 TDP-43 的表达、磷酸化 TDP-43 聚集体(p409/410)以及神经炎症变化,包括反应性星形胶质细胞和活化的小胶质细胞。 这些终点指标通过多重免疫荧光显微镜和定量图像分析进行评估,为病理学和神经炎症反应提供了互补的测量手段。
运动功能与行为
功能评估包括握力测试和纵向运动评分,其中包含后肢抓握、栅栏敏捷性测试及震颤等指标。这些终点指标有助于描述疾病进展并评估治疗效果。Biospective 通过运动功能测试和更广泛的行为测试来实施这些评估。
电生理学与活体成像
Biospective 进行电生理评估,包括CMAP 和 MUNE,并可利用磁共振成像(MRI)评估脑萎缩。这些方法共同提供了纵向、非终点性测量指标,与行为评估及终点组织病理学形成互补。
综合研究实施
Biospective 通过内部动物服务部门管理整个实验工作流程,涵盖从疾病诱导、多西环素剂量滴定,到治疗给药、纵向评估以及体液和组织采集的各个环节。将这些能力整合到单一研究中,使得在协调一致的实验设计框架下,能够收集并评估多个互补的终点指标。
SOD1 G93A 还是 rNLS8:哪种 ALS 模型更适合您的治疗方案?
对于大多数针对突变型SOD1以外机制的ALS治疗项目而言,rNLS8 TDP-43小鼠是开展临床前治疗研究更合适的模型。然而,对于专门针对SOD1相关疾病的项目,SOD1 G93A小鼠仍然是合适的选择。 决定性因素应是所研究的作用机制及其与目标患者群体的相关性。TDP-43蛋白病变是绝大多数ALS病例中具有决定性的病理特征(Mackenzie,2010)。
在以下情况下应选择 SOD1 G93A 模型……
您的候选药物直接针对突变型 SOD1,包括反义寡核苷酸(ASOs)、基因沉默、SOD1 聚集或 SOD1 蛋白处理。在此情况下,该模型表达了相关的人类疾病相关靶点,且经遗传学定义的患者群体提供了明确的转化医学依据。 SOD1 G93A 还受益于三十余年的研究成果,包括成熟的实验方案、疾病发病标准以及历史对照数据(Gurney,1994;Mead,2011)。 当监管机构或科学评审人员期望与历史上的 SOD1 靶向治疗研究保持连续性时,该模型也可能是首选。在权衡这些优势时,必须同时考虑该模型的生物学变异性。 研究设计应考虑遗传背景和转基因拷贝数,包括适当的同窝配对、组别规模、拷贝数分析,以及针对因非ALS相关事件而失踪的动物的预先定义的排除标准(Mead, 2011)。
在以下情况下选择 rNLS8 TDP-43 小鼠……
您的候选治疗药物针对TDP-43定位异常、细胞质中TDP-43聚集、核内TDP-43功能丧失、隐性剪接,或下游的神经炎症及神经轴突病理。 SOD1 G93A 无法直接针对这些机制:SOD1 相关的 ALS 与大多数其他形式的 ALS 中观察到的 TDP-43 蛋白病具有显著差异,SOD1 突变型疾病中通常不存在 TDP-43 包涵体(Mackenzie, 2007;Mackenzie, 2010)。当实验灵活性至关重要时,rNLS8也特别有用。 通过多西环素调控的疾病诱导,研究人员能够同步疾病发作时间、调整疾病进展时间窗口,并引入逆转组分,以评估在抑制致病转基因后可能达到的恢复程度(Walker, 2015)。
为何 rNLS8 是大多数 ALS 研究项目的更佳默认选择
SOD1相关性ALS在整体患者群体中所占比例相对较小,在欧洲人群中约占散发性ALS病例的1.2%,占家族性ALS病例的14.8%(Zou,2017)。 因此,对于不专门针对突变型SOD1的治疗项目而言,SOD1 G93A模型在疾病机制相关性方面存在重要局限性。 SOD1小鼠研究的汇总分析报告显示,治疗效果有限——发病时间或生存期仅有轻微改善,且与转基因拷贝数和遗传背景相关联的变异性很大(Benatar,2007;Deitch,2014;Pfohl,2015),这一局限性因此进一步加剧。 对于针对TDP-43病理机制的研究项目,rNLS8提供了与疾病机制更直接相关的模型,具有可实验控制的发病时间、可调节的疾病进展速度,以及评估可逆性的能力。
联系我们
我们的团队很乐意解答您在选择SOD1 G93A和rNLS8 TDP-43小鼠模型用于ALS疗效研究时遇到的任何疑问,或提供有关我们用于治疗疗效研究的神经退行性疾病模型的具体信息。
我们的团队很乐意解答您在选择SOD1 G93A和rNLS8 TDP-43小鼠模型用于ALS疗效研究时遇到的任何疑问,或提供有关我们用于治疗疗效研究的神经退行性疾病模型的具体信息。
进一步了解我们的ALS模型
Biospective 维护了一系列用于研究肌萎缩侧索硬化症(ALS)及相关 TDP-43 蛋白病变的啮齿类动物模型,每种模型均配有经过验证的检测指标和研究方案。
常见问题解答
常见问题解答
参考文献
关键词
相关内容
相关内容