


Souris SOD1 G93A et souris rNLS8 TDP-43 dans le cadre des études sur la SLA
En quoi les deux principaux modèles murins de la SLA diffèrent-ils en termes de validité conceptuelle, de déroulement de la maladie, de taille de la cohorte et de choix des critères d'évaluation ?
 Que sont les souris SOD1 G93A et rNLS8 TDP-43 ?
- Dans quelle mesure chaque modèle reflète-t-il la pathologie de la SLA humaine ?
- En quoi l'apparition, l'évolution et la réversibilité diffèrent-elles entre les deux modèles ?
- Pourquoi la mutation SOD1 G93A n'a-t-elle donné lieu qu'à des applications cliniques limitées ?
- En quoi le choix du modèle influe-t-il sur la durée de l'étude et la taille de la cohorte ?
- Quels paramètres Biospective permet-il de mesurer chez les souris rNLS8 TDP-43 ?
- SOD1 G93A ou rNLS8 : quel modèle de SLA convient le mieux à votre programme thérapeutique ?
Résumé
En résumé : les souris SOD1 G93A sont largement utilisées comme modèle animal de la SLA, mais les mutations du gène SOD1 ne représentent qu’environ 1,2 % des cas sporadiques et 14,8 % des cas familiaux de SLA dans les populations européennes (Zou, 2017). Les cas humains porteurs d’une mutation du gène SOD1 se caractérisent par l’absence des inclusions de TDP-43 observées dans les cas de SLA sporadique et de SLA familiale non liée au gène SOD1 (Mackenzie, 2007). En revanche, les souris rNLS8 hTDP-43ΔNLS reproduisent la protéinopathie cytoplasmique liée à la TDP-43 caractéristique de la plupart des SLA humaines, l’apparition de la maladie étant déclenchée par l’arrêt de l’administration de doxycycline et plusieurs traits associés à la maladie étant inversés lorsque le transgène est supprimé après l’apparition de la maladie (Walker, 2015). Les essais regroupés sur des souris SOD1 ont montré des gains de survie moyens pondérés de 13 jours avec un traitement présymptomatique et de 15 jours avec un traitement initié à l’apparition des symptômes, sans pour autant déboucher sur un traitement efficace chez l’homme (Benatar, 2007). Choisissez SOD1 G93A pour les candidats ciblant la SOD1 ; pour les programmes portant sur la biologie de la TDP-43, rNLS8 constitue le meilleur modèle par défaut.
Vidéo 1 : Le choixdu modèle en 60 secondes. Pathologie TDP-43 versus SOD1, apparition inductible, effets combinés du traitement anti-SOD1 et carte de concordance humaine pour les modèles murins de SLA rNLS8 TDP-43 et SOD1 G93A.
 Cliquez pour copier le lien
Que sont les souris SOD1 G93A et rNLS8 TDP-43 ?
Les souris SOD1 G93A sont des souris transgéniques qui surexpriment la superoxyde dismutase 1 (SOD1) humaine mutante, tandis que les souris rNLS8 sont des souris bigéniques dans lesquelles la protéine TDP-43 humaine, dépourvue d’un signal de localisation nucléaire (NLS) fonctionnel, est régulée par la doxycycline.
Ces deux lignées modélisent la SLA à partir de protéines totalement différentes, et c’est cette différence qui détermine les questions thérapeutiques auxquelles chaque modèle est le mieux à même de répondre.
La souris SOD1 G93A
La lignée SOD1 G93A exprime des niveaux élevés de SOD1 humaine présentant une substitution glycine-alanine en position 93, une modification qui n’a que peu d’effet sur l’activité enzymatique. Ces souris développent une dégénérescence des motoneurones de la moelle épinière, une faiblesse des membres et une paralysie, et meurent généralement entre cinq et six mois. Ce modèle a fourni des preuves décisives que les mutations dominantes de la SOD1 provoquent la SLA par un gain de fonction plutôt que par une perte d’activité dismutase (Gurney, 1994). Ce modèle a été largement utilisé depuis sa mise au point en 1994, et de nombreux protocoles précliniques sur la SLA ont été élaborés à partir de celui-ci (Mead, 2011).
Cependant, son phénotype est fortement influencé par le nombre de copies du transgène et son niveau d’expression. La lignée standard à haut nombre de copies porte jusqu’à 25 copies du transgène et meurt généralement vers 130 jours. En revanche, une lignée à très faible expression ne portant que quatre copies présente un phénotype nettement atténué : la faiblesse peut ne pas apparaître avant l’âge de neuf mois, seules 74 % des souris sont touchées à 18 mois, et environ 20 % des souris survivant au-delà de 24 mois ne présentent aucun symptôme moteur (Deitch, 2014).
Modèle rNLS8 à faible teneur en Dox
La lignée rNLS8 « Low Dox », exclusive à Biospective, conserve la pathologie TDP-43 du modèle standard tout en élargissant la fenêtre temporelle pendant laquelle un candidat peut recevoir une dose et un effet peut être détecté.
Pathologie liée à la protéine TDP-43
Ce modèle reproduit la protéinopathie cytoplasmique liée à la protéine TDP-43, qui caractérise la grande majorité des cas de SLA chez l'homme, et permet d'éliminer cette protéinopathie lorsque le transgène est inactivé.
Apparition inductible de la maladie
L'arrêt de la doxycycline déclenche la maladie selon votre calendrier ; ainsi, les cohortes sont induites de manière synchrone et le traitement débute à un moment précis par rapport à l'apparition de la maladie plutôt qu'en fonction de l'âge.
Modèle rNLS8 à faible teneur en Dox
La lignée rNLS8 « Low Dox », exclusive à Biospective, conserve la pathologie TDP-43 du modèle standard tout en élargissant la fenêtre temporelle pendant laquelle un candidat peut recevoir une dose et un effet peut être détecté.
Pathologie liée à la protéine TDP-43
Ce modèle reproduit la protéinopathie cytoplasmique liée à la protéine TDP-43, qui caractérise la grande majorité des cas de SLA chez l'homme, et permet d'éliminer cette protéinopathie lorsque le transgène est inactivé.
Apparition inductible de la maladie
L'arrêt de la doxycycline déclenche la maladie selon votre calendrier ; ainsi, les cohortes sont induites de manière synchrone et le traitement débute à un moment précis par rapport à l'apparition de la maladie plutôt qu'en fonction de l'âge.
La souris rNLS8
Le modèle murin rNLS8 est porteur d'un gène tet-off piloté par le promoteur NEFH, associé à un transgène répondeur codant pour la protéine TDP-43 humaine dotée d'un signal de localisation nucléaire défectueux (ΔNLS), ce qui permet de supprimer l'expression neuronale à l'aide de la doxycycline et de l'induire par son retrait.
L'induction entraîne la formation de TDP-43 cytoplasmique phosphorylée et insoluble dans le cerveau et la moelle épinière, la disparition de la TDP-43 nucléaire endogène de la souris, une atrophie cérébrale, une dénervation musculaire, une perte de motoneurones et une altération motrice progressive pouvant conduire à terme au décès. La réintroduction de la doxycycline après l’apparition de la maladie réduit la pathologie liée à la TDP-43 phosphorylée, rétablit les niveaux de TDP-43 nucléaire, limite la perte supplémentaire de motoneurones, augmente l’innervation musculaire, améliore la fonction motrice et prolonge la durée de vie (Walker, 2015). Biospective utilise ces souris et d’autres modèles transgéniques liés à la TDP-43 dans le cadre de sa gamme plus large de modèles de SLA.
Comme l’apparition de la maladie est déterminée par le protocole expérimental plutôt que par le génotype et l’âge, les cohortes peuvent être induites de manière synchrone, et l’expression du transgène peut être supprimée après l’apparition de la maladie afin d’étudier le potentiel de récupération fonctionnelle — une manipulation expérimentale pour laquelle le modèle SOD1 n’a pas d’équivalent.
Tableau 1. Comparaison directe entre les modèles murins SOD1 G93A et rNLS8 TDP-43.
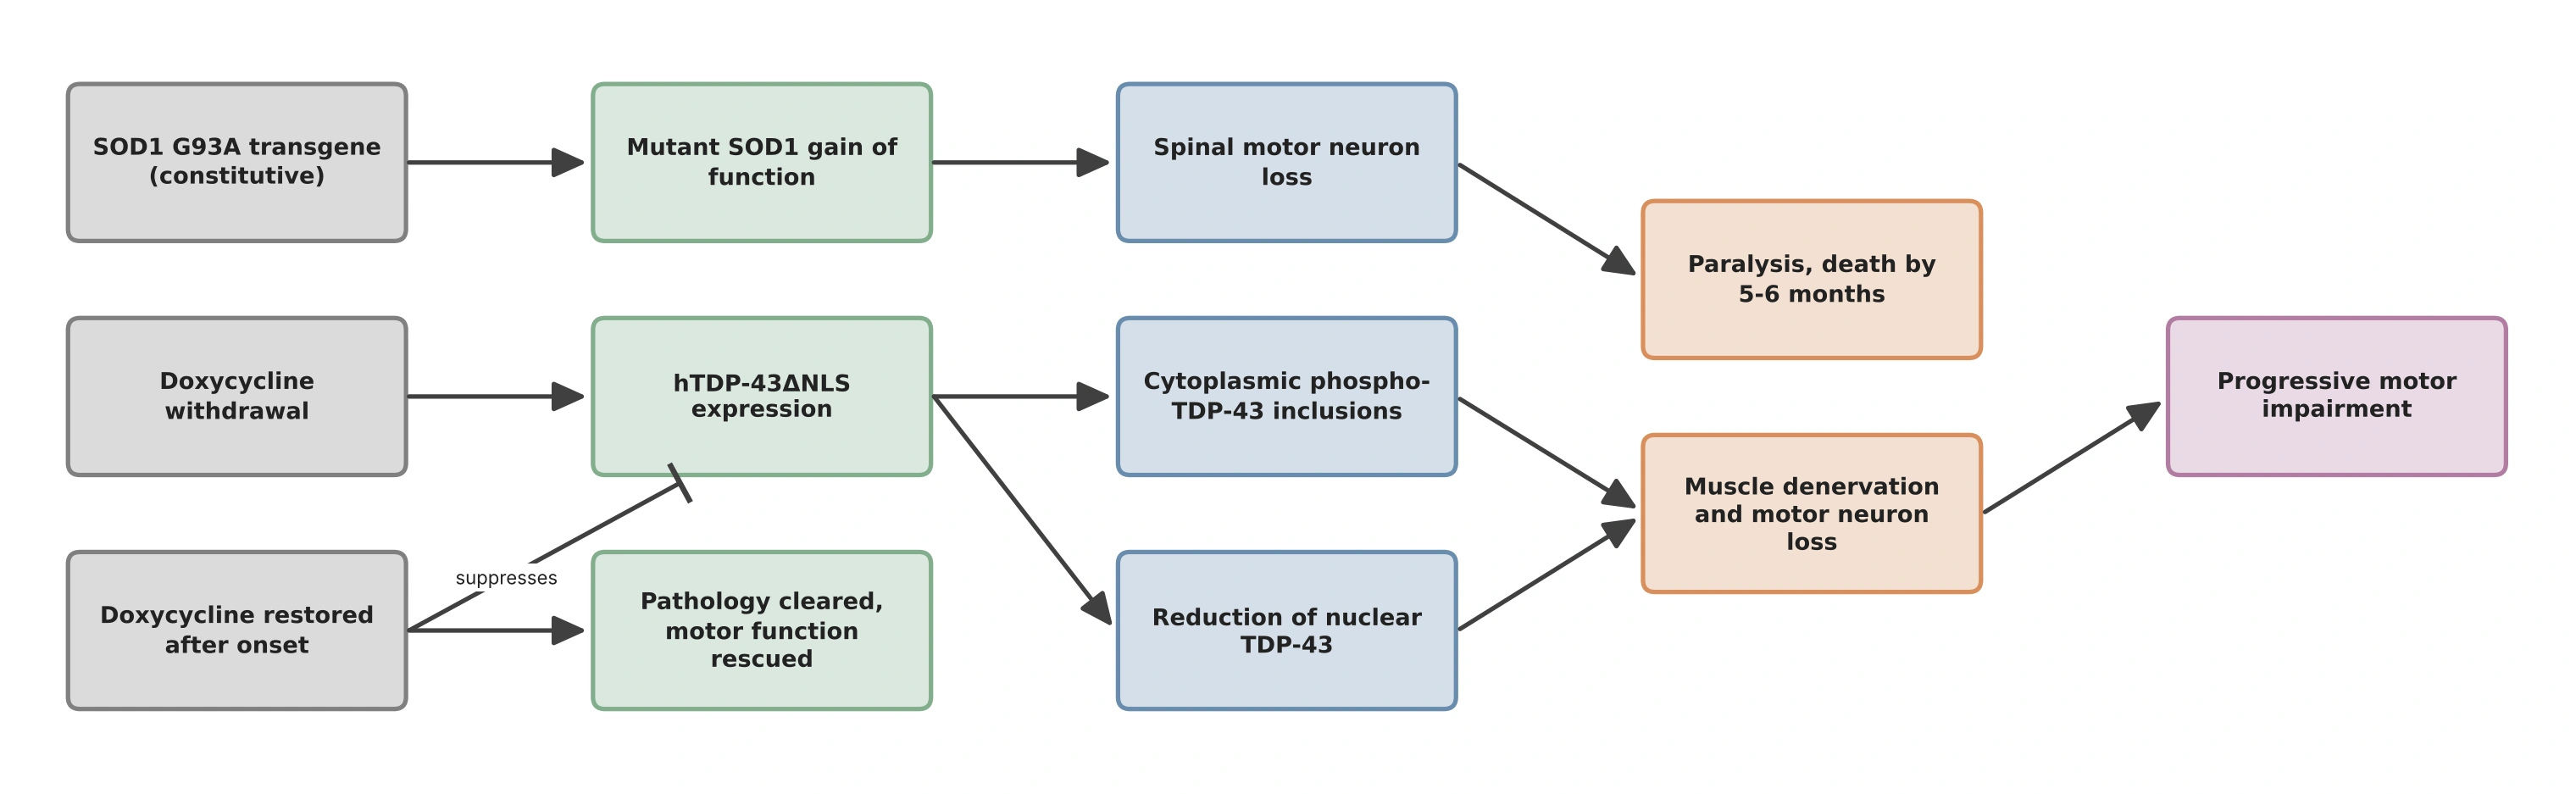
Illustration schématique des deux cascades pathologiques. Le transgène SOD1 G93A agit de manière constitutive, tandis que l'expression de hTDP-43ΔNLS chez les souris rNLS8 est déclenchée par l'arrêt de l'administration de doxycycline et peut être à nouveau inhibée après l'apparition de la maladie. Sources : Gurney et al., 1994; Walker et al., 2015.
Dans quelle mesure chaque modèle reflète-t-il la pathologie de la SLA humaine ?
Les souris rNLS8 reproduisent la pathologie protéique observée chez la grande majorité des patients atteints de SLA, tandis que les souris SOD1 G93A reproduisent un sous-type génétique rare présentant une pathologie distinctement différente. Il s’agit là de la différence la plus déterminante entre les deux modèles, car elle permet de déterminer si une cible identifiée chez la souris est également pertinente pour la plupart des patients.
On observe une TDP-43 pathologique dans la plupart des cas humains de SLA
La protéine TDP-43 s’accumule dans la plupart des cas de SLA, tandis que la pathologie liée à la protéine FUS n’apparaît que dans un petit sous-groupe. Associées à une pathologie similaire observée dans la démence frontotemporale, ces découvertes viennent étayer la classification neuropathologique de ces deux troubles, fondée sur la protéine agrégée sous-jacente plutôt que sur le seul syndrome clinique (Mackenzie, 2010).
La SLA liée au gène SOD1 est rare, et ses inclusions sont différentes
D’après une synthèse de 111 études génétiques, des mutations du gène SOD1 ont été identifiées dans 14,8 % des cas d’SLA familiale et 1,2 % des cas d’SLA sporadique au sein des populations européennes. Dans les populations asiatiques, le gène SOD1 était le gène de la SLA le plus fréquent, représentant 30,0 % des cas familiaux et 1,5 % des cas sporadiques (Zou, 2017). Appliqués aux données de prévalence basées sur la population, ces chiffres correspondent à une estimation de 2 876 cas liés au gène SOD1 parmi les 121 028 cas de SLA prévalents dans le monde en 2020, dont 53 % étaient sporadiques plutôt que familiaux (Brown, 2021).
La distinction pathologique est encore plus nette. Dans une étude post-mortem portant sur 111 cas de SLA — 59 cas sporadiques, 15 présentant des mutations du gène SOD1, 11 cas de SLA familiale SOD1-négative et 26 cas de démence —, tous les cas sporadiques, familiaux SOD1-négatifs et associés à une démence présentaient des inclusions neuronales et gliales positives à la fois pour l’ubiquitine et la TDP-43. En revanche, les cas présentant une mutation du gène SOD1 comportaient des inclusions positives à l’ubiquitine, mais aucune n’était immunoréactive à la TDP-43, et les formes pathologiques de TDP-43 détectées par des méthodes biochimiques dans les autres groupes étaient absentes. Les auteurs ont conclu que les cas présentant une mutation du gène SOD1 pourraient dégénérer selon un mécanisme différent et ne pas constituer l’équivalent familial de la SLA sporadique (Mackenzie, 2007). Le même schéma a été observé dans une famille présentant la mutation SOD1 p.Gly141X, dans laquelle les deux membres autopsiés présentaient des inclusions positives pour la SOD1 et négatives pour la TDP-43, y compris un probande présentant une maladie de type démence frontotemporale (Nakamura, 2015).
La distinction est nette, mais pas absolue
Dans une série plus restreinte de prélèvements de moelle épinière, les inclusions TDP-43-positives étaient absentes dans trois des quatre cas de SOD1, tandis qu’un cas présentait une seule inclusion TDP-43-positive. Les auteurs ont donc décrit les inclusions de TDP-43 dans la SLA familiale liée au gène SOD1 comme rares plutôt que systématiquement absentes (Maekawa, 2009). Ces données proviennent également de cohortes d’autopsies relativement restreintes, avec 15 cas de SOD1 dans la plus grande série et respectivement quatre et deux cas dans les autres.
Pour les programmes axés sur la relocalisation anormale de la TDP-43, l’épissage cryptique ou les conséquences en aval de la perte de TDP-43 nucléaire, la ressource de référence de Biospective sur le rôle de la TDP-43 dans la SLA et la DFT aborde ces aspects biologiques de manière plus détaillée.
En quoi l'apparition, l'évolution et la réversibilité diffèrent-elles entre les deux modèles ?
Chez les souris SOD1 G93A, l'apparition de la maladie suit le calendrier du transgène et ne peut être évitée. En revanche, l'apparition de la maladie chez les souris rNLS8 est contrôlée expérimentalement par l'arrêt de l'administration de doxycycline ou par un protocole spécifique d'administration de cette substance, et la progression de la maladie peut être interrompue en cours de route par la reprise de la doxycycline ou ralentie par un ajustement de sa dose. Pour la conception de l’étude, cette distinction est fondamentale : le modèle SOD1 G93A permet aux chercheurs d’observer la progression de la maladie, tandis que le modèle rNLS8 leur permet de la contrôler activement.
Apparition de la maladie contrôlée expérimentalement
Comme la doxycycline inhibe l’expression de hTDP-43ΔNLS, l’apparition de la maladie chez les souris rNLS8 est déclenchée par un changement de régime alimentaire plutôt que par l’âge des animaux. Cela permet d’induire la maladie de manière synchrone au sein d’une même cohorte, le début du traitement étant programmé à un moment précis par rapport à l’apparition de la maladie plutôt qu’en fonction de l’âge chronologique (Walker, 2015).
Vulnérabilité sélective et séquence de dégénérescence
La dégénérescence chez les souris rNLS8 est sélective, plutôt que généralisée. Après huit semaines d’expression du transgène, une perte de motoneurones est observable dans le noyau hypoglosse et la moelle épinière, tandis que les neurones oculomoteurs, trigéminaux et faciaux sont épargnés (dans le modèle « Off Dox »). Au sein de la moelle épinière, les motoneurones à fatigue rapide dégénèrent, tandis que les motoneurones lents survivent jusqu’au stade terminal. Le retrait axonal suit également un schéma sélectif, touchant d’abord les fibres musculaires à contraction rapide, tandis que les fibres à contraction lente restent innervées (Spiller, 2016). Cette sélectivité a des implications importantes pour la conception des critères d’évaluation : le choix du muscle prélevé peut déterminer si la dénervation est détectable ou non.
Inversion : ce qui se rétablit, et ce qui ne se rétablit pas
La réintroduction de la doxycycline après l’apparition de la maladie inverse plusieurs caractéristiques associées à la maladie chez les souris rNLS8 : la pathologie liée à la TDP-43 phosphorylée disparaît, la TDP-43 nucléaire revient à des niveaux normaux, la perte supplémentaire de motoneurones est empêchée, l’innervation musculaire augmente considérablement, les troubles moteurs s’améliorent et la durée de vie est prolongée (Walker, 2015).
Cependant, deux réserves importantes nuancent la manière dont cette récupération doit être interprétée. Premièrement, la récupération fonctionnelle ne reflète pas le remplacement de la population de motoneurones rapides et fatigables perdue. Au contraire, les motoneurones survivants développent de nouvelles ramifications pour réinnerver les plaques motrices laissées vacantes (Spiller, 2016). Deuxièmement, la récupération dépend de l’âge. Lorsque l’expression du transgène a été induite chez des souris âgées de 12 mois ou plus, la progression de la maladie s’est accélérée et la récupération fonctionnelle suite à la suppression du transgène s’est avérée incomplète par rapport à celle observée chez des souris plus jeunes. La réinnervation n’était souvent que partielle, et les plis des jonctions neuromusculaires restaient plus désorganisés (Spiller, 2016).
Une prépublication de 2025 ajoute une autre dimension : des anomalies comportementales extra-motrices apparaissent précocement chez les souris rNLS8 et persistent même après le rétablissement de la fonction motrice. Ces phénotypes persistants s’accompagnent de modifications de l’expression génique synaptique et de changements au niveau de l’épissage, ce qui suggère que la récupération motrice n’indique pas nécessairement une récupération neurologique plus large (Luan, 2025).
Élargir la fenêtre thérapeutique
Le protocole standard rNLS8 entraîne une progression relativement rapide de la maladie, avec environ quatre à six semaines de déclin mesurable. Cela crée une fenêtre thérapeutique étroite pour administrer des traitements candidats et détecter des effets significatifs. Pour pallier cette limitation, Biospective a développé une version « Low Dox » du modèle rNLS8, qui entraîne une évolution de la maladie moins agressive et plus lente. En prolongeant la période pendant laquelle la modification de l’évolution de la maladie peut être évaluée, cette approche offre une plus grande flexibilité pour l’intervention thérapeutique et l’évaluation.
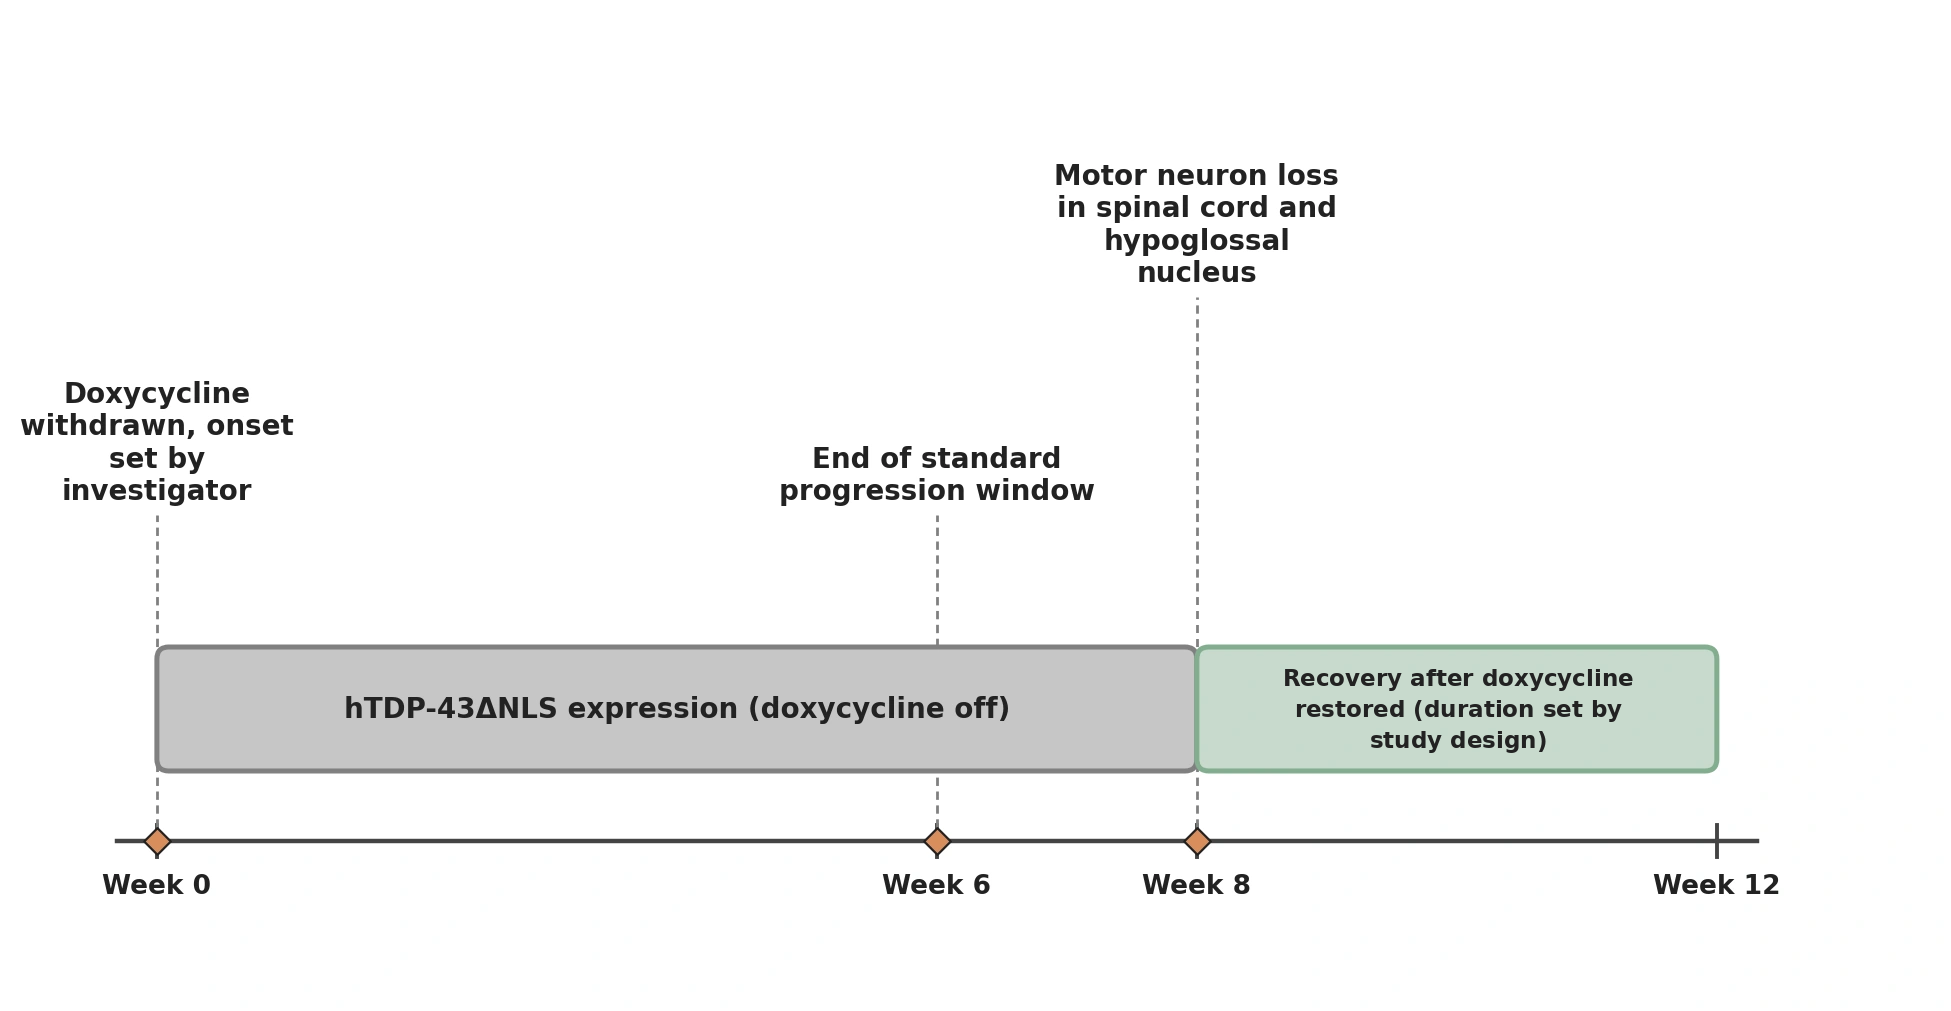
Illustration schématique d’un protocole d’induction de l’rNLS8 basé sur les publications : le début du processus est marqué par l’arrêt de l’administration de doxycycline à la semaine 0 ; la période de progression standard s’étend jusqu’à environ la semaine 6 ; et une perte de motoneurones dans la moelle épinière et le noyau hypoglosse est observée au bout de huit semaines d’expression. La phase de récupération commence lorsque la doxycycline est réintroduite ; sa durée dépend de la conception de l’étude plutôt que d’un critère d’évaluation mesuré. Sources : Walker et al., 2015; Spiller et al., 2016
Il convient de noter que Biospective a développé des protocoles alternatifs avec des calendriers d’étude différents, optimisés pour l’évaluation d’interventions thérapeutiques. N’hésitez pas à nous contacter pour discuter avec nos scientifiques des plans d’étude potentiels pour votre programme thérapeutique.
Pourquoi la mutation SOD1 G93A n'a-t-elle donné lieu qu'à des applications cliniques limitées ?
Le succès thérapeutique observé chez les souris SOD1 ne s'est pas traduit par des traitements efficaces contre la SLA chez l'homme. Les analyses publiées mettent en évidence deux défis distincts à l'origine de ce fossé de transposition : les effets thérapeutiques relativement modestes recherchés et la variabilité biologique importante qui complique leur détection.
Les effets thérapeutiques se sont révélés modestes
Une méta-analyse à effets aléatoires des essais thérapeutiques menés chez des souris SOD1 a été réalisée spécifiquement pour étudier cet échec de la recherche translationnelle. Parmi les études dans lesquelles le traitement a débuté avant l’apparition des symptômes, les différences moyennes pondérées entre les animaux traités et les animaux témoins étaient de 12 jours pour l’apparition de la maladie, de 13 jours pour la survie et de 5 jours pour l’intervalle de survie. Lorsque le traitement a débuté à l’apparition des symptômes, les différences correspondantes étaient de 15 jours pour la survie et de 8 jours pour l’intervalle de survie (Benatar, 2007). Ces effets relativement modestes sont difficiles à distinguer de manière fiable de la variabilité inhérente au modèle.
La variabilité biologique est importante et systématique
Nombre de copies du transgène. L’apparition de la maladie et la survie sont directement liées au nombre de copies du transgène SOD1 mutant. La lignée standard à nombre élevé de copies, portant environ 25 copies, atteint généralement le stade terminal vers 130 jours. En revanche, une lignée à quatre copies ne présente des signes de faiblesse qu’à partir de l’âge de neuf mois ; 74 % des souris sont touchées à 18 mois, tandis qu’environ 20 % des souris âgées de plus de 24 mois ne présentent toujours aucun symptôme moteur (Deitch, 2014). Par conséquent, la variation du nombre de copies ou la dérive au sein d’une colonie peut modifier considérablement le déroulement de la maladie et les critères d’évaluation mesurés.
Le fond génétique a plus d’importance que le sexe. Une méta-analyse de 97 études portant sur l’apparition de la maladie, sa durée et la durée de vie a révélé que les souris SOD1 G93A de souche C57BL/6 présentaient une apparition retardée, une durée de vie plus longue et une durée de la maladie prolongée par rapport aux souris B6SJL appariées selon le sexe. Des effets liés au sexe ont également été observés : les souris B6SJL femelles présentaient généralement une apparition retardée de la maladie et une survie plus longue que les mâles. Cependant, chez les souris C57BL/6, les femelles présentaient une apparition retardée sans bénéficier d’un avantage correspondant en termes de survie. Les méthodes utilisées pour évaluer l’apparition de la maladie — notamment l’observation des tremblements et les performances au test du rotarod — ont également donné lieu à des estimations sensiblement différentes. Dans l’ensemble, le fond génétique a eu une plus grande influence sur l’évolution de la maladie que le sexe, malgré une expression équivalente de la SOD1 mutante (Pfohl, 2015).
Les effets du fond génétique vont au-delà de l’expression du transgène. Les différences entre les fonds génétiques ne peuvent s’expliquer simplement par la variation du nombre de copies du transgène ou de l’abondance de la protéine mutante. Même lorsque ces facteurs étaient appariés, les souris C57 et 129Sv porteuses du transgène SOD1 G93A présentaient des taux de progression de la maladie différents. À l’apparition des symptômes, 1 276 gènes présentaient une expression différentielle chez les souris 129Sv-SOD1G93A à progression rapide, contre 346 chez les souris C57-SOD1G93A à progression lente (Q ≤ 0,01). La lignée à progression rapide présentait une régulation à la baisse des voies mitochondriales, de dégradation des protéines et de transport axonal, tandis que la lignée à progression plus lente présentait une activation du complément ainsi que des gènes neuroprotecteurs (Nardo, 2013).
Comment la communauté scientifique a réagi
Ces sources de variabilité sont bien reconnues, et les efforts visant à y remédier se sont largement concentrés sur l’amélioration de la cohérence expérimentale. Il a été constaté que les souris hybrides SJLxC57 SOD1 G93A présentaient des facteurs de confusion liés au fond génétique susceptibles d’augmenter le bruit expérimental et de produire des effets de traitement faussement positifs s’ils n’étaient pas correctement contrôlés. Les études évoquées ont nécessité des groupes d’environ 24 animaux. Une lignée consanguine C57BL/6 SOD1 G93A présentant une évolution de la maladie plus homogène a ensuite été développée, en partie pour réduire cette charge expérimentale (Mead, 2011).
Le contrôle de la variabilité ne résout pas le problème de la pertinence par rapport à la maladie
Rien de tout cela ne fait du SOD1 G93A un mauvais modèle. Cela souligne plutôt à quel point la variabilité expérimentale doit être maîtrisée pour obtenir des résultats fiables et reproductibles. Mais il existe une autre limite que la rigueur méthodologique ne peut surmonter : la SLA associée au gène SOD1 ne représente qu’une petite minorité des cas de SLA chez l’homme. La réduction de la variabilité peut renforcer la certitude qu’un effet thérapeutique observé est réel. Elle ne permet toutefois pas d’établir que le mécanisme pathologique sous-jacent est représentatif de l’ensemble de la population atteinte de SLA. Il s’agit là d’une question de validité conceptuelle, qui reste distincte du défi que représente la reproductibilité expérimentale.
En quoi le choix du modèle influe-t-il sur la durée de l'étude et la taille de la cohorte ?
Définir le périmètre de votre étude de modélisation ALS
Précisez-nous votre mécanisme d'action, votre modalité thérapeutique et votre calendrier, et notre équipe concevra une étude sur le rNLS8 en fonction de ces éléments : schéma d'induction, fenêtre posologique et critères d'évaluation pertinents, en s'appuyant sur notre vaste expérience dans la conduite d'études d'efficacité sur ce modèle.
Définir le périmètre de votre étude de modélisation ALS
Précisez-nous votre mécanisme d'action, votre modalité thérapeutique et votre calendrier, et notre équipe concevra une étude sur le rNLS8 en fonction de ces éléments : schéma d'induction, fenêtre posologique et critères d'évaluation pertinents, en s'appuyant sur notre vaste expérience dans la conduite d'études d'efficacité sur ce modèle.
Le choix du modèle détermine la durée d'une expérience, le nombre d'animaux nécessaires pour détecter les effets du traitement par rapport à la variabilité inhérente au modèle, ainsi que la possibilité ou non d'intégrer un groupe témoin. Les modèles SOD1 G93A et rNLS8 imposent des contraintes expérimentales différentes, et aucun des deux n'est systématiquement moins coûteux.
Durée de l’étude : fixe ou ajustable
Une étude thérapeutique classique chez les souris SOD1 G93A s’étend généralement sur trois à quatre mois (Mead, 2011). Chez les souris rNLS8 standard (Off Dox), la progression de la maladie s’étend sur environ six semaines après l’arrêt de la doxycycline. Bien que plus courte, cette progression relativement rapide peut constituer une contrainte pour les études thérapeutiques nécessitant un traitement chronique.
La version « Low Dox » du modèle rNLS8 remédie à cette limitation en ralentissant la progression de la maladie grâce à une modulation de la doxycycline par voie alimentaire. Biospective mène généralement des études d’environ 8 semaines selon ce protocole, offrant ainsi une fenêtre d’intervention plus longue que le modèle Off Dox standard. Ainsi, le modèle rNLS8 offre une flexibilité dans la définition du calendrier expérimental plutôt que d’imposer une évolution fixe de la maladie.
Taille de la cohorte
Pour les souris SOD1 G93A, les lignes directrices précliniques publiées soulignent explicitement la nécessité de contrôler la variabilité expérimentale. Chez les souris hybrides SJLxC57, les facteurs de confusion liés au fond génétique peuvent accroître le bruit biologique et produire des effets de traitement faussement positifs s’ils ne sont pas correctement contrôlés. Les directives recommandent donc des groupes de traitement et de contrôle issus de la même portée, des groupes de 24 animaux, une analyse du nombre de copies du transgène pour chaque souris incluse dans une étude thérapeutique, ainsi que la censure des données provenant de souris de la même portée décédées de causes non liées à la SLA (Mead, 2011).
À titre de comparaison, Biospective réalise généralement des études utilisant 12 à 15 souris par groupe dans ses modèles rNLS8 « Off Dox » et « Low Dox ».
Le bras expérimental « rNLS8 » permet notamment
L’un des avantages distinctifs du modèle rNLS8 réside dans sa capacité à inclure un groupe de réversion. L’expression du transgène pouvant être supprimée après l’apparition de la maladie par la réintroduction de la doxycycline, les chercheurs peuvent évaluer l’ampleur de la récupération réalisable au sein d’une cohorte donnée. Cela fournit un repère important pour l’évaluation des traitements candidats : plutôt que de mesurer les effets du traitement par rapport à la seule progression de la maladie non traitée, l’efficacité d’un traitement candidat peut également être considérée par rapport au rétablissement possible lorsque le transgène à l’origine de la maladie est désactivé (Walker, 2015). Les modèles constitutifs tels que SOD1 G93A n’offrent pas ce contrôle expérimental.
Quels paramètres Biospective permet-il de mesurer chez les souris rNLS8 TDP-43 ?
Biospective propose des études d’efficacité rNLS8 de bout en bout, couvrant l’induction de la maladie et l’administration thérapeutique à travers des biomarqueurs liquides, l’électrophysiologie, les tests comportementaux, l’imagerie et l’histopathologie quantitative. Les paramètres d’évaluation sont sélectionnés de manière à refléter les modifications pathologiques et fonctionnelles spécifiques observées dans le modèle.
Biomarqueurs sériques
La chaîne légère des neurofilaments (NfL) sérique figure parmi les biomarqueurs les plus sensibles au traitement rapportés chez les souris rNLS8. Dans une étude d’immunisation active, le traitement par un peptide C-terminal de la TDP-43 contenant les résidus phospho-Ser409/410 a considérablement réduit le taux sérique de NfL, bien qu’aucun changement détectable n’ait été observé au niveau du poids corporel, de la pathologie liée à la TDP-43 phosphorylée ou de la gliose (Riemenschneider, 2023).
Biospective propose la mesure de la chaîne légère des neurofilaments dans le plasma, le sérum et le LCR, permettant ainsi un suivi longitudinal des biomarqueurs parallèlement à un panel plus large de biomarqueurs liquides et cellulaires.
Intégrité de la jonction neuromusculaire (JNM)
Étant donné que la dénervation chez les souris rNLS8 affecte préférentiellement les fibres musculaires à contraction rapide, tandis que les fibres à contraction lente restent relativement innervées, le choix des muscles est essentiel pour détecter les modifications associées à la maladie (Spiller, 2016).
Biospective réalise une coloration de la jonction neuromusculaire ainsi qu’une analyse quantitative afin d’évaluer l’état d’innervation dans l’ensemble des muscles. Vous trouverez plus de détails dans nos ressources consacrées à la morphologie de la jonction neuromusculaire dans les modèles de SLA et à la microscopie de la jonction neuromusculaire dans la SLA.
Pathologie de la TDP-43 et neuroinflammation
Biospective évalue quantitativement l’expression de la protéine TDP-43 humaine, les agrégats de TDP-43 phosphorylée (p409/410) et les modifications neuroinflammatoires, notamment les astrocytes réactifs et les microglies activées. Ces paramètres sont évalués à l’aide de la microscopie à immunofluorescence multiplexe et de l’analyse quantitative d’images, fournissant ainsi des mesures complémentaires de la pathologie et de la réponse neuroinflammatoire.
Fonction motrice et comportement
Les évaluations fonctionnelles comprennent la force de préhension et une notation motrice longitudinale, intégrant des mesures telles que la préhension des membres postérieurs, l’agilité sur grille et les tremblements. Ces critères d’évaluation permettent de caractériser la progression de la maladie et d’évaluer les effets thérapeutiques. Biospective les examine dans le cadre de tests de la fonction motrice et de tests comportementaux plus larges.
Électrophysiologie et imagerie in vivo
Biospective réalise des évaluations électrophysiologiques, notamment le CMAP et le MUNE, et l’imagerie par résonance magnétique (IRM) peut être utilisée pour évaluer l’atrophie cérébrale. Ensemble, ces approches fournissent des mesures longitudinales non terminales qui complètent les évaluations comportementales et l’histopathologie des critères d’évaluation.
Conduite intégrée des études
Biospective gère en interne le déroulement expérimental par le biais de ses services dédiés aux animaux, depuis l’induction de la maladie et le titrage de la doxycycline jusqu’à l’administration des doses thérapeutiques, aux évaluations longitudinales et au prélèvement de liquides et de tissus. L’intégration de ces capacités au sein d’une même étude permet de collecter et d’évaluer plusieurs critères d’évaluation complémentaires dans le cadre d’un protocole expérimental coordonné.
SOD1 G93A ou rNLS8 : quel modèle de SLA convient le mieux à votre programme thérapeutique ?
Pour la plupart des programmes thérapeutiques consacrés à la SLA et ciblant des mécanismes autres que la SOD1 mutante, les souris rNLS8 TDP-43 constituent le modèle le plus pertinent pour les études thérapeutiques précliniques. Les souris SOD1 G93A restent toutefois le choix approprié pour les programmes ciblant spécifiquement les maladies associées à la SOD1. Le facteur déterminant doit être le mécanisme d’action étudié et sa pertinence par rapport à la population de patients visée. La protéinopathie TDP-43 est une caractéristique pathologique déterminante dans la grande majorité des cas de SLA (Mackenzie, 2010).
Optez pour le modèle SOD1 G93A lorsque…
Votre candidat thérapeutique cible directement la SOD1 mutante, notamment les oligonucléotides antisens (ASO), le silençage génique, l’agrégation de la SOD1 ou le traitement de la protéine SOD1. Dans ce contexte, le modèle exprime la cible humaine pertinente associée à la maladie, et la population de patients définie génétiquement fournit une justification translationnelle claire. Le modèle SOD1 G93A bénéficie également de plus de trois décennies de recherche, notamment de protocoles expérimentaux établis, de critères de début de la maladie et de données de contrôle historiques (Gurney, 1994; Mead, 2011). Il peut également constituer le modèle privilégié lorsque les autorités réglementaires ou les experts scientifiques attendent une continuité avec les études thérapeutiques historiques ciblant la SOD1. Ces avantages doivent être mis en balance avec la variabilité biologique du modèle. Les protocoles d’étude doivent tenir compte du contexte génétique et du nombre de copies du transgène, avec un appariement approprié des portées, des tailles de groupes adaptées, une analyse du nombre de copies et des critères prédéfinis pour exclure les animaux perdus pour des événements non liés à la SLA (Mead, 2011).
Choisissez les souris rNLS8 TDP-43 lorsque…
Votre candidat thérapeutique cible la relocalisation anormale de la TDP-43, l’agrégation cytoplasmique de la TDP-43, la perte de fonction de la TDP-43 nucléaire, l’épissage cryptique ou la pathologie neuroinflammatoire et neuroaxonale en aval. La mutation SOD1 G93A ne permet pas d’aborder directement ces mécanismes : la SLA associée à la SOD1 se distingue nettement de la protéinopathie liée à la TDP-43 observée dans la plupart des autres formes de SLA, les inclusions de TDP-43 étant généralement absentes dans la maladie liée à la mutation SOD1 (Mackenzie, 2007; Mackenzie, 2010). Le rNLS8 s’avère également particulièrement utile lorsque la flexibilité expérimentale est importante. L’induction de la maladie contrôlée par la doxycycline permet aux chercheurs de synchroniser l’apparition de la maladie, d’ajuster la fenêtre de progression et d’introduire une branche de réversion afin d’évaluer l’ampleur de la récupération possible après suppression du transgène responsable de la maladie (Walker, 2015).
Pourquoi le rNLS8 est le meilleur choix par défaut pour la plupart des programmes sur la SLA
La SLA associée à la SOD1 représente une proportion relativement faible de l’ensemble de la population atteinte de la maladie, représentant environ 1,2 % des cas sporadiques et 14,8 % des cas familiaux de SLA dans les populations européennes (Zou, 2017). Pour les programmes thérapeutiques qui ne ciblent pas spécifiquement la SOD1 mutante, le modèle SOD1 G93A présente donc une limitation importante en termes de pertinence par rapport au mécanisme pathologique. Cette limitation est aggravée par les effets thérapeutiques modestes rapportés dans les analyses groupées des études sur des souris SOD1, avec des améliorations modestes au niveau de l’apparition de la maladie ou de la survie, ainsi qu’une variabilité importante liée au nombre de copies du transgène et au contexte génétique (Benatar, 2007; Deitch, 2014; Pfohl, 2015). Pour les programmes ciblant la pathologie de la TDP-43, le rNLS8 offre un mécanisme pathologique plus directement pertinent, une apparition contrôlée expérimentalement, une progression ajustable et la possibilité d’évaluer la réversibilité.
Nous contacter
Notre équipe se fera un plaisir de répondre à toutes vos questions concernant le choix entre les modèles murins SOD1 G93A et rNLS8 TDP-43 pour les études d'efficacité sur la SLA, ou de vous fournir des informations spécifiques sur les modèles de maladies neurodégénératives que nous utilisons pour les études d'efficacité thérapeutique.
Notre équipe se fera un plaisir de répondre à toutes vos questions concernant le choix entre les modèles murins SOD1 G93A et rNLS8 TDP-43 pour les études d'efficacité sur la SLA, ou de vous fournir des informations spécifiques sur les modèles de maladies neurodégénératives que nous utilisons pour les études d'efficacité thérapeutique.
En savoir plus sur nos modèles ALS
Biospective dispose d'une gamme de modèles murins pour la SLA et les protéinopathies associées à la protéine TDP-43, avec des paramètres d'évaluation et des protocoles d'étude validés pour chacun d'entre eux.
Modèles ALS
Notre gamme complète de modèles murins de sclérose latérale amyotrophique, avec les paramètres d'évaluation et les protocoles d'étude disponibles pour chacun d'entre eux.
Modèles transgéniques TDP-43
Modèles transgéniques de la protéinopathie TDP-43, notamment la lignée rNLS8 hTDP-43ΔNLS inductible évoquée sur cette page.
Souris TDP-43ΔNLS pour le développement de médicaments
Comment le modèle inductible TDP-43ΔNLS est utilisé dans les programmes d'évaluation de l'efficacité thérapeutique, de l'induction à la sélection des critères d'évaluation.
Modèles ALS
Notre gamme complète de modèles murins de sclérose latérale amyotrophique, avec les paramètres d'évaluation et les protocoles d'étude disponibles pour chacun d'entre eux.
Modèles transgéniques TDP-43
Modèles transgéniques de la protéinopathie TDP-43, notamment la lignée rNLS8 hTDP-43ΔNLS inductible évoquée sur cette page.
Souris TDP-43ΔNLS pour le développement de médicaments
Comment le modèle inductible TDP-43ΔNLS est utilisé dans les programmes d'évaluation de l'efficacité thérapeutique, de l'induction à la sélection des critères d'évaluation.
Foire aux questions
FAQs
Références
Mots-clés
Contenu associé
Contenu associé