


パーキンソン病研究プログラムにおける6-OHDAマウスとAAV-α-シヌクレインマウスの比較
ご自身の研究プログラムに適したパーキンソン病マウスモデルはどれか:病理学的特徴、経過、変動性、および評価指標の比較。

概要
要約すると、6-OHDAマウスとAAV-α-シヌクレインマウスは、それぞれ異なる研究課題に取り組んでいる。 6-OHDAによる病変は、パーキンソン病で見られる特徴的なα-シヌクレインの凝集を再現することなく、黒質線条体路を脱神経させる急速な酸化損傷を引き起こすため、症状およびドーパミン作動性神経細胞の回復に関する研究にとって有用なプラットフォームとなっている。 対照的に、AAVを介したヒトA53T α-シヌクレインの発現は、黒質線条体経路の変性に加え、黒質ニューロンにおいてリン酸化α-シヌクレインの病態を誘発する。 ラットを用いた直接比較では、AAV-A53Tは6-OHDAと同等の運動障害を引き起こしたが、細胞喪失は少なく、毒素による病変では観察されない持続的な軸索病変が見られた(Decressac, 2012)。 α-シヌクレインを標的とする治療法の薬力学的評価は、α-シヌクレイン関連の指標に依存しているため(Naki, 2026)、6-OHDA モデルは、これらの治療法による標的への結合を評価するにはあまり適していない。 対照的に、Biospective社のAAV-A53Tマウスモデルでは、5週目までに運動機能障害が現れ、それに伴ってpSer129病理、ドーパミン作動性神経細胞の喪失、グリア細胞の活性化、7T MRIで検出される萎縮、および脳脊髄液中のニューロフィラメント軽鎖の変化が認められる。 これらの特徴が相まって、このモデルはα-シヌクレインを標的とする疾患修飾療法を評価するための有力な選択肢となっている。
動画1:ヒトSer129の 病態、2つの誘導経路、α-シヌクレインを標的とした治療法を評価するために用いられる解析対象物質、臨床記録、および6-OHDAおよびAAV-A53T-α-シヌクレインマウスモデルで得られる評価指標。
6-OHDAマウスとAAV-α-シヌクレインマウスとは何ですか?
6-OHDAの概要
パーキンソン病の6-OHDAモデルの概要。
毒素の行き先
6-OHDAは血液脳関門(BBB)を通過できないため、定位手術により内側前脳束(MFB)、黒質(SN)、または線条体に注入される。注入部位によって、ドーパミン神経細胞の喪失の速度や程度が決まる。
どのような成果が得られるか
投与量に応じた黒質ドーパミン作動性ニューロンおよび線条体終末の喪失、運動機能障害、いくつかの非運動症状、ならびに数週間にわたって持続するアストロサイトおよびミクログリアの活性化。
生成されないもの
このモデルでは、パーキンソン病に特徴的なα-シヌクレインの凝集やレビー小体様病変を再現できない。したがって、病的なα-シヌクレインを標的とする治療法の評価にはあまり適していない。
毒素の行き先
6-OHDAは血液脳関門(BBB)を通過できないため、定位手術により内側前脳束(MFB)、黒質(SN)、または線条体に注入される。注入部位によって、ドーパミン神経細胞の喪失の速度や程度が決まる。
どのような成果が得られるか
投与量に応じた黒質ドーパミン作動性ニューロンおよび線条体終末の喪失、運動機能障害、いくつかの非運動症状、ならびに数週間にわたって持続するアストロサイトおよびミクログリアの活性化。
生成されないもの
このモデルでは、パーキンソン病に特徴的なα-シヌクレインの凝集やレビー小体様病変を再現できない。したがって、病的なα-シヌクレインを標的とする治療法の評価にはあまり適していない。
6-OHDAマウスは、黒質線条体系のドーパミン神経細胞を破壊するために、カテコールアミン性神経毒である6-ヒドロキシドパミンを定位注射された動物である。一方、AAV-α-シヌクレインマウスは、これらのニューロンにおいてヒトα-シヌクレインの過剰発現を誘導するアデノ随伴ウイルス (AAV)ベクターを投与され、これらのニューロンにおいてヒトα-シヌクレインの過剰発現を誘導し、その結果、ニューロンの変性を引き起こす可能性がある。 言い換えれば、6-OHDAは酸化ストレスを介してドーパミン作動性神経変性を引き起こすのに対し、AAVを介したα-シヌクレインの過剰発現は、α-シヌクレインに関連する病態を誘発する。この違いによって、各モデルがどの治療上の課題に答えられるかが決まる。
6-OHDAによる病変
6-OHDAは血液脳関門(BBB)を通過しないため、定位手術によって内側前脳束(MFB)、黒質(SN)、または線条体に投与される。 カテコールアミン作動性終末内に取り込まれると、細胞質内のドーパミンの蓄積と自動酸化を促進し、その結果、酸化ストレスと神経細胞死を引き起こす。 最近の総説では、このカスケードにおける共通の結節として、小胞性モノアミン輸送体2(VMAT2)が提案されているが、これは実験的に検証されたメカニズムというよりは、統一的な仮説として提示されている(Zhu, 2025)。
病変の程度は投与量によって段階的に現れる: マウスにおいて、0.5、1、および2 µgの用量を片側前脳束に注入すると、用量依存的に黒質のTH⁺細胞の喪失および線条体線維の喪失が生じ、7週目にはアストロサイトおよびミクログリアの持続的な活性化が認められた(Cui, 2024)。 雄マウスにおける線条体内病変は、4週間のプロトコル内で運動障害、認知機能障害、および胃腸機能障害を再現することができる。 しかし、嗅覚機能障害や不安様行動は再現されず、カテコールアミンの異常は黒質線条体経路を超えて、中脳皮質系および中脳辺縁系にまで及んだ(Braun, 2025)。
この病変では、レビー小体様病変は誘導されない。 6-OHDAに関する文献のPRISMA系統的レビューによると、このモデルは、黒質線条体ドーパミン作動性神経路を効果的に変性させるにもかかわらず、パーキンソン病のα-シヌクレインおよびレビー小体の病理を再現しないことが判明した(Prates-Rodrigues, 2025)。 メカニズムに関する文献では、α-シヌクレインは、病変の産物ではなく、同じ酸化ノードの上流にある仮説上の調節因子としてのみ扱われている(Zhu, 2025)。
AAV-α-シヌクレインモデル
AAV を用いてヒト α-シヌクレインを黒質に導入すると、軸索終末の変化から始まる進行性の病変が生じる。 ラットでは、AAV-A53T 注入の 4 週目および 6 週目に運動障害が現れ、これは黒質細胞数ではなく、線条体の終末の喪失と相関していた。このことは、行動表現型が標的領域の脱神経と密接に関連していることを示唆している(Musacchio, 2022)。
重症度は力価に依存し、明確な閾値がある。中程度の AAV1/2-A53T 力価では、3 週目に足の使用の非対称性と線条体の TH 減少が生じ、6 週目までに黒質細胞の喪失とドーパミンの枯渇へと進行した。 より希釈された製剤では、3週目から6週目の間に代償的な回復が見られたが、過剰な力価では、GFP対照群の動物でも観察された非特異的な毒性が引き起こされた(Koprich, 2011)。α-シヌクレインの過剰蓄積は、細胞喪失のみから予想される範囲を超えて、ドーパミン放出を損なう可能性もある。 野生型のヒトα-シヌクレインを過剰発現するラットでは、線条体におけるドーパミン放出の減少は、ドーパミン作動性ニューロン、軸索線維、および総ドーパミンの喪失を上回り、小胞密度の低下およびシナプス接触数の減少を伴っていた(Gaugler, 2012)。
Biospective社による実施方法は、生後12週齢のC57BL/6マウスの黒質へのAAV-human-A53T-α-シヌクレインの片側注入であり、対側半球および対照群を比較対象とする。 この処置は、当社の定位手術サービスを通じて実施される。5週目までに、シリンダーテスト、ロータロッド、および尾部懸垂スイングテストにおいて、顕著な運動障害が認められる。 これらの変化に伴い、黒質におけるTH⁺ニューロンの減少、同側線条体におけるTH⁺終末のほぼ完全な喪失、線条体ドーパミンの減少、pSer129 α-シヌクレイン病理、ミクログリアおよびアストロサイトの活性化、7T MRIによる萎縮、ならびに脳脊髄液(CSF)中のニューロフィラメント軽鎖(NfL)濃度の上昇が認められます。 これらの所見を総合することで、本モデルにおける治療効果を評価するための、行動学的、組織学的、画像診断的、および体液バイオマーカーに関する幅広い評価指標が得られる。詳細については、当社のAAVシヌクレインモデルページおよびその他のパーキンソン病齧歯類モデルページでご覧いただける。
モデルを機構に合わせて調整してください
症状を呈する化合物には、黒質線条体系の機能が必要です。α-シヌクレインを標的とする化合物には、関連するα-シヌクレインの病理と薬力学的評価指標を備えたモデルが必要です。AAV-A53Tモデルで何が測定されるかを確認し、ご自身のプログラムがどの経路を進んでいるかを判断してください。
モデルを機構に合わせて調整してください
症状を呈する化合物には、黒質線条体系の機能が必要です。α-シヌクレインを標的とする化合物には、関連するα-シヌクレインの病理と薬力学的評価指標を備えたモデルが必要です。AAV-A53Tモデルで何が測定されるかを確認し、ご自身のプログラムがどの経路を進んでいるかを判断してください。
表1. 前臨床薬物開発において重要な特徴について、6-OHDAマウスとAAV-A53T-α-シヌクレインマウスを比較した。
注:「再現されなかった」は、6-OHDAモデルがα-シヌクレインおよびレビー小体の病理を再現しないという系統的レビューの結果に基づくものであり、「データなし」は、正式な陰性結果によるものではなく、この結果に由来するものである。 各モデル間の細胞喪失および軸索病理を比較した行は、ラットを用いた同一研究室による比較に基づくものであり、測定値としてではなく、原則としてマウスに適用されている。Biospective社のマウスモデルに関する行は、同社独自のデータである。
出典:Braun, 2025;Cui, 2024;Decressac, 2012;Gaugler, 2012;Koprich, 2011;Musacchio, 2022;Prates-Rodrigues, 2025;Zhu, 2025。
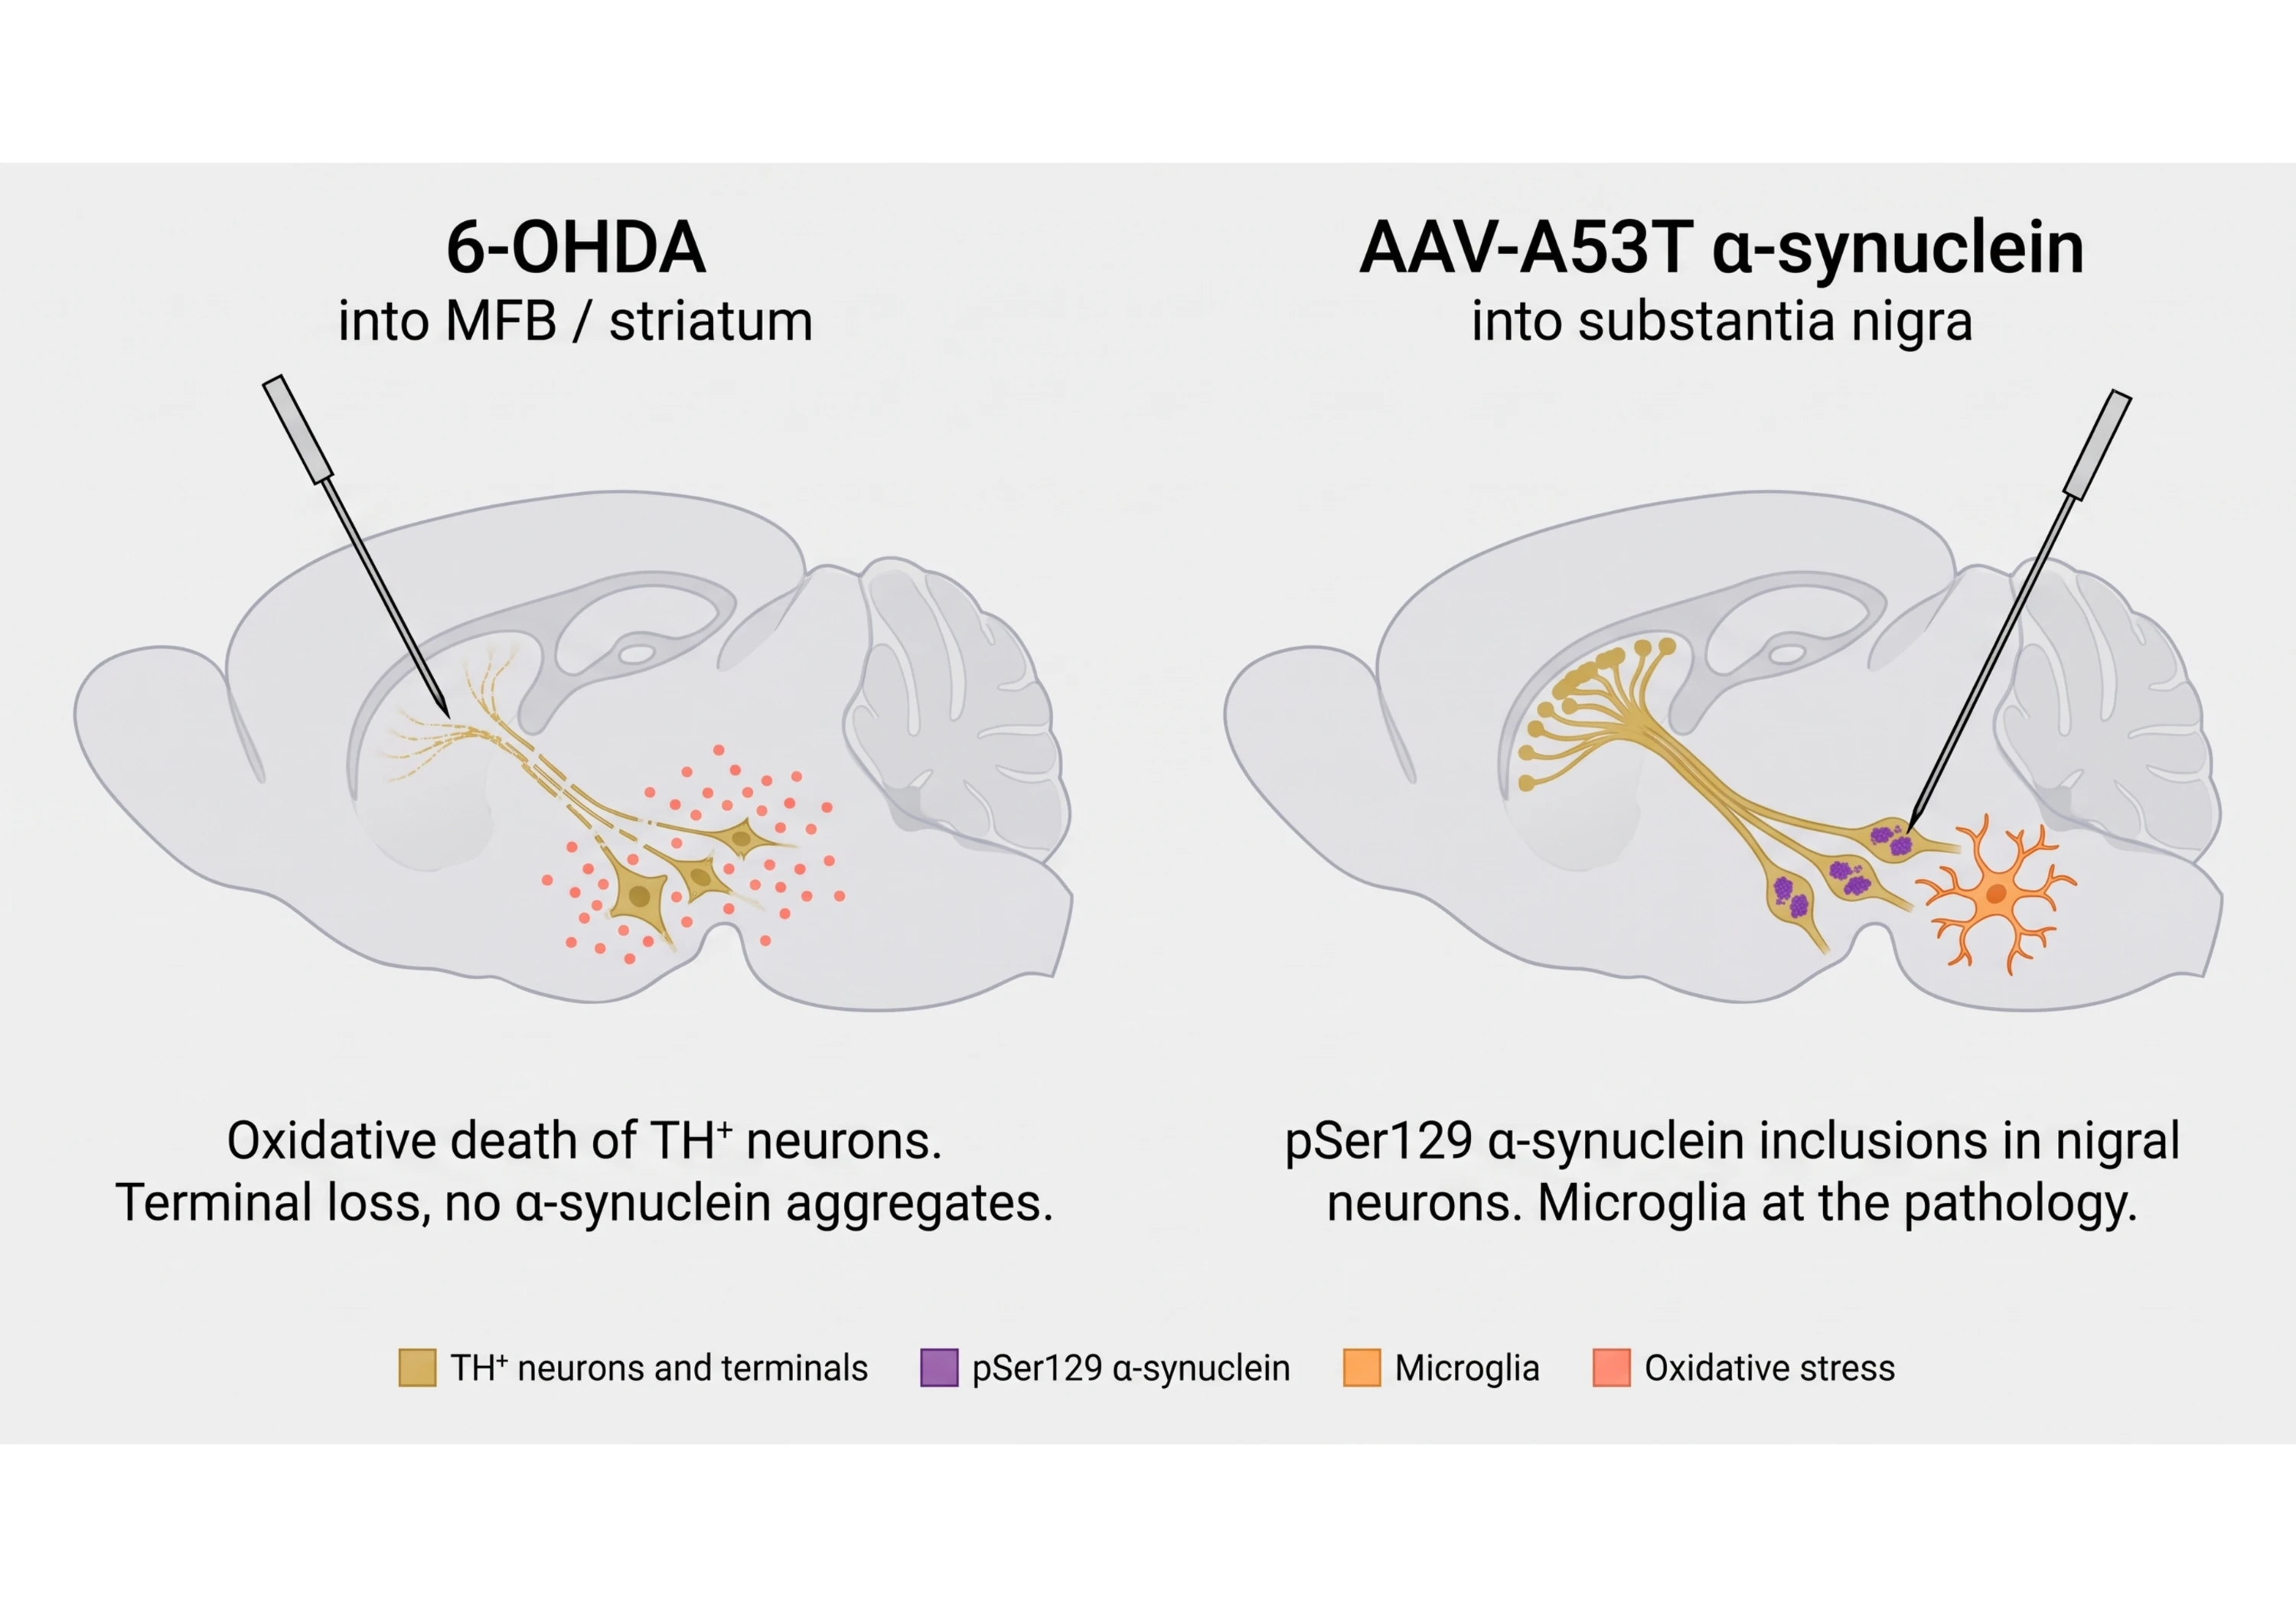
誘導経路。どちらの 誘導経路も 、黒質線条体ドーパミン神経細胞の喪失と運動機能障害という結果に至るが、pSer129 α-シヌクレインの病理を経由するのはAAV-A53T経路のみである。
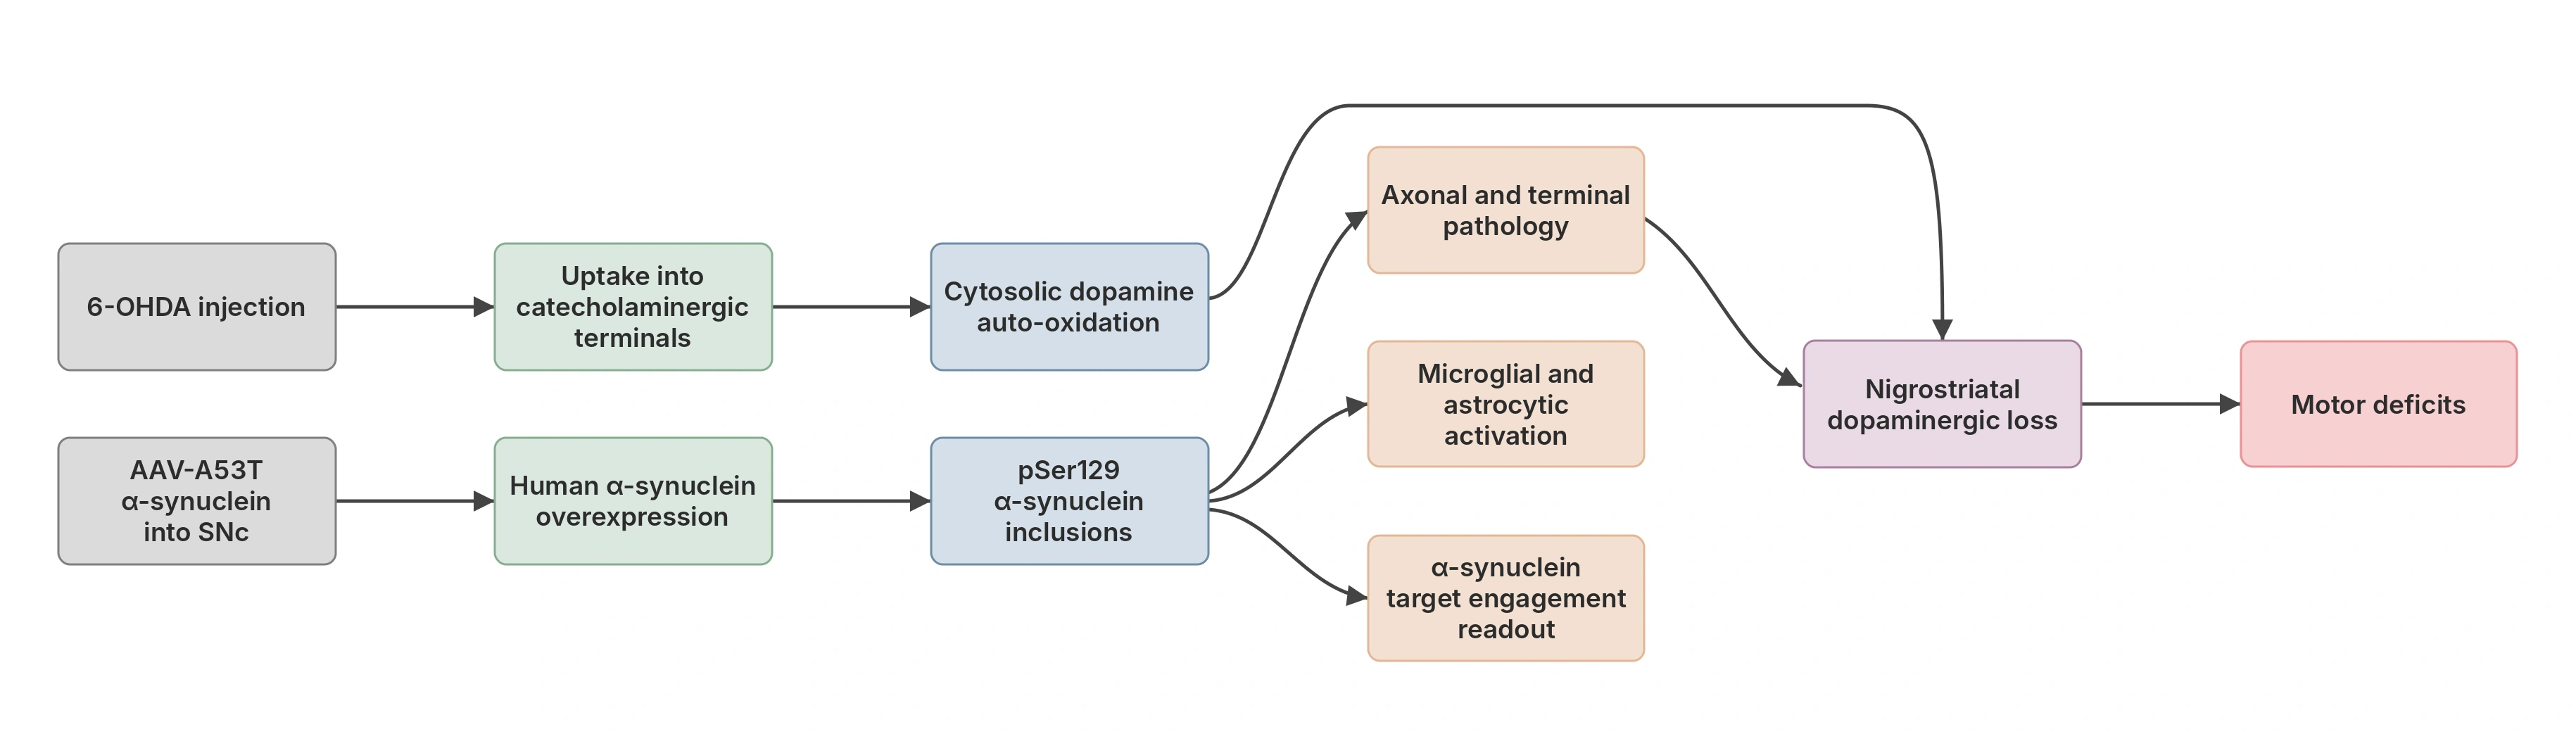
2つの誘導経路の模式図。いずれも黒質線条体ドーパミン神経系の喪失と運動機能障害という結果に至るが、AAV-A53T α-シヌクレイン経路のみが、グリア細胞の活性化に関連し、標的結合の指標となるpSer129封入体を形成する。
2つのモデルは、α-シヌクレインの病理学的特徴および標的への結合において、どのように異なるのでしょうか?
この点において、2つのモデルには大きな違いがあります。AAV-α-シヌクレインマウスはヒトのα-シヌクレインを発現し、それに関連する病理学的タンパク質種が生じることがありますが、6-OHDAマウスでは、パーキンソン病(PD)に特徴的なα-シヌクレインの病理が再現されません。 症状再現を目的とした研究プログラムにおいては、この違いはそれほど重要ではないかもしれない。しかし、疾患修飾を目的とした研究プログラムにおいては、この違いが、そのモデルが標的への結合を評価するための適切な指標を提供できるかどうかを決定づけることになる。
ヒトの病理とは
セリン129でのリン酸化は、ヒトのレビー小体病におけるα-シヌクレインの主要な病理学的修飾である。 シヌクレイン病変の質量分析により、パーキンソン病、レビー小体型認知症、および多系統萎縮症(MSA)において、Ser129 を選択的かつ広範囲にリン酸化されており、Ser129 のリン酸化がフィブリル形成と関連していることが示された(Fujiwara, 2002)。 レビー小体内のα-シヌクレイン形態に関する偏りのない調査により、Ser-129でのリン酸化が主要な修飾であることが確認され、SNCA A53T 家族性パーキンソン病および多系統萎縮症(MSA)でも同様のパターンが認められ、遺伝性および散発性の疾患に共通する経路の存在が示唆された (Anderson, 2006)。
AAV-A53T モデルは 、黒質におけるpSer129 α-シヌクレインの病理を再現 するが、6-OHDA による病変では、この特徴的な病理学的特徴は再現されない。
標的への結合がモデルを決定する理由
α-シヌクレインを標的とするすべての有効な治療法は、ドーパミン作動性神経細胞の生存率のみではなく、そのα-シヌクレイン標的に関連する薬力学的指標を用いて評価される。ヒトSNCA3′UTRを標的とするアンチセンスオリゴヌクレオチド(ASO)に関する脳領域分解能研究では、ヒトSNCAmRNAおよび可溶性・界面活性剤不溶性α-シヌクレインタンパク質を主要な薬力学的エンドポイントとして測定し、明らかなドーパミン枯渇に先立つ段階で、嗅球および線条体において最も強い、領域ごとに段階的な抑制が認められた(Naki, 2026)。 これらの測定結果は、α-シヌクレインモデルで使用できる標的関連の測定値の種類を示している。 ヒトのα-シヌクレイン病態を再現せず、ヒトSNCAトランスジーンも発現しない6-OHDA病変モデルは、これらの特定の薬力学的エンドポイントを評価するには適していない。このモデルでは神経保護作用を検出することはできるが、これらの測定値を用いて、α-シヌクレインを標的とする薬剤が意図した標的と結合したかどうかを確定することはできない。
臨床記録は、この区別の重要性を明らかにしている。PASADENA第2相試験では、早期パーキンソン病患者316名が52週間にわたり、プラシネズマブ1500 mg、4500 mg、またはプラセボを投与されたが、 主要評価項目であるMDS-UPDRSは達成されず、プラセボとの差は−2.0(80% CI −4.2~0.2;P = 0.24)および−0.6(80% CI −2.8~1.6; P = 0.72)であり、DaT-SPECTにおいても有意な差は認められなかった(Pagano, 2022)。 586名の被験者を対象としたより大規模なPADOVA第2b相試験でも、主要エンドポイントは達成されず、ハザード比は0.84(95% CI 0.69–1.01; p = 0.066)となり、確認された運動機能進行までの期間については、中央値が61.1週対49.7週であった(Nikolcheva, 2026)。 標的結合を評価する適切な薬力学的指標がなければ、無効な治療標的と、薬剤曝露量や標的結合が不十分な場合とを区別することは困難である。この区別は、治療標的に適したモデルと評価指標を用いて、前臨床開発の段階で明確にしておくことが重要である。
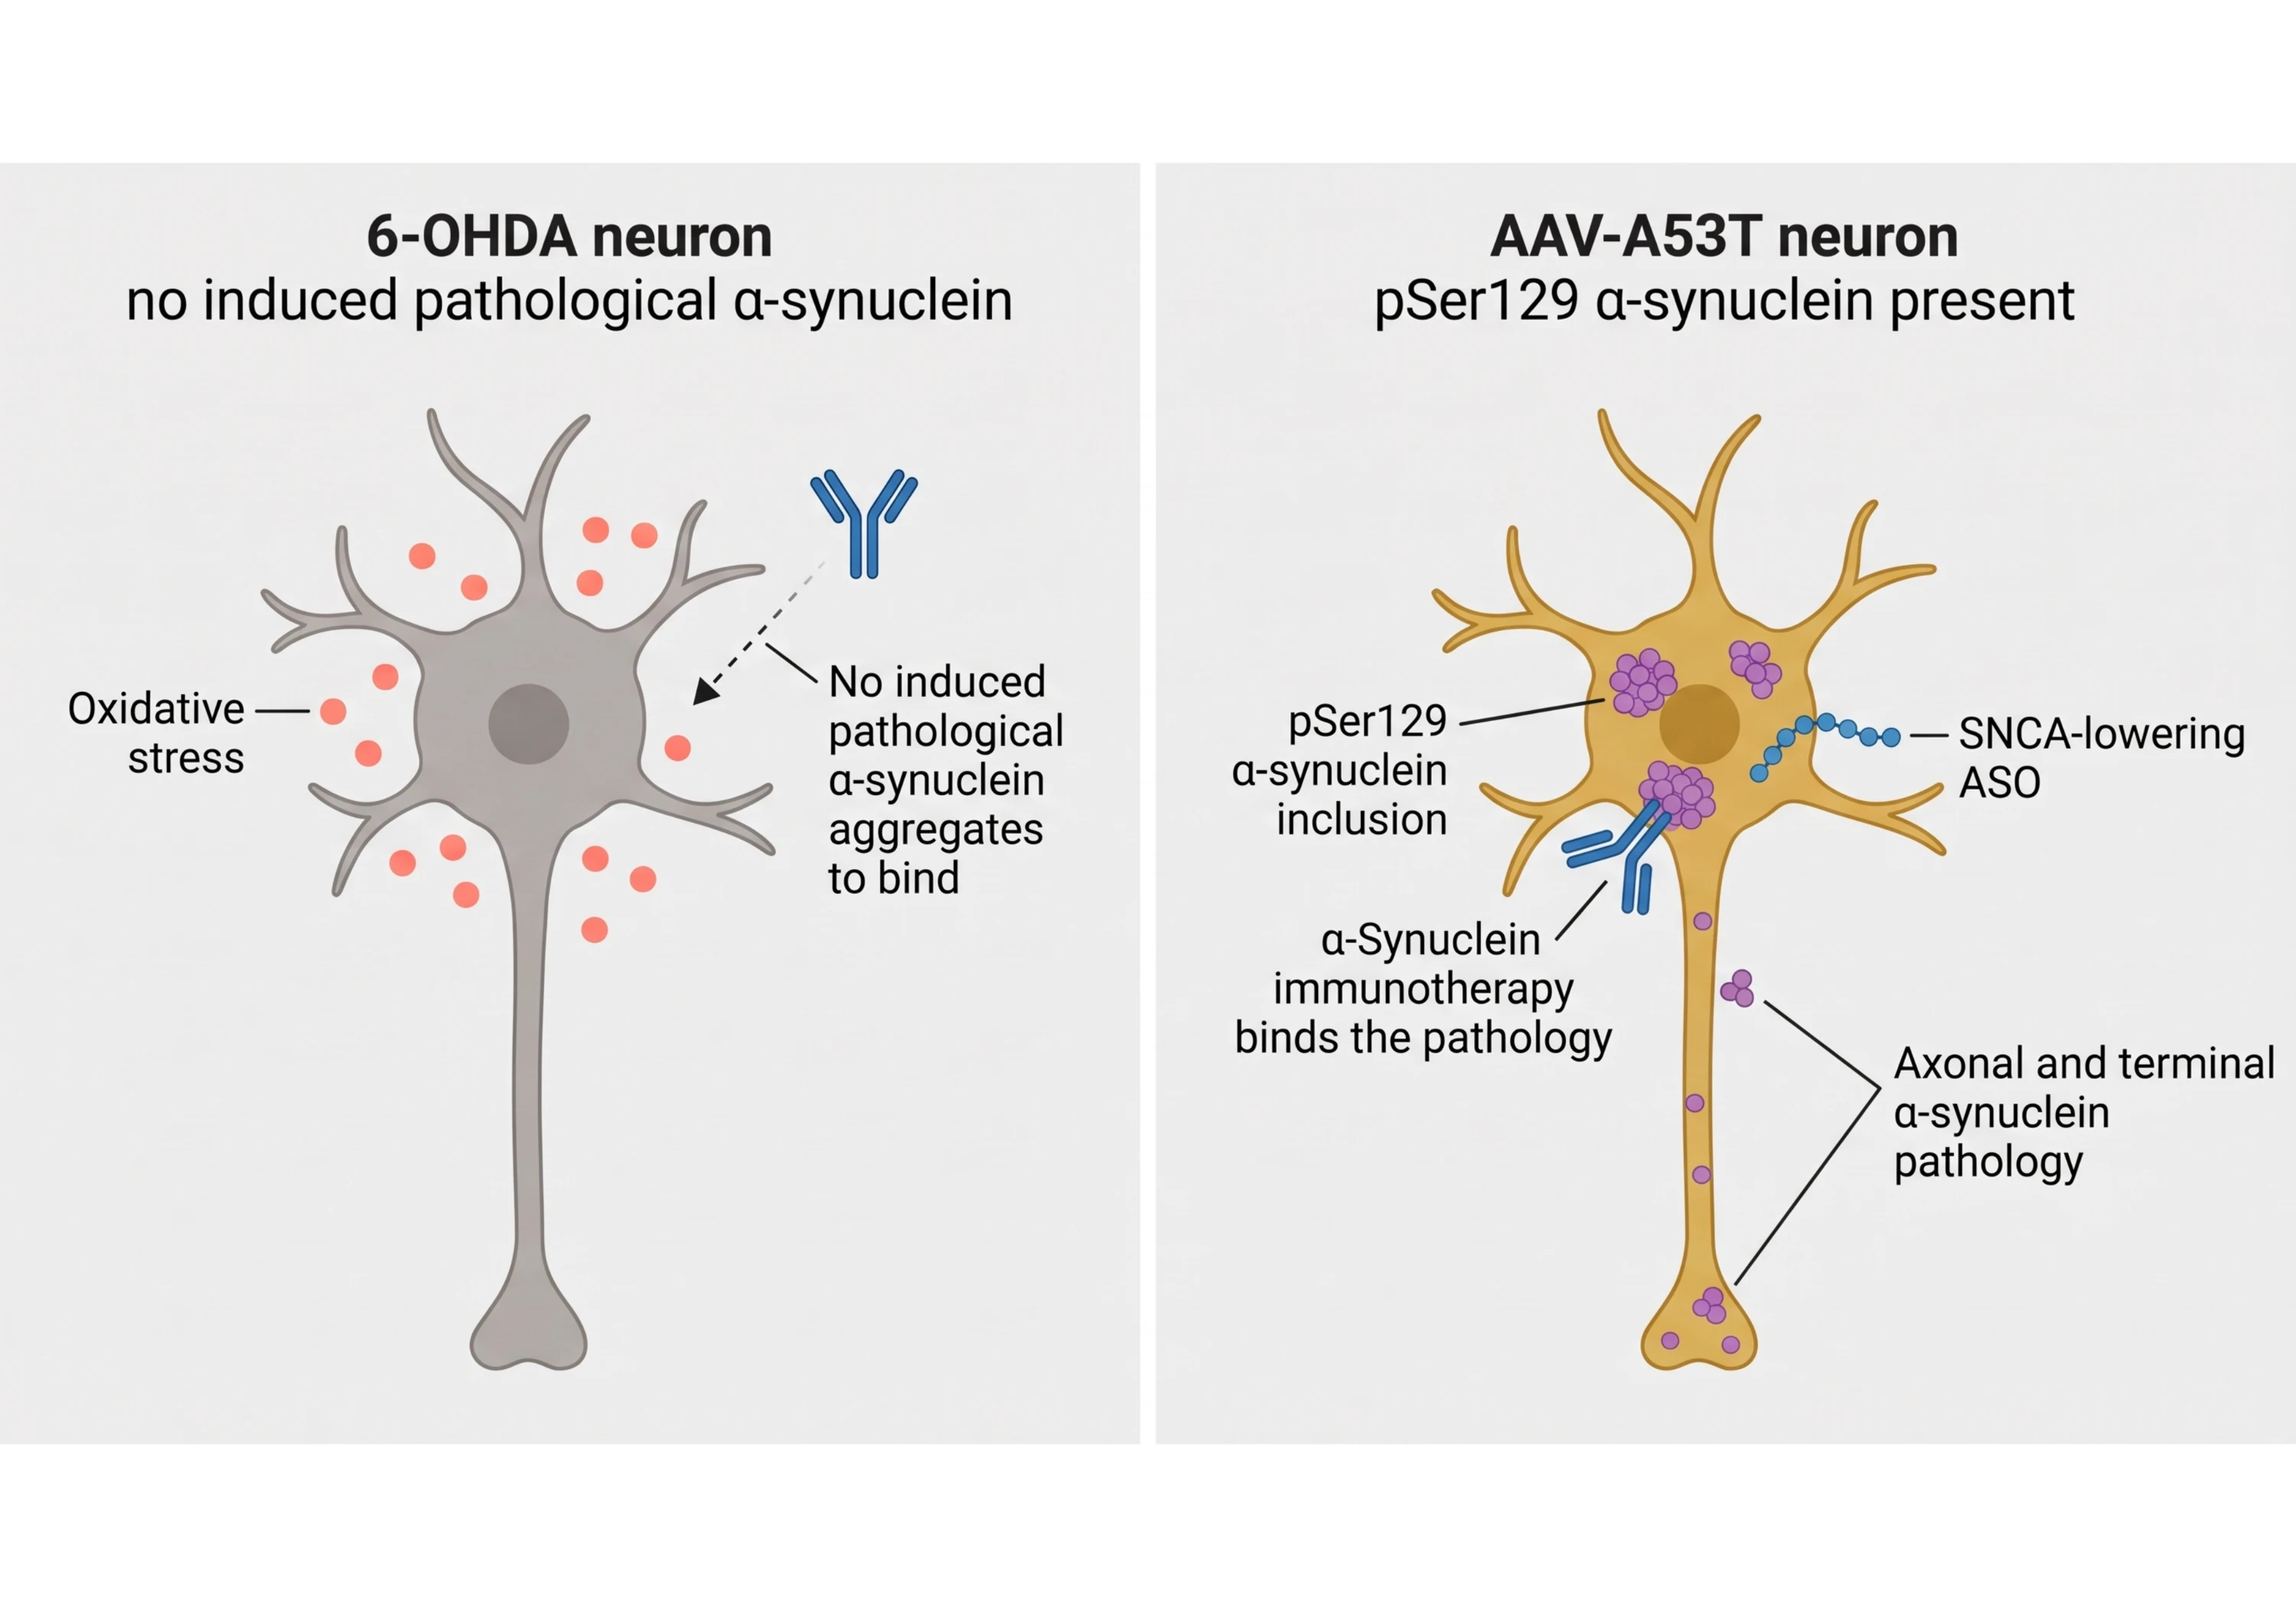
標的への結合。単一の黒質ニューロンにおける同様の比較:6-OHDA処理されたニューロンでは、標的への結合を直接評価するために必要な、実験的に誘導されたヒトα-シヌクレインの病理所見が得られないのに対し、AAV-A53Tニューロンでは、細胞体、軸索、および終末にpSer129 α-シヌクレインが存在する。
毒素モデルの臨床応用における限界
2つの総説は、前臨床段階における神経保護効果の知見を、臨床における疾患修飾療法へと応用する際の限界を浮き彫りにしている。 過去20年間の疾患修飾試験に関するナラティブ・レビューでは、前臨床研究を対症療法へと応用してきた歴史的な成功と、前臨床モデルでは有効であったにもかかわらず、臨床試験では失敗が積み重なった疾患修飾介入との対比が示されている(Mari, 2022)。 神経保護試験に関する総説では、この転用失敗の主な原因として、パーキンソン病の病因に対する理解が不完全であること、および臨床試験の薬剤選定において毒素を用いた動物モデルからのデータへの過度な依存が挙げられており、さらに検証済みの病状進行バイオマーカーの欠如が事態を悪化させていると指摘している(Athauda, 2014)。
これらの事実は、6-OHDAが不適切なモデルであることを示すものではない。むしろ、6-OHDAがすべての疾患修飾療法プログラム、特にα-シヌクレイン病変を標的とするものにとって適切なモデルではないことを浮き彫りにしている。
2つのモデルは、進行の仕方、変動性、再現性の点でどのように異なるのでしょうか?
6-OHDAモデルでは、より急速かつ急激な病変が生じます。一方、AAV-α-シヌクレインによる病変は、一般的に進行が緩やかで、軸索末端での変化から始まることもあり、ベクターの力価の影響を受けます。いずれも制御可能ですが、制御される要因は異なり、公表されている変動プロファイルも異なります。
病変の進行速度と形態
6-OHDAによる病変の進行速度は、毒素の投与部位によって異なる。内側前脳束(MFB)への注入では、ドーパミン作動性神経細胞のほぼ完全な破壊が急速に生じるのに対し、線条体内への注入では、当初は主に終末が影響を受け、その後数週間にわたって黒質細胞体の変性が進行する。 このため、より進行性のドーパミン作動性変性パターンをモデル化するには、線条体内投与プロトコルがしばしば用いられる。いずれの場合も、損傷は手術時に一度だけ与えられ、ほとんどの行動試験が開始される頃には、その損傷は継続していない。
一方、AAV-α-シヌクレインによる病態は数週間にわたって進行する。中程度の力価では、約3週目で前肢使用の非対称性や線条体THの減少が現れ、6週目までに黒質細胞の喪失とドーパミン枯渇へと進行する (Koprich, 2011)。また、4週目および6週目に見られる運動障害は、黒質細胞数ではなく、線条体の終末喪失と連動している(Musacchio, 2022)。 ラットを用いた縦断的解析により、rAAV2/7 α-シヌクレイン投与後 4 週間以内に黒質線条体病理および行動障害が認められ、その表現型は L-DOPA によって可逆的であり、PET および MR スペクトロスコピーによって非侵襲的に追跡可能であることが明らかになった(Van der Perren, 2015)。
進行性の病理変化は治療の好機をもたらし、変性が進行した後だけでなく、その前または最中に化合物を投与することを可能にする。
特定の機能障害に関連する病変の負荷
この点において、唯一の直接的な直接比較が有益である。 同じ実験室で、AAV-α-シヌクレインラットを対象に、線条体内の一部および前脳内側束全体の 6-OHDA 病変について、経時的な行動観察と一致した組織学的所見を比較した結果、著者らは、モデル間で運動障害とドーパミン作動性変性の関係に違いがあることを発見しました。 α-シヌクレインモデルでは、同程度の運動異常に対して細胞および終末の喪失が少なく、顕著で持続的な軸索病変はα-シヌクレインモデルでのみ認められた。 著者らは、α-シヌクレインモデルの方が、いずれの毒素による病変モデルよりもヒトの病理学的特徴をより忠実に再現していると結論付けた(Decressac, 2012)。この知見はラットを用いたものであるものの、有用な比較材料となる。
各モデルのばらつきの要因
6-OHDAモデルにおけるばらつきは、主に実験手順に起因する。マウスにおける線条体内投与モデルを特徴づけた著者らは、文献によって投与量、注入部位、投与時期が異なり、このモデルは十分に特徴づけられていないと指摘している(Braun, 2025)。 投与量によって動的範囲が無限に広がるわけでもない。マウスの内側前脳束病変では、2 µgは1 µgよりも多くの神経細胞喪失を引き起こしたが、行動障害のさらなる悪化は見られず、行動評価は組織学的評価に先立って頭打ちとなった(Cui, 2024)。
AAVのばらつきは、主に力価およびベクター制御の問題に起因する。調製液が希薄すぎると、3~6週間の間に代償的に消失する機能障害が生じる。逆に、調製液が濃すぎると、GFP対照動物においても確認できる非特異的毒性が引き起こされる(Koprich, 2011)。 Biospective社のAAV-A53Tを用いた研究では、THに加え、線条体のドーパミン、pSer129負荷、グリア細胞の形態測定、構造MRI、およびCSF中のニューロフィラメント軽鎖(NfL)を報告できるため、単一のマーカーのみに基づいて結論を下すことはない。 力価は固定された設定ではなく、研究デザインの変数である。我々の研究では、シリンダー試験およびテールサスペンションスイング試験における機能障害が、低、中、高の各力価で異なることが観察されており、これは予防または救済アプローチに向けた研究の方向性を定める上で役立つ。
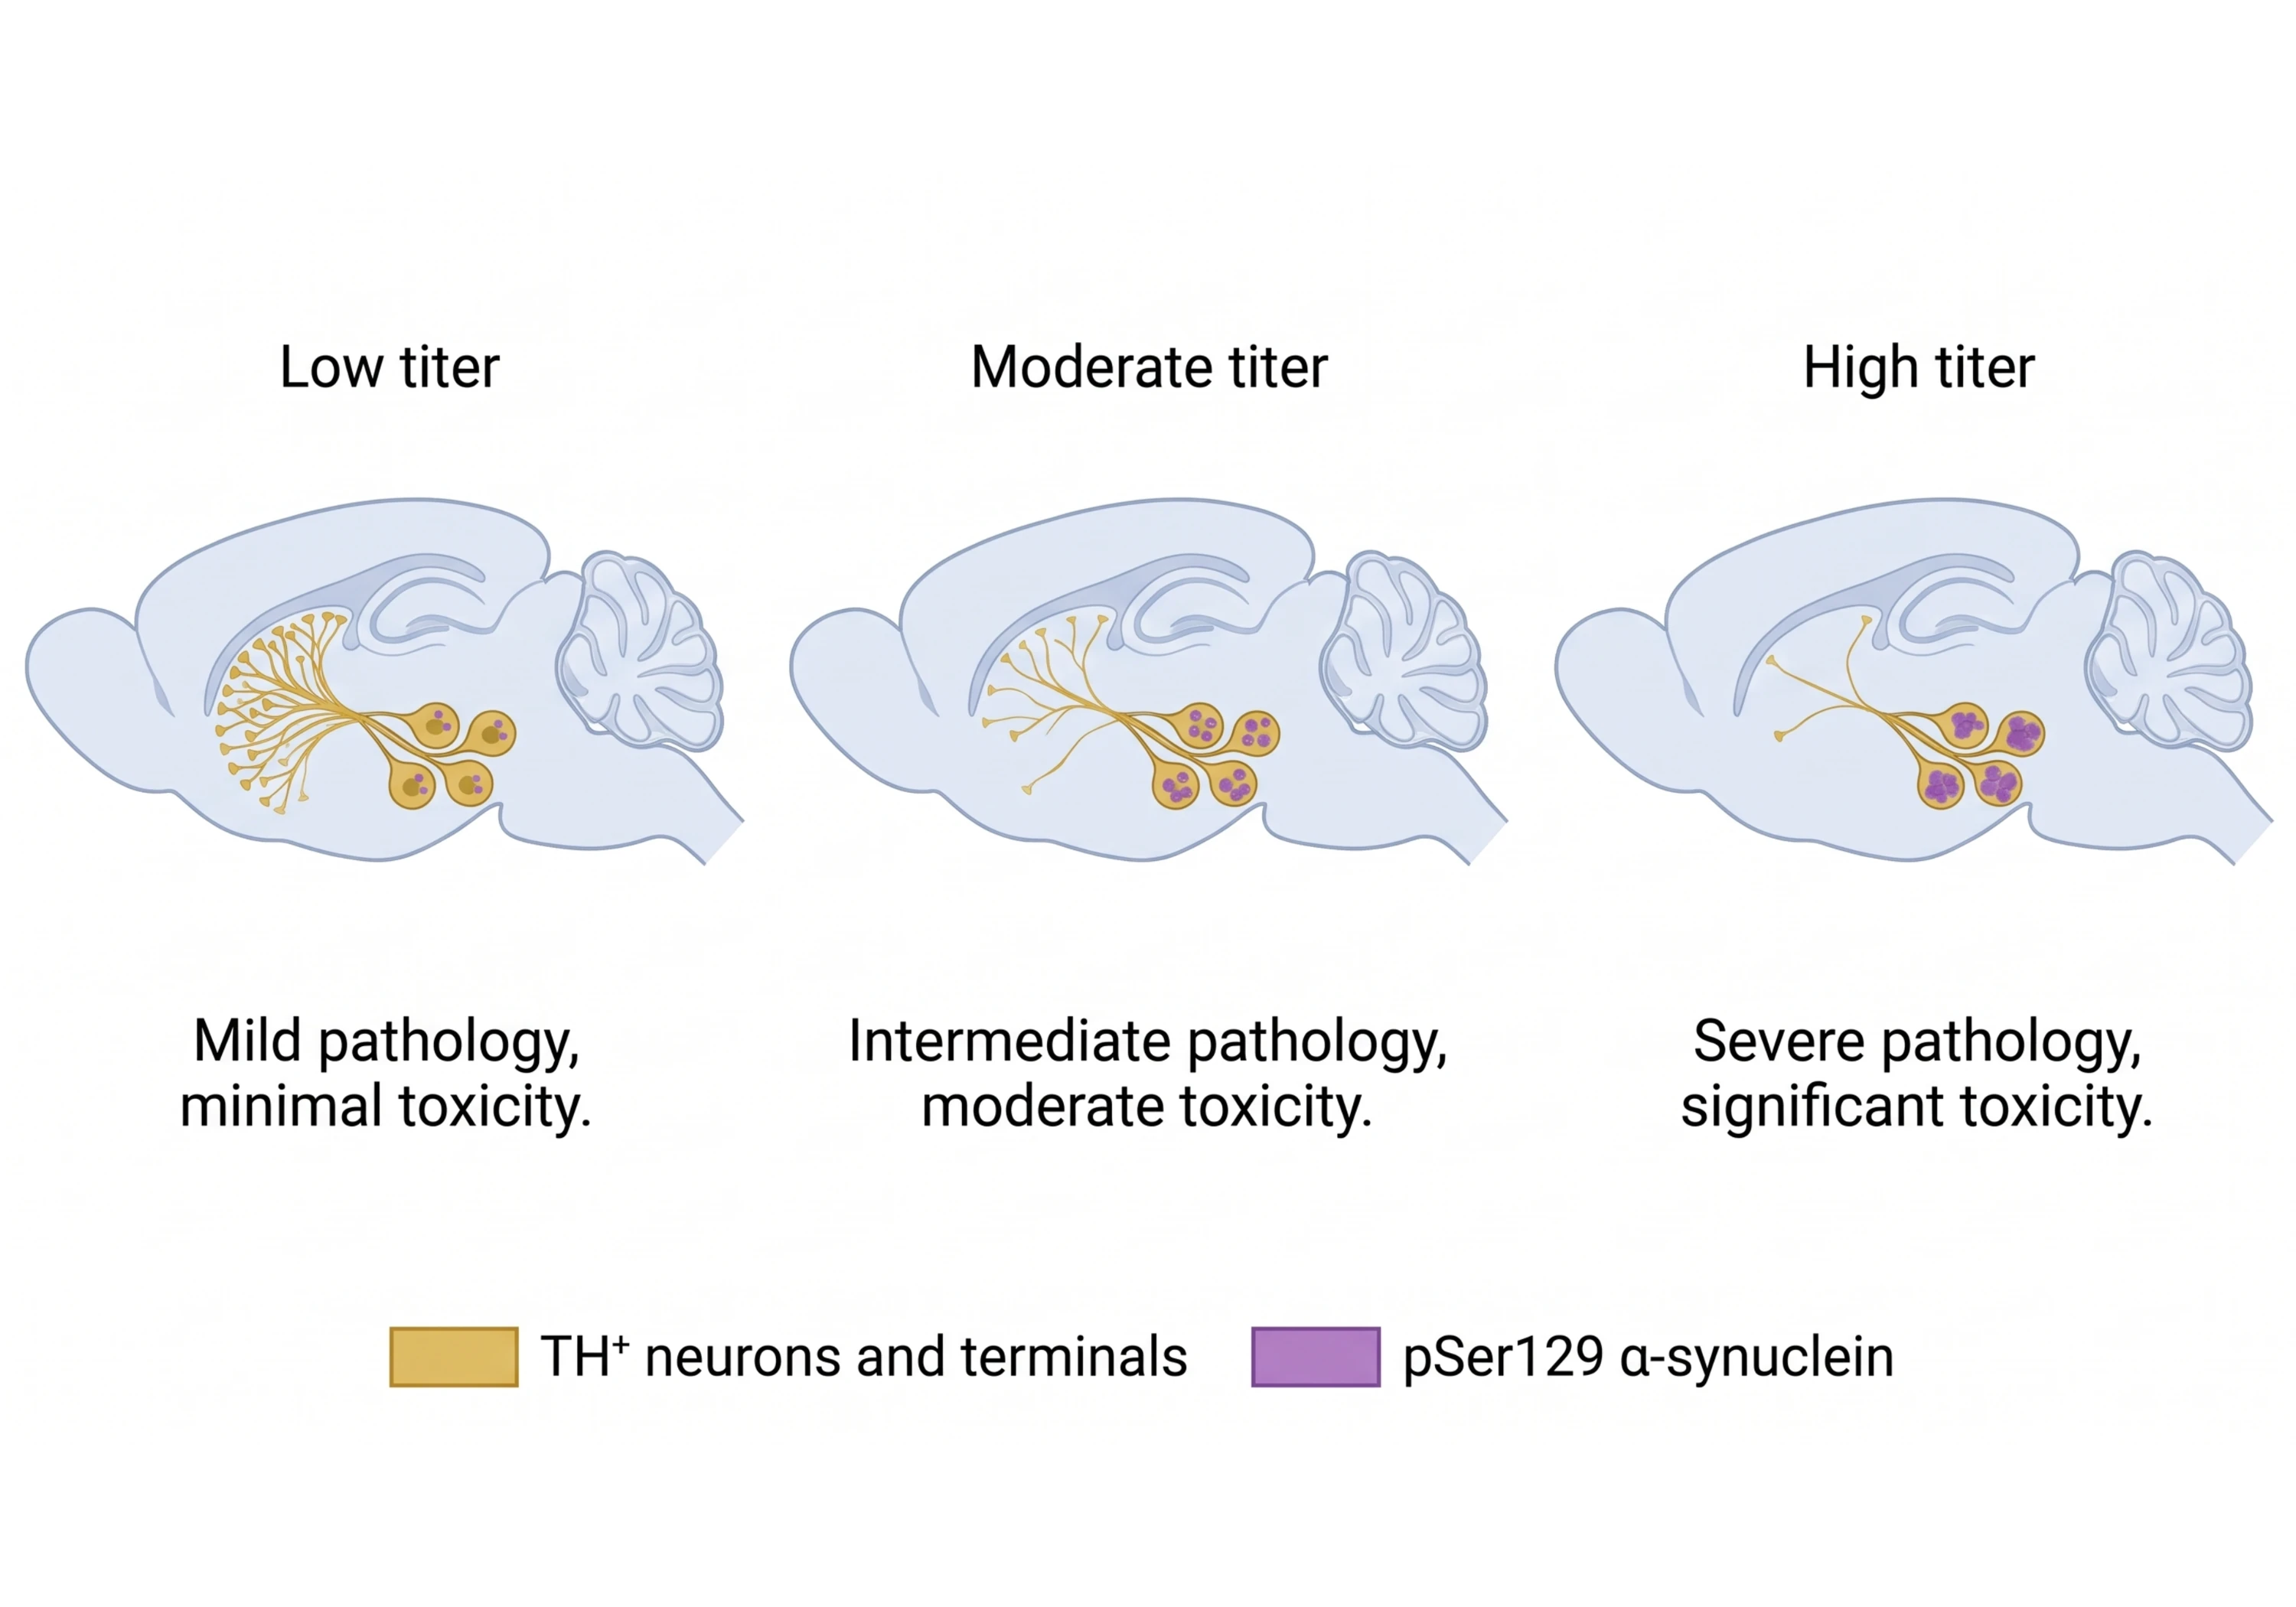
力価の段階的評価。AAVの 力価は病変の重症度に影響を与える。低力価では機能障害が代償される可能性があり、高力価では行動上の下限に達する可能性がある。中程度の力価の場合、効果量が最大となる。
これがパーキンソン病の非臨床モデルの選択にどのような意味を持つか
どちらのモデルも、本質的に再現性が高いというわけではない。むしろ、それらの変動の主な要因が異なるのである。 6-OHDA を用いた前臨床パーキンソン病モデルは、標的、投与量、および病変の検証が標準化されている限り再現性があり、AAV-α-シヌクレインを用いたモデルは、力価とベクターのコントロールが固定され、エンドポイントがまとめて解釈される限り再現性があります。
モデルの選択は、研究のスケジュールやコホートの規模にどのような影響を与えるのでしょうか?
モデルの選択により、研究計画において次の3つの点が変化します。すなわち、結果が出るまでの待ち時間、1匹の動物から得られるエンドポイントの数、そして研究者が制御できる変動の割合です。
結果が得られるまでの時間
どちらのモデルも、手術後数週間以内に運動機能の評価結果が得られます。Biospective社のAAV-A53Tマウスモデルでは、5週目にはシリンダーテスト、ロータロッド、尾懸垂スイングテストのすべてにおいて顕著な機能障害が認められます。実際には、これにより投与は注入直後に開始でき、表現型が確立された時点で最終検体の採取を予定することができます。 公表されている6-OHDAプロトコルはより短期間で済む場合もある(線条体内投与のマウスプロトコルは4週間である:Braun, 2025)。したがって、スピードだけが基準となるならば、6-OHDAに優位性があることになる。
しかし、スピードだけが基準となることはめったにない。重要な比較対象は、プログラムが対応可能な評価結果が得られるまでの時間であり、α-シヌクレインの病理を再現できないモデルでは、病変がどれほど速く進行しようとも、α-シヌクレインを標的とする化合物に対して病理に基づく評価結果を提供することはできない。
コホートサイズの決定要因
コホートサイズは効果量と残差分散によって決定されるが、一致したエンドポイントにおいて、6-OHDAマウスとAAV-α-シヌクレインマウス間で病変の変動性がどのように異なるかを定量化した公表された研究は存在しない。 文献で明らかにされているのは、その分散がどこから生じているかという点である。135件の6-OHDA齧歯類研究を対象としたPRISMA系統的レビューでは、脳の標的部位、毒素投与量、 病変の確認方法、および行動評価の報告において著しいばらつきが認められ、この不均一性が再現性や研究間の比較可能性に対する直接的な障害であると指摘し、病変範囲の標準化と一貫した評価を求めている(Prates-Rodrigues, 2025)。研究内でこれらの要因を標準化することは、選択したモデルにかかわらず、手順上のばらつきを低減するのに役立つ。
研究デザインやコホートサイズに影響を与える可能性のある3つの設計上の選択肢があり、これら3つすべてがAAVモデルで利用可能です:
重症度の段階的設定。力価によって病変の深さが決定され、その境界は下限では代償作用、上限では非特異的毒性となる(Koprich, 2011)。研究は、単に病変が最も深い場所ではなく、効果量が有用であると予想される位置に設定することができる。
同一の動物における複数のエンドポイント分類。行動評価、生体MRI、組織学、および脳脊髄液(CSF)バイオマーカーは、治療効果を補完的に測定する指標となるため、単一の測定結果が不成功であったとしても、必ずしも研究全体の結果を決定づけるわけではない。
同一動物内での比較基準。片側病変により、対側半球が組織学的および体積測定の内部基準として利用可能となる。
パーキンソン病の有効性試験の範囲を明確にする
1つのコホートからの行動、生体内イメージング、組織学、および体液バイオマーカーのデータに基づき、疾患修飾効果の主張は、これらの測定値が一致していることに依拠しています。治療法、標的、およびスケジュールを教えてください。それらに合わせて設計いたします。
パーキンソン病の有効性試験の範囲を明確にする
1つのコホートからの行動、生体内イメージング、組織学、および体液バイオマーカーのデータに基づき、疾患修飾効果の主張は、これらの測定値が一致していることに依拠しています。治療法、標的、およびスケジュールを教えてください。それらに合わせて設計いたします。
対側対照群に関する注意点
内対照法は有用ですが、完全に中立というわけではありません。ラットにおける片側6-OHDAによる病変形成後の全脳ボクセルベース形態計測では、両側で灰白質体積の変化が認められ、病変側半球で最も顕著でしたが、対側でも変化が確認されました(Westphal, 2016)。 そのため、同側と対側の差異を解釈する際には、対側半球を唯一の対照として用いるのではなく、別の対照群と併せて検討すべきである。
生体内イメージングが縦断的評価をどのように支えるか
縦断的イメージングにより、同一の動物において経時的な変化を追跡することが可能となり、非常に異なる時間スケールで収集された前臨床的および臨床的測定値を比較することが可能になる。 非侵襲的な PET および MR スペクトロスコピーにより、AAV-α-シヌクレインラットにおける神経変性を、再現性のある 4 週間の期間にわたって追跡した(Van der Perren, 2015)。 これに対し、ヒトにおける同等の評価には数年を要する。1,983名の患者を対象とした39件の研究のメタ解析では、ニューロメラニン感受性MRI測定値が運動障害(統合r = −0.406)、 罹病期間(r = −0.426)、およびHoehn・Yahr病期(r = −0.336)と相関することが示され、いずれもP < 0.001であった。年間約5%から19%の減少を報告した縦断研究はわずか4件のみであった(Akande, 2026)。
Biospective社の7T磁気共鳴画像法(MRI)では、AAV力価に比例し、TH⁺ニューロンおよび終末の喪失と一致する黒質および尾状核・被殻の萎縮が認められる。 これらの前臨床的な構造的MRI測定値は、臨床で使用されるニューロメラニン感受性MRI測定値と同等ではないものの、いずれも関連する脳領域の変化に関する縦断的情報を提供する。この戦略により、数年かけて収集された臨床画像所見と併せて、数週間にわたる前臨床試験における治療関連の変化を評価する手段が得られる。
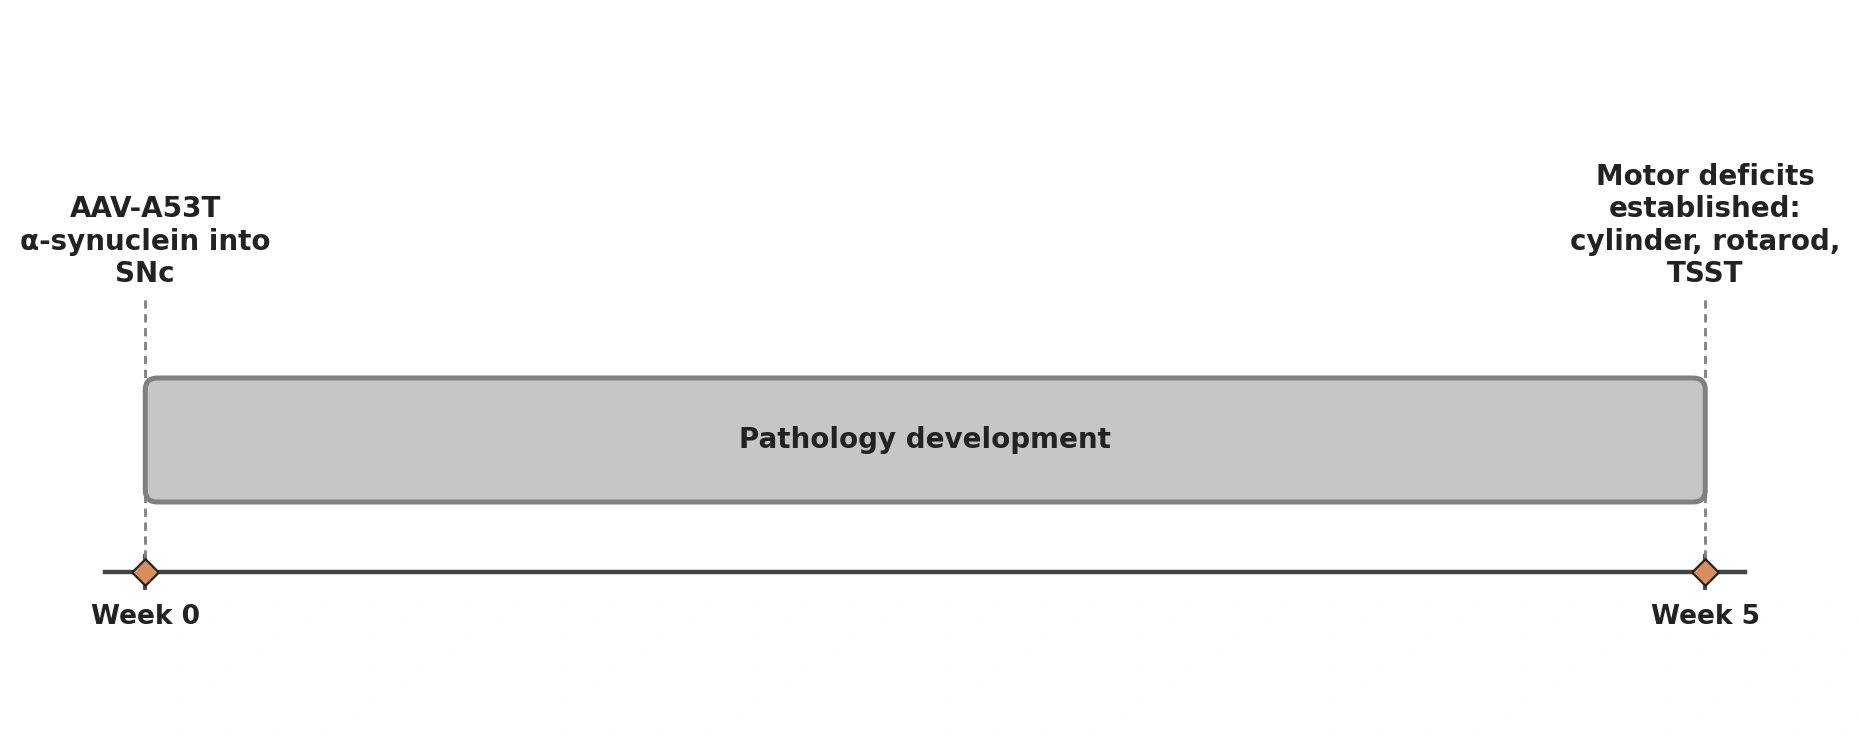
Biospective社のAAV-A53T α-シヌクレインマウスモデルにおける生体内の経過の模式図:0週目に黒質への片側注入を行い、その後数週間にわたって病理変化が進行し、5週目までにシリンダーテスト、ロータロッド、尾部懸垂スイングテストにおいて運動障害が認められるようになる。
Biospectiveは、AAV-A53T-α-シヌクレインモデルにおいて、どのようなエンドポイントを測定できるのでしょうか?
Biospectiveは、このモデルをエンドツーエンドで実行し、同じマウスから得られた4つのエンドポイントクラス(行動、生体イメージング 、組織解析、体液生化学)のデータを抽出します。これらを組み合わせて実行する意義は、単一のエンドポイントに依存するのではなく、相互に補完し合う測定指標を通じて治療効果を評価できる点にあります。
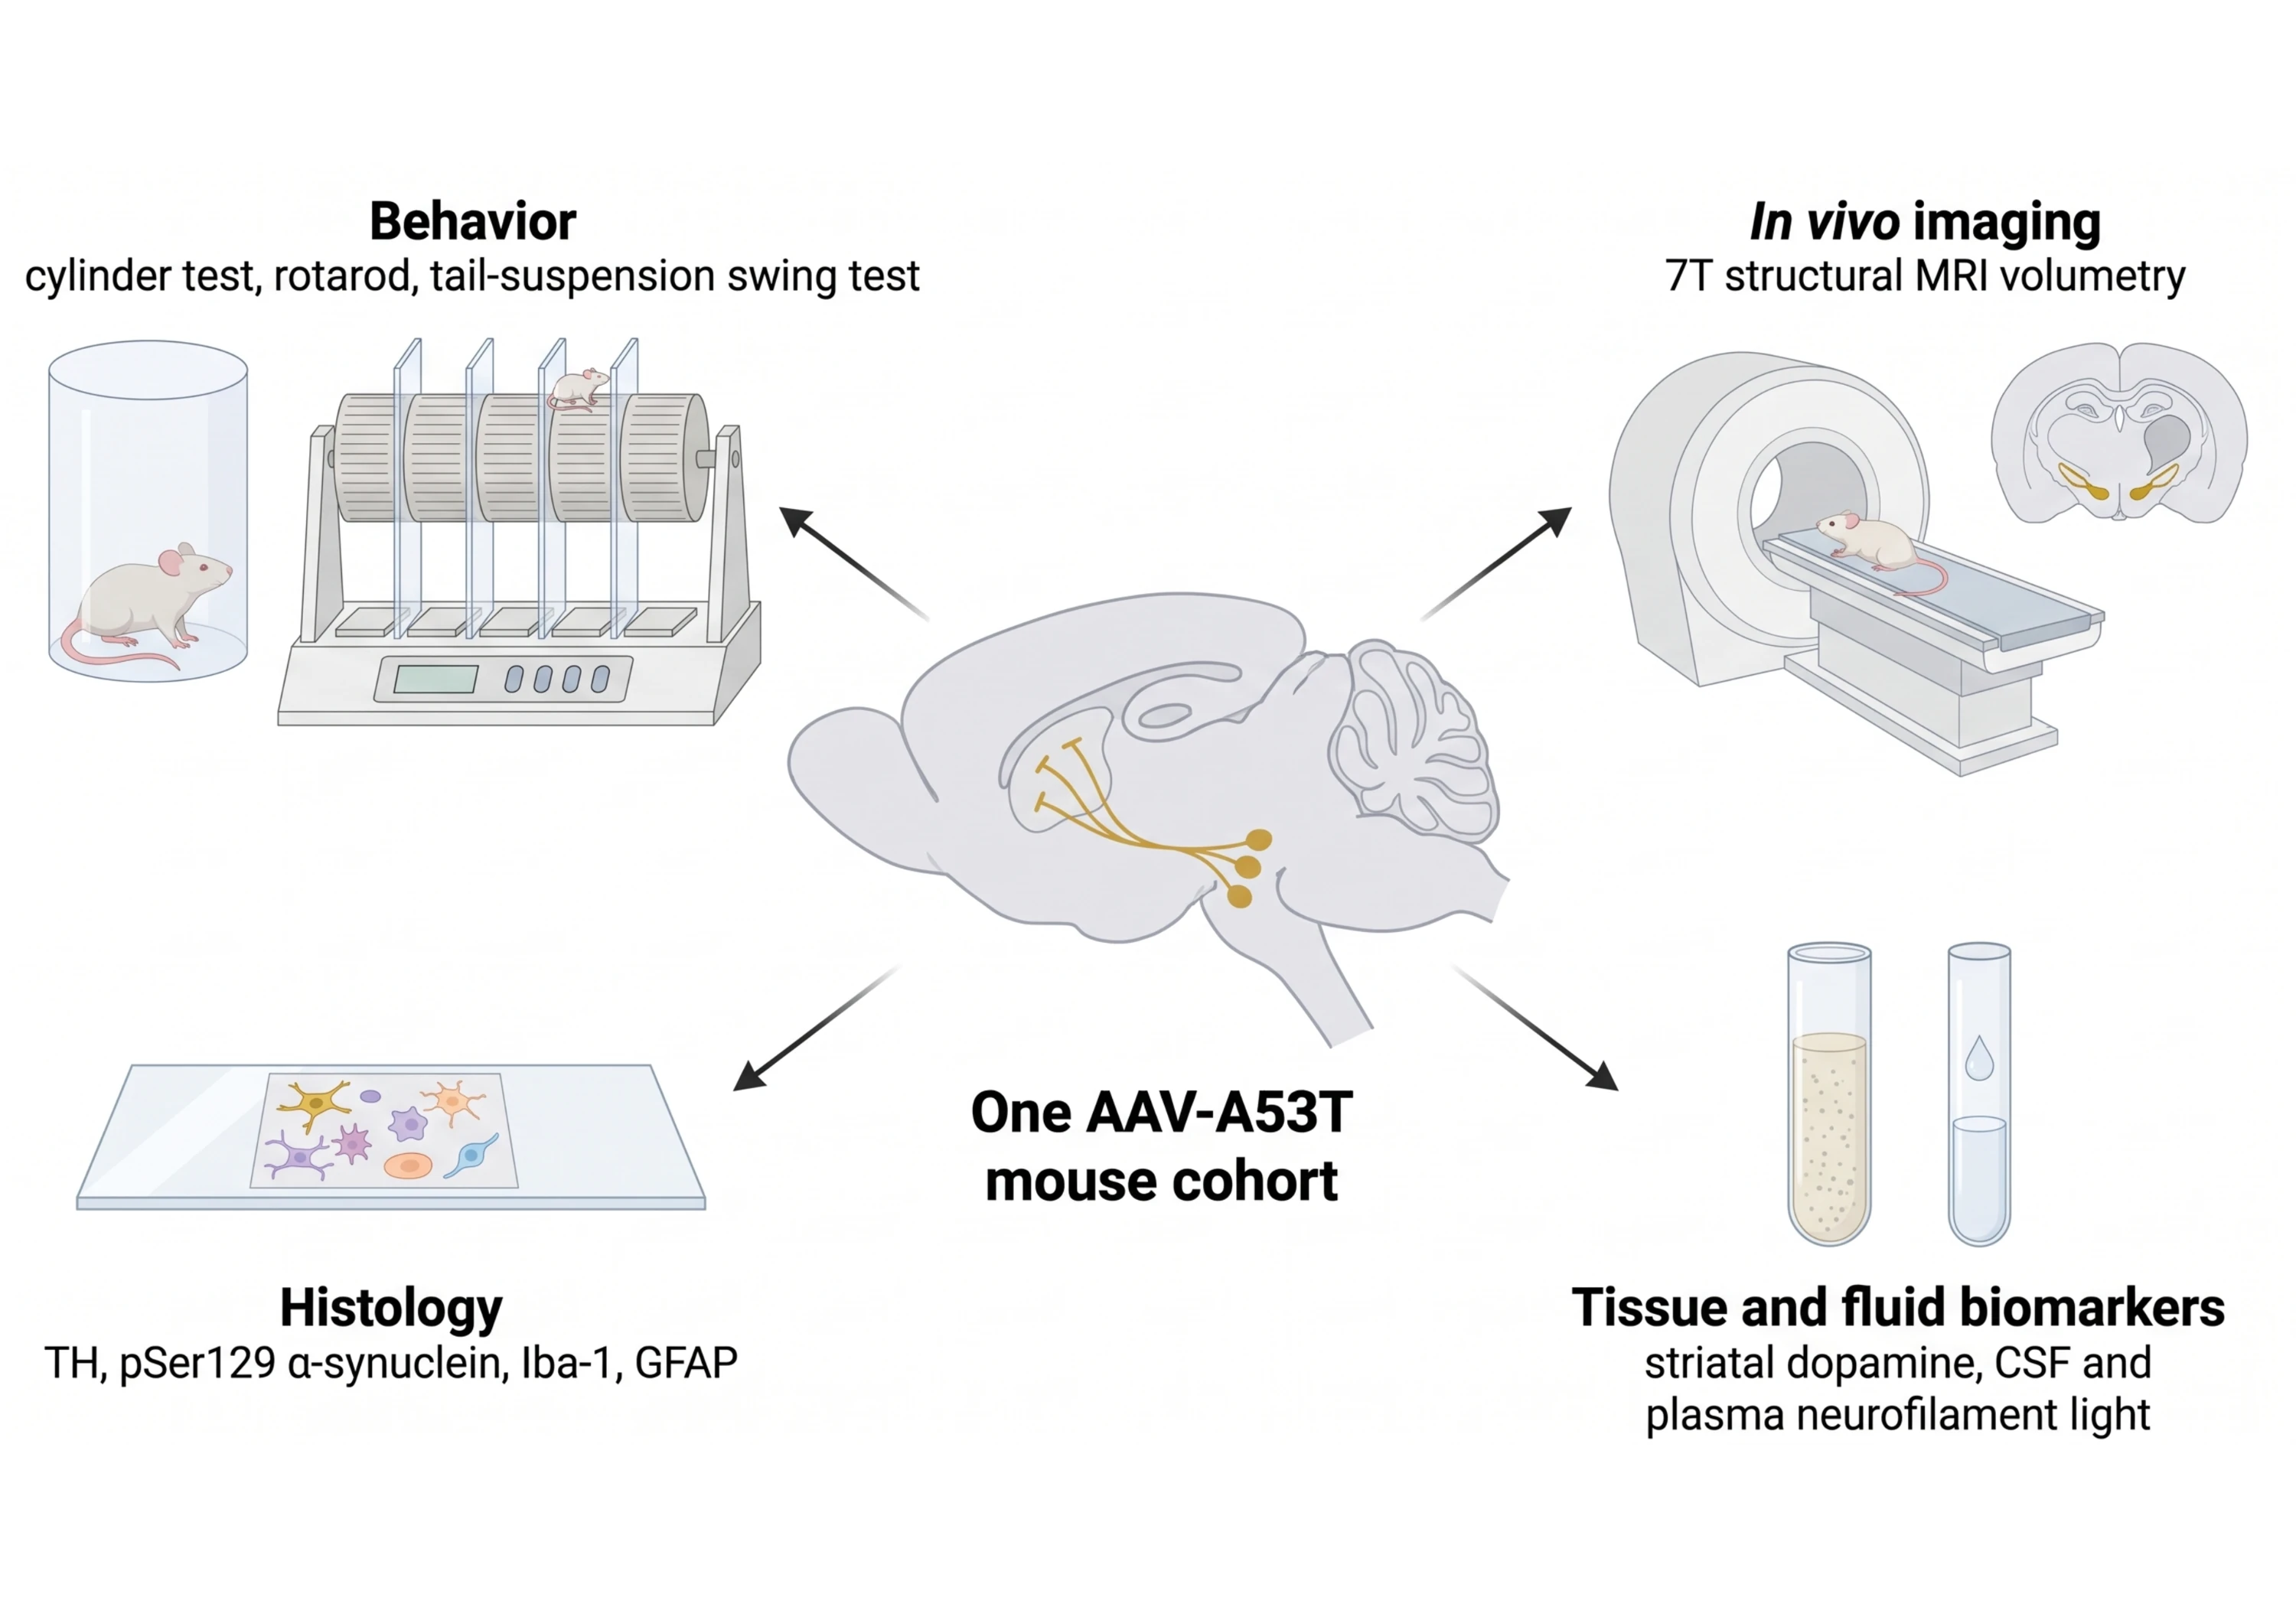
エンドポイントクラス。行動評価 、7T MRI、多重組織学検査、および組織・体液バイオマーカーは、すべて同じAAV-A53Tマウスから得られたデータであるため、疾患修飾効果に関する主張は、これらの測定値が一致していることに基づいている。
行動
運動機能については、当施設の運動・感覚機能試験を通じて、前肢の非対称性を評価するシリンダーテスト、運動協調性を評価するロータロッド、および方向性バイアスを評価する尾懸垂スイングテストを用いて評価する。 我々の研究では、これら3つの試験すべてが5~6週目にAAV-Syn動物と対照動物を区別しており、握力、シリンダー、およびスイング試験における障害は、AAV力価が低、中、高であるかによって異なる。 このモデルにおける運動表現型は、黒質細胞数ではなく線条体の終末喪失と相関しているため(Musacchio, 2022)、行動は黒質線条体路の脱神経に関連する機能的指標として解釈され、解剖学的所見に代わるものではなく、解剖学的所見と併せて報告される。
生体イメージング
7T構造MRIにより、黒質および尾状核・被殻の体積を測定する。我々のデータでは、これらはAAV力価に比例し、TH⁺ニューロンおよび終末の喪失と一致している。 また、イメージングにより、研究デザインは縦断的になります。各動物がそれ自体を基準とするため、経時的な構造的変化を追跡することが可能になります。臨床分野では、ニューロメラニン感受性MRIを用いて黒質の変化が測定されており、年間約5%から19%の減少が報告されています(Akande, 2026)。
組織解析
自動定量化を伴う多重免疫蛍光法により、TH⁺ニューロンおよび終末、pSer129 α-シヌクレインの蓄積量、ドーパミン作動性核、およびグリア細胞の形態が網羅される。ミクログリアおよびアストロサイトの反応は、単なる染色密度ではなく、形態に基づいて定量化される: 中脳、SNc、SNrにおいてIba-1⁺密度および活性化ミクログリアが増加し、中脳およびSNcにおいてGFAP⁺密度および肥大性アストロサイトが増加し、pSer129凝集体が存在する部位にミクログリアが凝集する。当社のミクログリア組織学および解析サービスでは、すべてのモデルに対して同一の解析パイプラインを適用している。
グリア関連のエンドポイントは有益な情報を提供する。ウイルス性α-シヌクレインモデルでは、ミクログリアの活性化は運動機能の低下に必ずしも続くのではなく、それと同時に早期に現れる(Kefalakes, 2025)。また、ミクログリアがα-シヌクレイン関連の病態に寄与し得るという証拠がある: AAVによるα-シヌクレインの過剰発現と黒質内フィブリルを組み合わせたマウスモデルにおいて、T細胞を除去するとα-シヌクレインの病理およびミクログリアの活性化が軽減され、一方でミクログリアを枯渇させるとT細胞の蓄積が減少して病理も軽減された(Ohtake, 2026)。
ヒトにおいても同様の現象が測定可能である。新規診断患者のコホートにおいて、3年後に認知機能障害を呈した群では対照群と比較して、黒質のみが¹¹C-PK11195の結合強度が高かった。また、ベースライン時の黒質への結合強度と、脳脊髄液(CSF)対血液の記憶B細胞比を組み合わせることで、認知機能の低下を予測することができ、 主要なマーカーのAUCは0.79から0.85に達した(Scott, 2025)。
体液および生化学
線条体のドーパミンは脳ホモジネートから直接定量され、脳脊髄液(CSF)および血漿は、当研究のニューロフィラメント軽鎖(NfL)アッセイを含む体液および細胞性バイオマーカーの測定のために採取される。当研究のデータでは、AAV-SynマウスにおいてCSF中のNfL値が上昇している。
この数値に関しては2つの注意点がある。 NfLは検証済みではあるが非特異的なマーカーである。78件の研究および13,120名の参加者を対象としたベイズネットワーク・メタ解析によると、パーキンソン病では対照群と比較してCSFおよび血中NfLが上昇していたが、非定型パーキンソニズムではさらに高く、多系統萎縮症(MSA)におけるCSF NfLは (MSA)における脳脊髄液中のNfL値は、パーキンソン病よりもSMD 1.85(95% CrI 1.55–2.15)高く、著者らはNfLを診断に用いる際には慎重であるべきだと訴えている(Kou, 2025)。 したがって、我々はNfLを、疾患特異的あるいは単独のアウトカムとしてではなく、組織学的所見やその他のエンドポイントと併せて解釈される、薬物反応性のある神経軸索損傷の指標として扱う。
データの考察
このモデルにおける病理は空間的なものであり、要約統計量では組織内の情報をすべて捉えきれない場合があります。 当社のインタラクティブ画像を使用すると、マルチプレックス免疫蛍光切片全体をパンやズームして閲覧したり、pSer129、チロシンヒドロキシラーゼ、ドーパミン作動性核、Iba-1、GFAP、DAPI チャンネルを切り替えたりすることができ、所見に関する解説も表示されます。 α-シヌクレインに対するグリア細胞の反応に関する関連研究については、PDにおけるミクログリア、アストロサイト、およびα-シヌクレインに関するリソースで取り上げており、その背景にある分析プラットフォームについては、ミクログリア・シヌクレイン・イノベーションページで解説しています。
パーキンソン病のプログラムには、どのモデルを選べばよいでしょうか?
現在進行中の多くのパーキンソン病治療薬開発プログラムにおいて、AAV-A53T-α-シヌクレインマウスは、特にα-シヌクレインの病態を標的とするプログラムにとって適切な選択肢である一方、6-OHDAは、より限定的で明確に定義された一連の課題に対しては最適な選択肢である。 決定的な問いは、どちらのモデルがより重症か、あるいは進行が速いかということではなく、選択したモデルにおいて、化合物の作用機序に適切な標的があり、測定可能な評価指標が存在するかどうかである。
次のような場合には、6-OHDAマウスを選択してください。
化合物が症状改善型、ドーパミン作動型、または回復型であり、必要な評価指標が黒質線条体機能である場合。この病変は進行が速く、投与量に応じて段階的に評価可能であり、各研究所で確立された手法です。また、運動障害およびいくつかの非運動障害を再現し(Braun, 2025)、ドーパミン作動薬に反応します。 これは、レボドパ系薬理学、ジスキネジアの研究、ドーパミン作動性細胞および遺伝子置換療法、ならびに酸化損傷からドーパミン神経細胞を保護することを目的としたスクリーニングにとって、妥当なプラットフォームである。
設計にあたっては「上限」を念頭に置くこと――マウスの内側前脳束病変では、細胞喪失が継続しているにもかかわらず、1 µgを超えると行動障害は頭打ちとなる(Cui, 2024) — また、系統的な文献で再現性の欠如の主な原因として特定されている(Prates-Rodrigues, 2025)、標的、投与量、および病変の確認を標準化する必要があります。
以下の場合は、AAV-A53T-α-シヌクレインマウスを選択してください
研究プログラムが疾患修飾を目的とする場合、特にα-シヌクレインを標的とする場合は、AAV-A53T-α-シヌクレインマウスを選択してください。免疫療法、SNCA低減オリゴヌクレオチド、凝集阻害剤、および遺伝子治療では、α-シヌクレインの発現、量、または病理に関する薬力学的測定が必要となる可能性があります(Naki, 2026)。 AAV-A53Tモデルは、6-OHDAモデルでは再現されないα-シヌクレイン関連の病理所見を提供します。
また、治療の余地を残す、進行が緩やかで末梢から始まる病変が必要な場合、組織学的測定を補完する生体内イメージングや体液バイオマーカーを必要とする場合、あるいは神経炎症がメカニズムの一部である場合にも、このモデルを選択してください。 一般的に、α-シヌクレインモデルでは、ミクログリアの活性化が早期に生じることがあり、免疫細胞集団を操作することで病理所見を変化させることができます(Ohtake, 2026;Kefalakes, 2025)。 自然免疫の標的を研究しているプログラムでは、神経変性疾患におけるNLRP3インフラマソーム、TNF-αとミクログリア、TREM2とミクログリアに関するリソースから、それらのメカニズムの背景情報を得ることができます。また、エンドポイントに関する側面については、ミクログリア形態解析の概要や、ニューロンとミクログリアの相互作用に関する当グループの研究成果を参照してください。
治療プログラムに適したモデルの選定
薬剤が対症療法である場合は、6-OHDAモデルを用い、厳格なプロトコルに従って実験を行ってください。 薬剤が疾患の経過を変えることを目的とする場合、治療メカニズムがα-シヌクレインの病態を標的とするなら、α-シヌクレインモデルを検討してください。過去20年間の臨床試験における失敗の一因は、臨床試験用の疾患修飾薬を選定する際に毒素モデルデータが用いられたことにあるとされています (Athauda, 2014;Mari, 2022)。作用機序がドーパミン作動性神経細胞の生存と凝集の両方に関わる場合、これら2つのモデルは相互に補完的な知見を提供するため、順次実施することが可能です。その際、α-シヌクレインモデルは、プログラムのα-シヌクレイン成分に関して、より関連性の高い病理学的指標を提供します。既成フィブリル(PFF)モデルを含む他のα-シヌクレインモデルは、シード現象や拡散に関する疑問の解明に適しており、創薬のためのAAVシヌクレインモデルに関する当社のリソースでは、研究デザインについてさらに詳しく解説しています。
お問い合わせ
パーキンソン病治療薬の開発において、6-OHDAマウスとAAV-A53T-α-シヌクレインマウスのどちらを選択すべきかについてのご質問や、治療効果試験に用いている神経変性疾患モデルに関する具体的な情報については、当チームが喜んでお答えいたします。
パーキンソン病治療薬の開発において、6-OHDAマウスとAAV-A53T-α-シヌクレインマウスのどちらを選択すべきかについてのご質問や、治療効果試験に用いている神経変性疾患モデルに関する具体的な情報については、当チームが喜んでお答えいたします。
当社のモデルについて詳しく見る
Biospective社は、神経変性疾患のさまざまなげっ歯類モデルを保有しており、それぞれについて、生体内の測定値およびex vivo測定値の妥当性が検証されています。以下は、パーキンソン病研究プログラムに最も関連性の高いモデルです。
AAV-α-シヌクレインモデル
黒質への片側性AAV-ヒト-A53T-α-シヌクレインの送達により、5週目までに運動障害、pSer129病理、ドーパミン作動性神経細胞の喪失、7T MRIによる萎縮、および脳脊髄液中のニューロフィラメント軽鎖の増加が認められた。
α-シヌクレインPFFモデル
α-シヌクレイン病理のテンプレート形成および脳内の関連領域間への拡散に関する疑問を解明するための、プレフォームドフィブリル(PFF)を用いたシード法。
パーキンソン病モデル
Biospective社のパーキンソン病げっ歯類モデルの全ラインナップ。各モデルで得られる評価指標と、メカニズムに応じたモデルの選定に関するガイダンスが掲載されています。
AAV-α-シヌクレインモデル
黒質への片側性AAV-ヒト-A53T-α-シヌクレインの送達により、5週目までに運動障害、pSer129病理、ドーパミン作動性神経細胞の喪失、7T MRIによる萎縮、および脳脊髄液中のニューロフィラメント軽鎖の増加が認められた。
α-シヌクレインPFFモデル
α-シヌクレイン病理のテンプレート形成および脳内の関連領域間への拡散に関する疑問を解明するための、プレフォームドフィブリル(PFF)を用いたシード法。
パーキンソン病モデル
Biospective社のパーキンソン病げっ歯類モデルの全ラインナップ。各モデルで得られる評価指標と、メカニズムに応じたモデルの選定に関するガイダンスが掲載されています。
よくある質問
よくある質問
参考文献
キーワード
関連コンテンツ
関連コンテンツ
リソース
パーキンソン病治療薬開発のためのAAV α-シヌクレインモデル
疾患修飾療法の非臨床研究におけるマウスおよびラットモデルにおける、アデノ随伴ウイルス(AAV)によるα-シヌクレイン発現の概要。
リソース
パーキンソン病モデルにおけるニューロフィラメント軽鎖
パーキンソン病のマウスおよびラットモデルにおいて、ニューロフィラメント軽鎖(NfL;NF-L)の濃度が、血液(血漿・血清)および脳脊髄液(CSF)のバイオマーカーとしてどのように活用できるか。
プレゼンテーション
α-シヌクレインPFFマウスモデルにおけるミクログリアの活性化
我々は、α-シヌクレインのプレフォームドフィブリル(PFF)によるシード&スプレッド現象をモデル化したパーキンソン病マウスモデルにおいて、形態学的所見に基づき、ミクログリアの活性化を定量的に評価した。
リソース
パーキンソン病治療薬開発のためのAAV α-シヌクレインモデル
疾患修飾療法の非臨床研究におけるマウスおよびラットモデルにおける、アデノ随伴ウイルス(AAV)によるα-シヌクレイン発現の概要。
リソース
パーキンソン病モデルにおけるニューロフィラメント軽鎖
パーキンソン病のマウスおよびラットモデルにおいて、ニューロフィラメント軽鎖(NfL;NF-L)の濃度が、血液(血漿・血清)および脳脊髄液(CSF)のバイオマーカーとしてどのように活用できるか。
プレゼンテーション
α-シヌクレインPFFマウスモデルにおけるミクログリアの活性化
我々は、α-シヌクレインのプレフォームドフィブリル(PFF)によるシード&スプレッド現象をモデル化したパーキンソン病マウスモデルにおいて、形態学的所見に基づき、ミクログリアの活性化を定量的に評価した。