


Comparaison entre les souris 6-OHDA et les souris AAV-α-synucléine dans le cadre des programmes de recherche sur la maladie de Parkinson
Quel modèle murin de la maladie de Parkinson correspond le mieux à votre programme : comparaison de la pathologie, de l'évolution dans le temps, de la variabilité et des paramètres d'évaluation.
 Que sont les souris 6-OHDA et les souris AAV-α-synucléine ?
- En quoi ces deux modèles diffèrent-ils en termes de pathologie de l'α-synucléine et d'interaction avec la cible ?
- En quoi ces deux modèles diffèrent-ils en termes de progression, de variabilité et de reproductibilité ?
- En quoi le choix du modèle influe-t-il sur la durée des études et la taille des cohortes ?
- Quels paramètres Biospective peut-il mesurer dans le modèle AAV-A53T-α-synucléine ?
- Quel modèle choisir pour votre programme de prise en charge de la maladie de Parkinson ?
Résumé
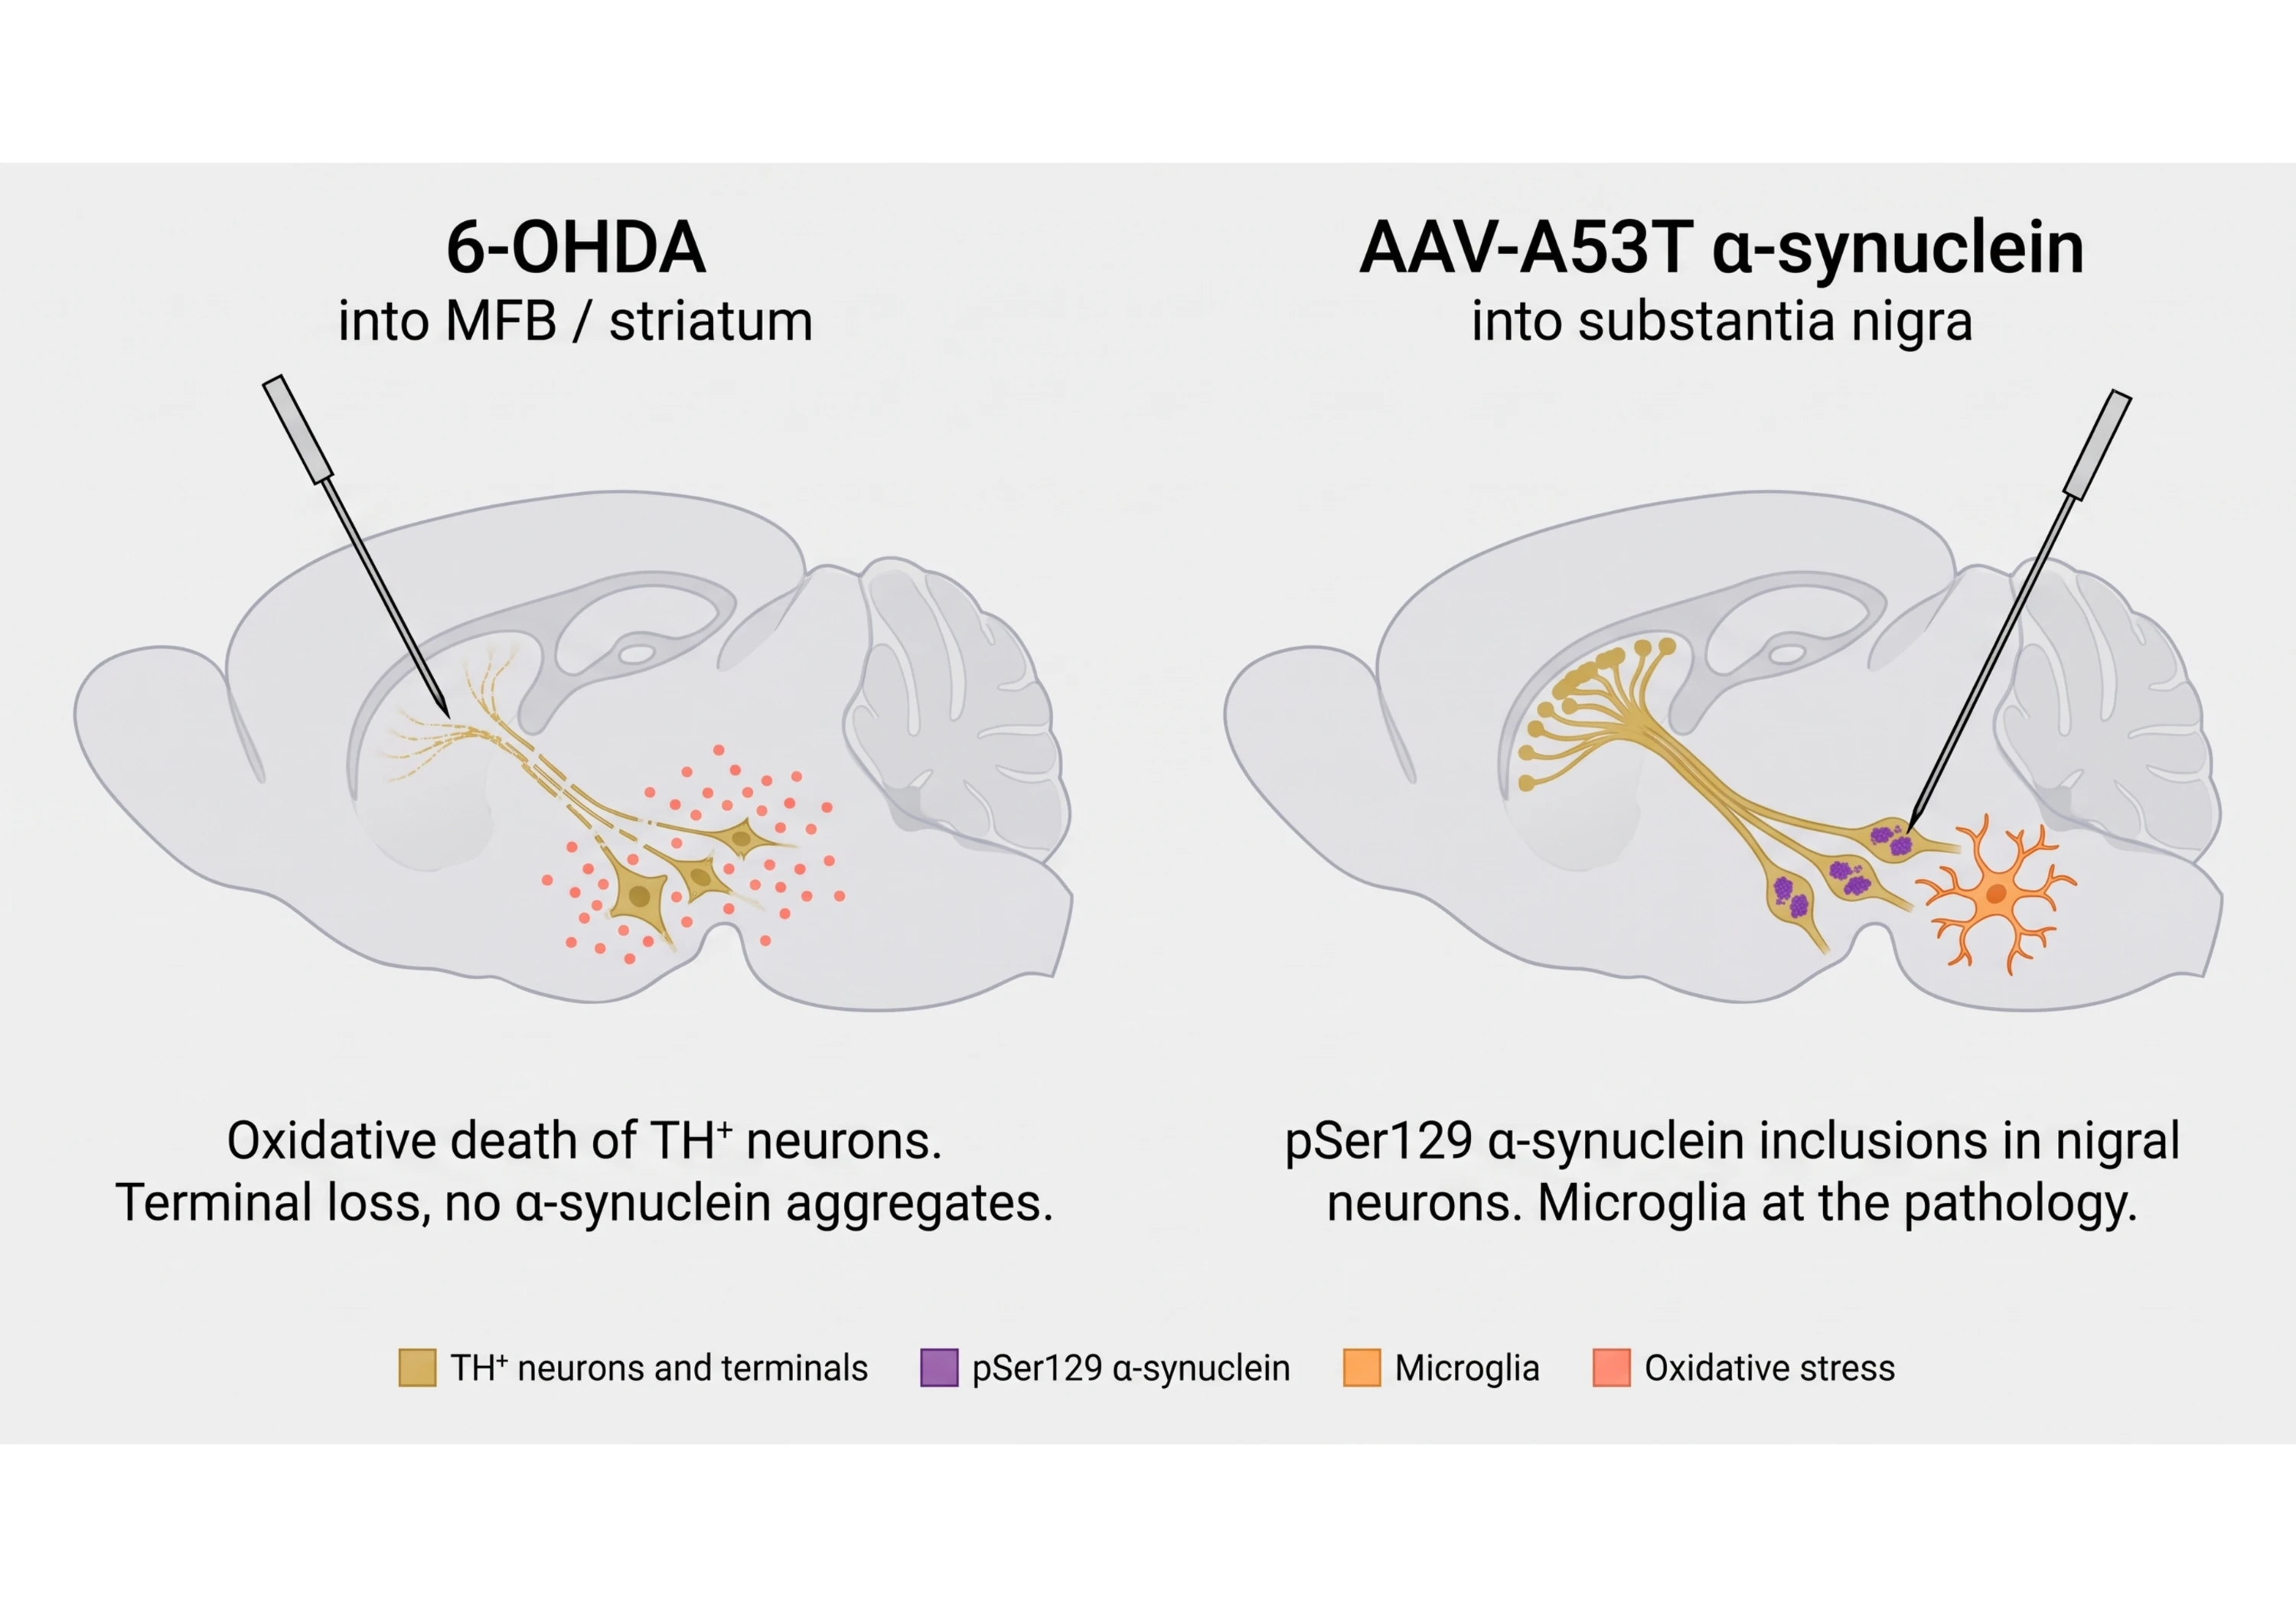
En bref : les souris 6-OHDA et les souris AAV-α-synucléine permettent d’aborder des questions de recherche différentes. La lésion induite par le 6-OHDA provoque une atteinte oxydative rapide qui dénerve la voie nigrostriatale sans reproduire l’agrégation caractéristique de l’α-synucléine observée dans la maladie de Parkinson, ce qui en fait une plateforme utile pour les études sur les symptômes et la restauration de la fonction dopaminergique. En revanche, l’expression de l’α-synucléine humaine A53T médiée par l’AAV induit une pathologie liée à l’α-synucléine phosphorylée dans les neurones nigraux, parallèlement à une dégénérescence de la voie nigrostriatale. Lors d’une comparaison directe chez le rat, l’AAV-A53T a entraîné une altération motrice équivalente à celle provoquée par le 6-OHDA, mais avec une perte cellulaire moindre et une pathologie axonale persistante non observée dans les lésions toxiques (Decressac, 2012). Étant donné que l’évaluation pharmacodynamique des thérapies ciblant l’α-synucléine repose sur des mesures liées à l’α-synucléine (Naki, 2026), le modèle 6-OHDA n’est pas bien adapté pour évaluer l’engagement de la cible par ces thérapies. Le modèle murin AAV-A53T de Biospective, en revanche, entraîne des déficits moteurs dès la 5e semaine, accompagnés d’une pathologie pSer129, d’une perte dopaminergique, d’une activation gliale, d’une atrophie détectée par IRM 7T et de modifications du neurofilament léger dans le LCR. Ensemble, ces caractéristiques en font une option de choix pour l'évaluation des traitements modificateurs de la maladie ciblant l'α-synucléine.
Vidéo 1 : Pathologie liée à la Ser129humaine , les deux voies d'induction, les marqueurs utilisés pour évaluer les traitements ciblant l'α-synucléine, le dossier clinique et les paramètres d'évaluation disponibles dans les modèles murins 6-OHDA et AAV-A53T-α-synucléine.
Que sont les souris 6-OHDA et les souris AAV-α-synucléine ?
Le modèle 6-OHDA en bref
Brève présentation du modèle 6-OHDA de la maladie de Parkinson.
Où va la toxine ?
Le 6-OHDA ne pouvant franchir la barrière hémato-encéphalique (BHE), il est injecté par stéréotaxie dans le faisceau médial du cerveau antérieur (MFB), la substance noire (SN) ou le striatum. Le site choisi détermine la rapidité et l'ampleur de la perte dopaminergique.
Ce qu'il produit
Une perte, proportionnelle à la dose, de neurones dopaminergiques de la substance noire et de leurs terminaisons striatales, des déficits moteurs, plusieurs symptômes non moteurs, ainsi qu’une activation astrocytaire et microgliale qui persiste pendant plusieurs semaines.
Ce qu'il ne produit pas
Ce modèle ne reproduit pas l'agrégation caractéristique de l'α-synucléine ni la pathologie de type Lewy associée à la maladie de Parkinson. Par conséquent, il n'est pas bien adapté à l'évaluation des traitements ciblant l'α-synucléine pathologique.
Où va la toxine ?
Le 6-OHDA ne pouvant franchir la barrière hémato-encéphalique (BHE), il est injecté par stéréotaxie dans le faisceau médial du cerveau antérieur (MFB), la substance noire (SN) ou le striatum. Le site choisi détermine la rapidité et l'ampleur de la perte dopaminergique.
Ce qu'il produit
Une perte, proportionnelle à la dose, de neurones dopaminergiques de la substance noire et de leurs terminaisons striatales, des déficits moteurs, plusieurs symptômes non moteurs, ainsi qu’une activation astrocytaire et microgliale qui persiste pendant plusieurs semaines.
Ce qu'il ne produit pas
Ce modèle ne reproduit pas l'agrégation caractéristique de l'α-synucléine ni la pathologie de type Lewy associée à la maladie de Parkinson. Par conséquent, il n'est pas bien adapté à l'évaluation des traitements ciblant l'α-synucléine pathologique.
Les souris 6-OHDA sont des animaux ayant reçu une injection stéréotaxique de 6-hydroxydopamine, une neurotoxine catécholaminergique, afin de détruire les neurones dopaminergiques nigrostriataux, tandis que les souris AAV-α-synucléine reçoivent un vecteur viral adéno-associé (AAV) qui entraîne la surexpression de l’α-synucléine humaine dans ces neurones, ce qui peut conduire à leur dégénérescence. En d’autres termes, la 6-OHDA provoque une neurodégénérescence dopaminergique par le biais du stress oxydatif, tandis que la surexpression de l’α-synucléine médiée par l’AAV induit une pathologie associée à l’α-synucléine. Cette différence détermine les questions thérapeutiques auxquelles chaque modèle peut apporter une réponse.
La lésion induite par le 6-OHDA
Le 6-OHDA ne traverse pas la barrière hémato-encéphalique (BHE) ; il est donc administré par voie stéréotaxique dans le faisceau médial du cerveau antérieur (MFB), la substance noire (SN) ou le striatum. Une fois à l’intérieur des terminaisons catécholaminergiques, il entraîne une accumulation de dopamine dans le cytosol et une auto-oxydation, ce qui provoque un stress oxydatif et la mort neuronale. Une synthèse récente propose que le transporteur vésiculaire de monoamines 2 (VMAT2) soit un maillon commun de cette cascade, bien que cela soit présenté comme une hypothèse unificatrice plutôt que comme un mécanisme validé expérimentalement (Zhu, 2025).
La lésion est classée en fonction de la dose : chez la souris, une injection unilatérale dans le faisceau médian du cerveau antérieur à des doses de 0,5, 1 et 2 µg a entraîné une perte de cellules TH⁺ de la substance noire et une perte de fibres striatales dépendantes de la dose, ainsi qu’une activation astrocytaire et microgliale persistante à sept semaines (Cui, 2024). Une lésion intrastriatale chez des souris mâles permet de reproduire des déficits moteurs, des troubles cognitifs et des dysfonctionnements gastro-intestinaux dans le cadre d’un protocole de quatre semaines. Cependant, aucun dysfonctionnement olfactif ni comportement de type anxieux n’ont été reproduits, et la perturbation des catécholamines s’est étendue au-delà de la voie nigrostriatale pour toucher les systèmes mésocorticaux et mésolimbiques (Braun, 2025).
Ce que la lésion ne provoque pas, c’est une pathologie de type Lewy. Une revue systématique PRISMA de la littérature sur la 6-OHDA a révélé que ce modèle ne reproduit pas la pathologie de l’α-synucléine et des corps de Lewy caractéristique de la maladie de Parkinson, bien qu’il provoque une dégénérescence effective de la voie dopaminergique nigrostriatale (Prates-Rodrigues, 2025). La littérature mécanistique traite l’α-synucléine uniquement comme un modulateur en amont hypothétique de ce même nœud oxydatif, et non comme un produit de la lésion (Zhu, 2025).
Le modèle AAV-α-synucléine
L’administration d’α-synucléine humaine par AAV dans la substance noire entraîne une lésion progressive pouvant débuter par des modifications au niveau des terminaisons axonales. Chez le rat, des troubles moteurs sont apparus quatre et six semaines après l’injection d’AAV-A53T et étaient corrélés à la perte de terminaisons striatales plutôt qu’au nombre de cellules de la substance noire, ce qui suggère que le phénotype comportemental est étroitement associé à la dénervation de la zone cible (Musacchio, 2022).
La gravité dépend du titre, avec des seuils distincts : un titre intermédiaire d’AAV1/2-A53T a entraîné une asymétrie dans l’utilisation des pattes et une réduction de la TH striatale à trois semaines, évoluant vers une perte de cellules de la substance noire et une déplétion en dopamine à six semaines. Une préparation plus diluée a entraîné des déficits qui se sont compensés entre trois et six semaines, tandis qu’un titre excessif a provoqué une toxicité non spécifique également observée chez les animaux témoins GFP (Koprich, 2011). Une surabondance d’α-synucléine peut également altérer la libération de dopamine au-delà de ce que l’on pourrait attendre de la seule perte cellulaire. Chez des rats surexprimant l’α-synucléine humaine de type sauvage, les réductions de la libération de dopamine striatale ont dépassé la perte de neurones dopaminergiques, de fibres axonales et de dopamine totale, et se sont accompagnées d’une diminution de la densité vésiculaire et d’un nombre réduit de contacts synaptiques (Gaugler, 2012).
Le protocole de Biospective consiste en une injection unilatérale d’AAV-human-A53T-α-synucléine dans la substance noire de souris C57BL/6 âgées de 12 semaines, l’hémisphère controlatéral et un groupe témoin servant de référence. L’intervention est réalisée par notre service de chirurgie stéréotaxique. Des déficits moteurs marqués apparaissent dès la 5e semaine lors du test du cylindre, du test du rotarod et du test de balancement en suspension par la queue. Ces modifications s’accompagnent d’une diminution des neurones TH⁺ de la substance noire, d’une perte quasi totale des terminaisons TH⁺ striatales ipsilatérales, d’une baisse de la dopamine striatale, d’une pathologie liée à l’α-synucléine pSer129, d’une activation microgliale et astrocytaire, d’une atrophie mise en évidence par IRM 7T, ainsi que d’une élévation du neurofilament léger (NfL) dans le LCR. Ensemble, ces résultats fournissent un éventail de paramètres comportementaux, histologiques, d’imagerie et de biomarqueurs liquidiens permettant d’évaluer les effets thérapeutiques dans ce modèle. Tous les détails sont disponibles sur notre page consacrée aux modèles AAV de la synucléine, aux côtés de nos autres modèles murins de la maladie de Parkinson.
Adaptez le modèle à votre mécanisme
Un composé symptomatique nécessite une fonction nigrostriatale. Un composé ciblant l'α-synucléine nécessite un modèle présentant une pathologie liée à l'α-synucléine pertinente et des paramètres pharmacodynamiques. Découvrez ce que mesure le modèle AAV-A53T et déterminez quelle voie suit votre programme.
Adaptez le modèle à votre mécanisme
Un composé symptomatique nécessite une fonction nigrostriatale. Un composé ciblant l'α-synucléine nécessite un modèle présentant une pathologie liée à l'α-synucléine pertinente et des paramètres pharmacodynamiques. Découvrez ce que mesure le modèle AAV-A53T et déterminez quelle voie suit votre programme.
Tableau 1. Comparaison entre les souris 6-OHDA et les souris AAV-A53T-α-synucléine sur les caractéristiques pertinentes pour le développement préclinique de médicaments.
Remarque : la mention « Non reproduit » découle des conclusions d’une revue systématique selon lesquelles le modèle 6-OHDA ne reproduit pas la pathologie de l’α-synucléine et des corps de Lewy ; la mention « Aucune donnée disponible » en découle également, plutôt que d’un résultat négatif formel. Les lignes comparant la perte cellulaire et la pathologie axonale entre les modèles proviennent d’une comparaison réalisée au sein d’un même laboratoire chez le rat, et s’appliquent à la souris à titre de principe plutôt que de mesure. Les lignes décrivant le modèle murin de Biospective sont issues de données internes.
Sources : Braun, 2025; Cui, 2024; Decressac, 2012; Gaugler, 2012; Koprich, 2011; Musacchio, 2022; Prates-Rodrigues, 2025; Zhu, 2025.
Voies d'induction. Les deux voies d'induction aboutissent à une perte dopaminergique nigrostriatale et à des déficits moteurs, mais seule la voie AAV-A53T passe par la pathologie de l'α-synucléine pSer129.
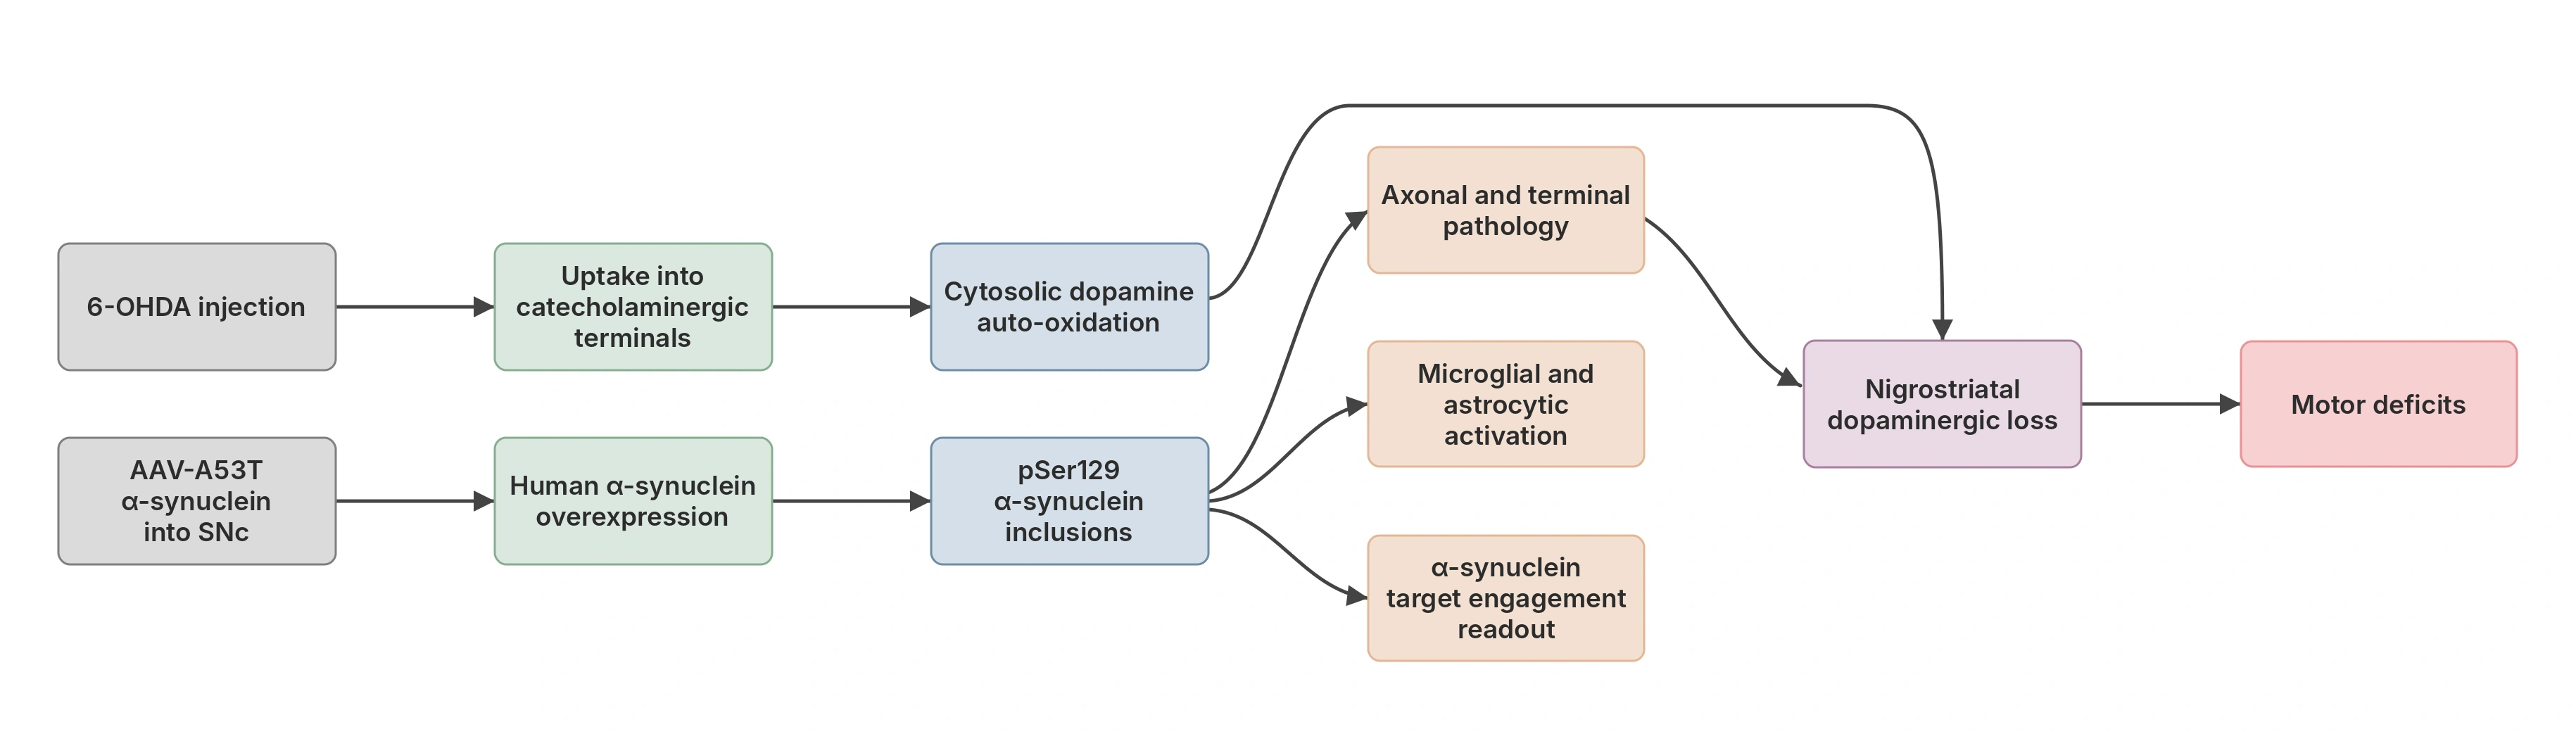
Illustration schématique des deux voies d'induction. Toutes deux aboutissent à une perte dopaminergique nigrostriatale et à des déficits moteurs, mais seule la voie de l'α-synucléine AAV-A53T passe par des inclusions pSer129, qui sont associées à une activation gliale et permettent d'évaluer la fixation à la cible.
En quoi ces deux modèles diffèrent-ils en termes de pathologie de l'α-synucléine et d'interaction avec la cible ?
Les deux modèles présentent ici des différences substantielles : les souris AAV-α-synucléine expriment l’α-synucléine humaine et peuvent développer des formes protéiques pathologiques associées, tandis que les souris 6-OHDA ne reproduisent pas la pathologie caractéristique de l’α-synucléine observée dans la maladie de Parkinson (MP). Pour un programme axé sur les symptômes, cette distinction peut s’avérer moins pertinente. En revanche, pour un programme visant à modifier le cours de la maladie, elle peut déterminer si le modèle fournit un indicateur approprié pour évaluer l’engagement de la cible.
En quoi consiste la pathologie humaine ?
La phosphorylation au niveau de la sérine 129 est la modification pathologique dominante de l’α-synucléine dans la maladie à corps de Lewy chez l’homme. La spectrométrie de masse des lésions synucléinopathiques a montré que la Ser129 est phosphorylée de manière sélective et étendue dans la maladie de Parkinson, la démence à corps de Lewy et l’atrophie multisystématisée (AMS), et que la phosphorylation de la Ser129 est associée à la formation de fibrilles (Fujiwara, 2002). Un inventaire impartial des formes d’α-synucléine présentes dans les corps de Lewy a confirmé que la phosphorylation au niveau de la Ser-129 est la modification prédominante, avec le même profil dans la maladie de Parkinson familiale de type SNCA A53T et dans l’atrophie multisystématisée (AMS), ce qui suggère l’existence d’une voie commune aux formes génétiques et sporadiques de la maladie (Anderson, 2006).
Le modèle AAV-A53T reproduit la pathologie de l’α-synucléine pSer129 dans la substance noire, alors que la lésion induite par le 6-OHDA ne reproduit pas cette caractéristique pathologique.
Pourquoi le ciblage de la cible est déterminant pour le modèle
Chaque modalité active ciblant l’α-synucléine est évaluée à l’aide de mesures pharmacodynamiques liées à sa cible α-synucléine, plutôt qu’à la seule survie dopaminergique. Une étude par région cérébrale d’un oligonucléotide antisens (ASO) dirigé contre le 3′ de SNCA humainUTR a mesuré l’ARNm du gène SNCA humain ainsi que la protéine α-synucléine soluble et insoluble dans les détergents comme critères d’évaluation pharmacodynamiques principaux, et a mis en évidence une suppression graduelle selon les régions, la plus forte étant observée dans le bulbe olfactif et le striatum à un stade précédant la déplétion manifeste de la dopamine (Naki, 2026). Ces mesures illustrent les types de paramètres liés à la cible pouvant être utilisés dans un modèle de l’α-synucléine. Une lésion induite par la 6-OHDA, qui ne reproduit pas la pathologie de l’α-synucléine humaine ni n’exprime un transgène SNCA humain, n’est pas adaptée à l’évaluation de ces critères d’évaluation pharmacodynamiques spécifiques. Elle permet de mettre en évidence une neuroprotection, mais ne permet pas de déterminer, à l’aide de ces mesures, si un médicament ciblant l’α-synucléine a atteint sa cible visée.
Les données cliniques soulignent clairement l’importance de cette distinction. Dans l’essai de phase II PASADENA, 316 participants atteints d’une maladie de Parkinson à un stade précoce ont reçu 1 500 mg ou 4 500 mg de prasinezumab, ou un placebo, pendant 52 semaines ; le critère d’évaluation principal MDS-UPDRS n’a pas été atteint, avec des différences par rapport au placebo de −2,0 (IC à 80 % : −4,2 à 0,2 ; P = 0,24) et −0,6 (IC à 80 % : −2,8 à 1,6 ; P = 0,72), et aucune différence significative n’a été observée sur le DaT-SPECT (Pagano, 2022). L’étude PADOVA de phase 2b, plus vaste, menée auprès de 586 participants, n’a pas non plus atteint son critère d’évaluation principal, avec un rapport de risque de 0,84 (IC à 95 % : 0,69–1,01 ; p = 0,066) pour le délai avant progression motrice confirmée et une médiane de 61,1 contre 49,7 semaines (Nikolcheva, 2026). En l’absence d’une mesure pharmacodynamique appropriée de l’engagement de la cible, il peut être difficile de distinguer une cible thérapeutique inefficace d’une exposition insuffisante au médicament ou d’un engagement insuffisant de la cible. Il est important d’établir cette distinction dès la phase de développement préclinique, en utilisant un modèle et des paramètres de mesure adaptés à la cible thérapeutique.
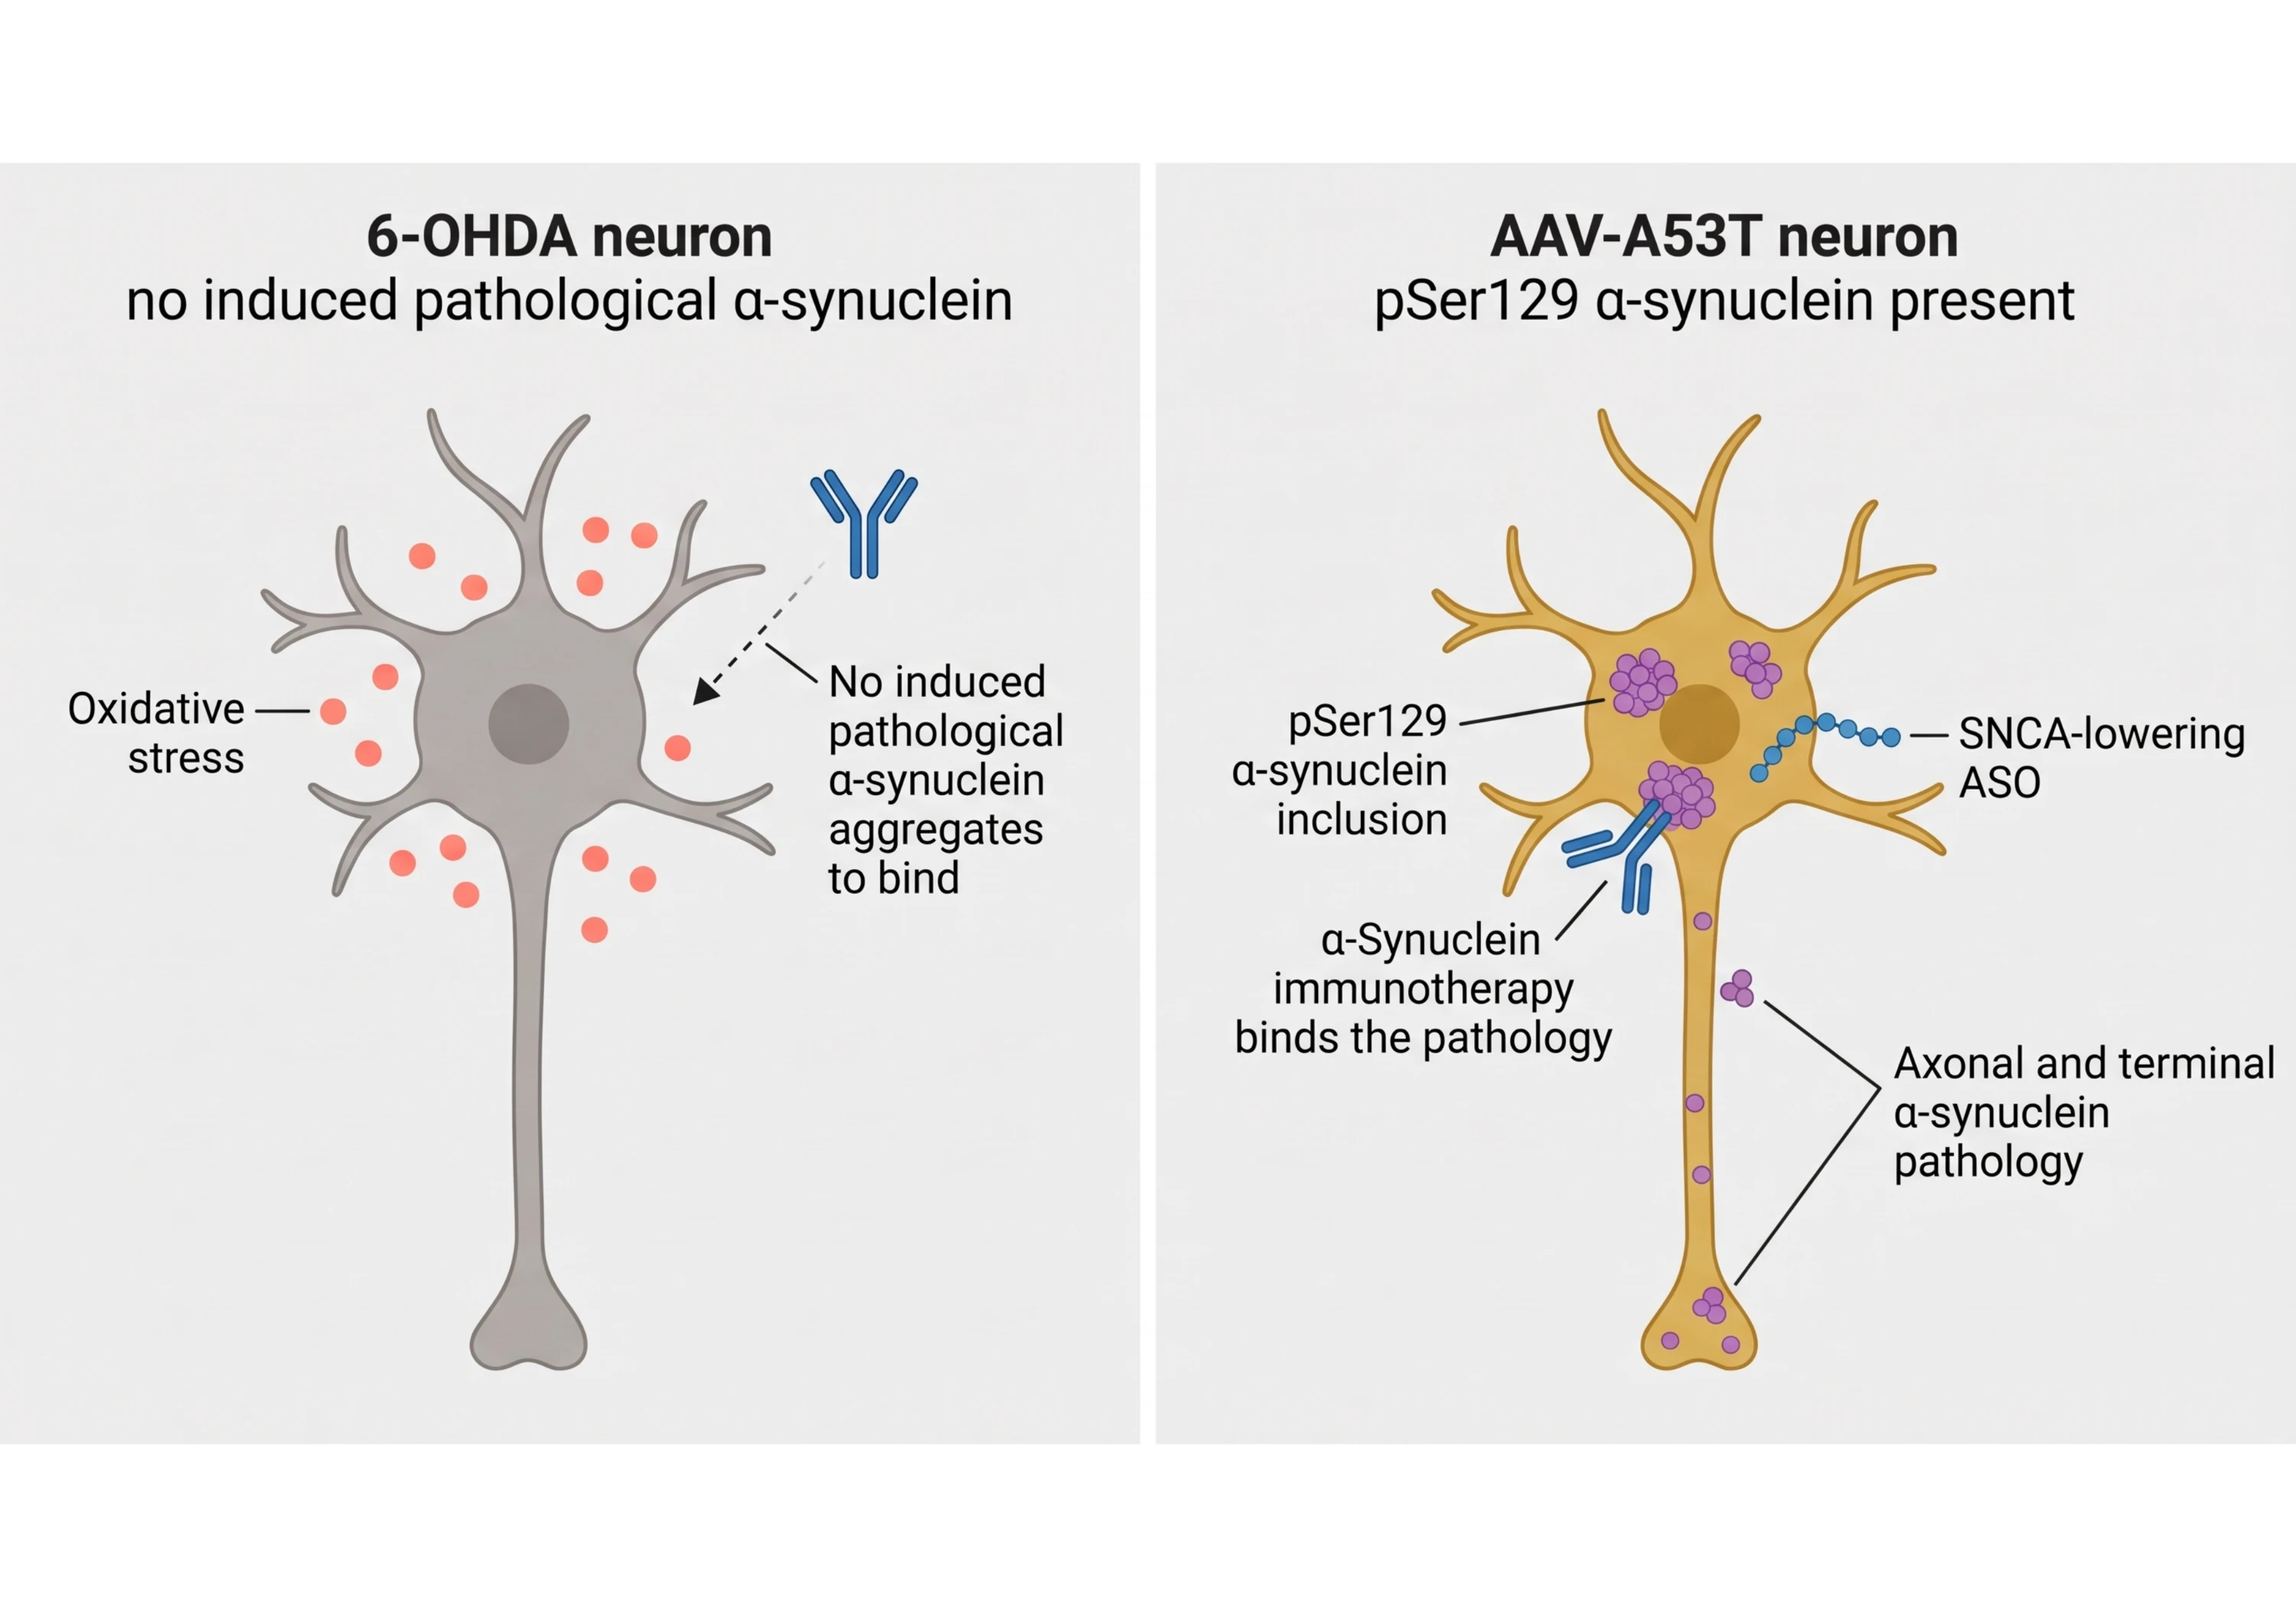
Interaction avec la cible. La même comparaison au niveau d’un seul neurone nigral : un neurone traité à la 6-OHDA ne présente pas la pathologie de l’α-synucléine humaine induite expérimentalement nécessaire à l’évaluation directe de l’engagement de la cible, tandis qu’un neurone AAV-A53T exprime l’α-synucléine pSer129 dans le soma, l’axone et les terminaisons.
Limites de transposition des modèles basés sur les toxines
Deux revues soulignent les limites de la transposition des résultats précliniques en matière de neuroprotection vers des traitements cliniques modificateurs de la maladie. Une revue narrative portant sur deux décennies d’essais cliniques visant à modifier l’évolution de la maladie met en contraste le succès historique de la transposition des travaux précliniques en traitements symptomatiques avec une succession d’échecs pour les interventions visant à modifier l’évolution de la maladie qui avaient pourtant donné de bons résultats dans les modèles précliniques (Mari, 2022). Une revue des essais sur la neuroprotection attribue cet échec principalement à une compréhension incomplète de la pathogenèse de la maladie de Parkinson et à un recours excessif aux données issues de modèles animaux basés sur des toxines lors de la sélection des agents pour les essais cliniques, situation aggravée par l’absence de biomarqueurs de progression validés (Athauda, 2014).
Rien de tout cela ne fait du 6-OHDA un mauvais modèle. Cela souligne plutôt que le 6-OHDA n’est pas le modèle approprié pour tous les programmes thérapeutiques visant à modifier le cours de la maladie, en particulier ceux ciblant la pathologie de l’α-synucléine.
En quoi ces deux modèles diffèrent-ils en termes de progression, de variabilité et de reproductibilité ?
Le modèle 6-OHDA entraîne une lésion plus rapide et plus brutale ; la lésion induite par l’AAV-α-synucléine est généralement plus lente, peut débuter par des modifications au niveau des terminaisons axonales et dépend du titre du vecteur. Les deux sont contrôlables, mais elles sont régies par des facteurs différents, et les profils de variabilité publiés divergent.
Vitesse et forme de la lésion
La vitesse de développement d’une lésion induite par le 6-OHDA dépend du site d’administration de la toxine. Une injection dans le faisceau médial du cerveau antérieur (MFB) entraîne rapidement une destruction dopaminergique quasi totale, tandis qu’une injection intrastriatale affecte d’abord principalement les terminaisons, suivie d’une dégénérescence des corps cellulaires nigraux au cours des semaines suivantes. C’est pourquoi les protocoles intrastriataux sont souvent utilisés pour modéliser un schéma plus progressif de dégénérescence dopaminergique. Dans les deux cas, l’agression est administrée en une seule fois, lors de l’intervention chirurgicale, et n’est plus en cours au moment où la plupart des tests comportementaux commencent.
La pathologie induite par l’AAV-α-synucléine se développe en revanche sur plusieurs semaines : une asymétrie dans l’utilisation des pattes et une diminution de la TH striatale apparaissent vers trois semaines à un titre intermédiaire, puis évoluent vers une perte de cellules nigrales et une déplétion dopaminergique à six semaines (Koprich, 2011), les troubles moteurs observés à quatre et six semaines correspondant davantage à la perte des terminaisons striatales qu’au nombre de cellules nigrales (Musacchio, 2022). Une étude longitudinale chez le rat a mis en évidence une pathologie nigrostriatale et des déficits comportementaux dans les quatre semaines suivant l’administration de l’α-synucléine par rAAV2/7, le phénotype étant réversible par la L-DOPA et pouvant être suivi de manière non invasive par TEP et spectroscopie par résonance magnétique (Van der Perren, 2015).
Une pathologie progressive peut offrir une fenêtre thérapeutique, permettant d’administrer un composé avant ou pendant la dégénérescence plutôt qu’après seulement.
La charge lésionnelle associée à un déficit donné
C’est là que la seule comparaison directe en tête-à-tête s’avère instructive. En comparant des rats AAV-α-synucléine à des rats présentant à la fois des lésions intrastriatales partielles et des lésions complètes du faisceau médian du cerveau antérieur induites par la 6-OHDA dans le même laboratoire, avec un suivi comportemental longitudinal et une histologie appariée, les auteurs ont constaté des différences dans la relation entre les troubles moteurs et la dégénérescence dopaminergique selon les modèles : les animaux α-synucléine présentaient une perte cellulaire et terminale moindre pour un niveau équivalent d’anomalie motrice, et une pathologie axonale persistante marquée n’est apparue que dans le modèle α-synucléine. Les auteurs ont conclu que le modèle à α-synucléine reproduisait plus fidèlement certains aspects de la pathologie humaine que l’une ou l’autre des lésions toxiques (Decressac, 2012). Cela constitue une comparaison utile, bien que ces résultats aient été obtenus chez le rat.
D’où provient la variabilité de chaque modèle ?
La variabilité du modèle 6-OHDA est en grande partie d’ordre procédural. Les auteurs qui ont caractérisé le modèle intrastriatal chez la souris notent qu’il n’est pas bien caractérisé, avec des dosages, des sites d’injection et des durations variables d’une étude à l’autre (Braun, 2025). La dose ne garantit pas non plus une plage dynamique illimitée : dans les lésions du faisceau médian du cerveau antérieur chez la souris, 2 µg ont entraîné une perte neuronale plus importante que 1 µg, mais sans aggravation supplémentaire des troubles comportementaux ; ainsi, les mesures comportementales ont atteint un plafond avant les mesures histologiques (Cui, 2024).
La variabilité des AAV est principalement liée au titre et au contrôle des vecteurs. Une préparation trop diluée entraîne des déficits qui se compensent d’eux-mêmes entre trois et six semaines ; une préparation trop concentrée provoque une toxicité non spécifique visible même chez les animaux témoins exprimant la GFP (Koprich, 2011). Les études de Biospective sur l’AAV-A53T permettent de rendre compte de la TH parallèlement à la dopamine striatale, à la charge en pSer129, à la morphométrie gliale, à l’IRM structurelle et au neurofilament léger (NfL) dans le LCR ; ainsi, aucune conclusion ne repose sur un seul marqueur. Le titre est une variable de conception plutôt qu’un paramètre fixe : nous avons observé que les déficits au test du cylindre et au test de suspension par la queue variaient selon des titres faibles, modérés et élevés, ce qui peut aider à orienter une étude vers des approches de prévention ou de rattrapage.
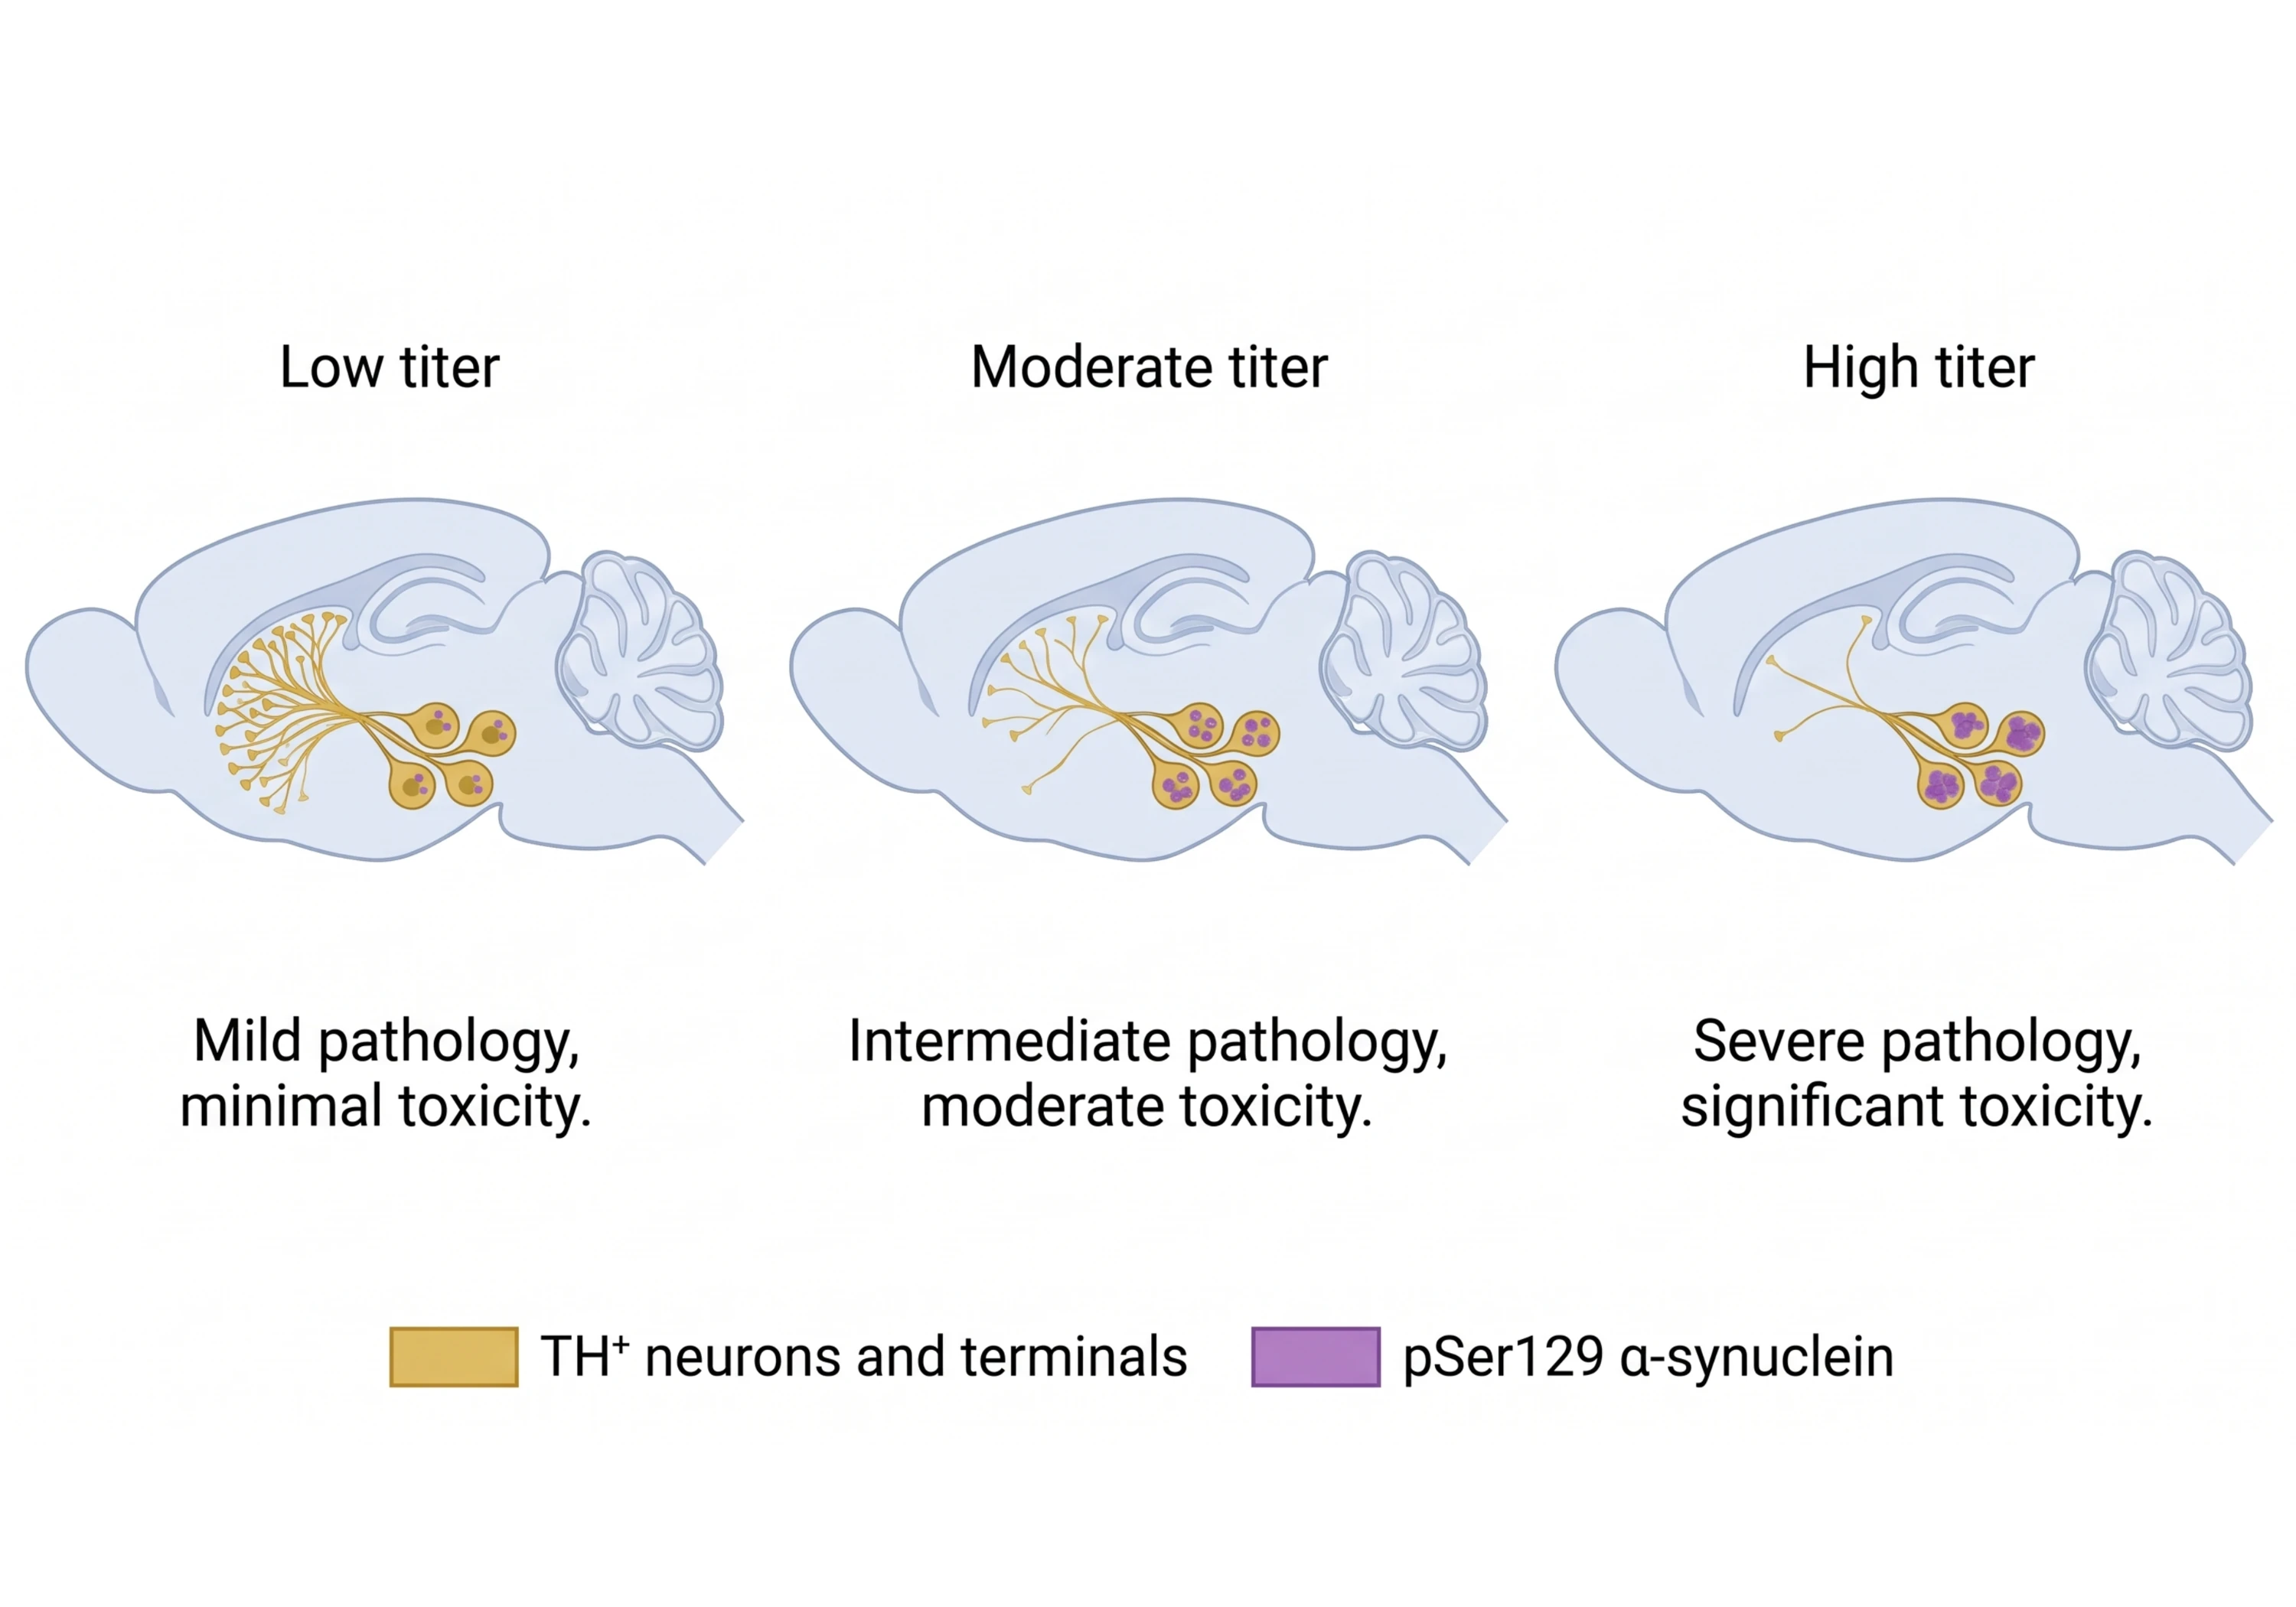
Évaluation du titre. Le titrede l'AAV influe sur la gravité des lésions. Les déficits peuvent se compenser spontanément à un titre faible et atteindre un seuil comportemental minimal à un titre élevé ; un titre intermédiaire donne lieu à l'effet le plus important.
Ce que cela implique pour le choix d'un modèle préclinique de la maladie de Parkinson
Aucun des deux modèles n’est intrinsèquement plus reproductible ; ce sont plutôt leurs principales sources de variabilité qui diffèrent. Un modèle préclinique de la maladie de Parkinson basé sur le 6-OHDA est reproductible dans la mesure où la cible, la dose et la vérification des lésions sont standardisées, tandis qu’un modèle basé sur l’AAV-α-synucléine est reproductible dans la mesure où le titre et les contrôles vectoriels sont fixes et où les critères d’évaluation sont interprétés conjointement.
En quoi le choix du modèle influe-t-il sur la durée des études et la taille des cohortes ?
Le choix du modèle modifie trois éléments dans un protocole d'étude : le délai d'obtention des résultats, le nombre de critères d'évaluation qu'un animal peut fournir, et la part de variance que le chercheur est en mesure de contrôler.
Délai d'obtention des résultats
Les deux modèles fournissent des résultats moteurs dans les semaines qui suivent l’intervention chirurgicale. Dans le modèle murin AAV-A53T de Biospective, des déficits marqués sont observés dès la 5e semaine lors du test du cylindre, du test du rotarod et du test de balancement en suspension par la queue. Dans la pratique, cela permet de commencer l’administration peu après l’injection, le prélèvement final étant programmé une fois le phénotype établi. Les protocoles publiés utilisant le 6-OHDA peuvent être plus courts — le protocole intrastriatal chez la souris s’étend sur quatre semaines (Braun, 2025) — ; ainsi, si la rapidité était le seul critère, le 6-OHDA présenterait un avantage.
La rapidité est rarement le seul critère. La comparaison pertinente porte sur le délai nécessaire pour obtenir un résultat sur lequel le programme peut s’appuyer, et un modèle qui ne reproduit pas la pathologie de l’α-synucléine ne peut pas fournir de résultats basés sur cette pathologie pour un composé ciblant l’α-synucléine, quelle que soit la rapidité avec laquelle la lésion se développe.
Qu’est-ce qui détermine la taille de la cohorte ?
La taille de la cohorte dépend de l’ampleur de l’effet et de la variance résiduelle, et aucune étude publiée ne quantifie en quoi la variabilité des lésions diffère entre les souris 6-OHDA et les souris AAV-α-synucléine pour des critères d’évaluation appariés. Ce que la littérature établit, en revanche, c’est l’origine de cette variance. Une revue systématique PRISMA portant sur 135 études menées sur des rongeurs traités au 6-OHDA a mis en évidence une variabilité significative concernant la cible cérébrale, la dose de toxine, la stratégie de vérification des lésions et la présentation des résultats d’évaluation comportementale, et a identifié cette hétérogénéité comme un obstacle direct à la reproductibilité et à la comparabilité entre les études, appelant à une standardisation et à une évaluation cohérente de l’étendue des lésions (Prates-Rodrigues, 2025). La standardisation de ces facteurs au sein d’une étude peut contribuer à réduire la variabilité procédurale, quel que soit le modèle choisi.
Trois choix de conception peuvent influencer la conception de l’étude et la taille de la cohorte, et tous trois sont disponibles dans le modèle AAV :
Grades de gravité. Le titre détermine la profondeur de la lésion, avec comme limites la compensation à l’extrémité inférieure et la toxicité non spécifique à l’extrémité supérieure (Koprich, 2011) ; une étude peut être positionnée là où l’ampleur de l’effet devrait être utile plutôt que simplement là où la lésion est la plus profonde.
Plusieurs classes de critères d’évaluation chez un même animal. Le comportement, l’IRM in vivo, l’histologie et les biomarqueurs du LCR fournissent des mesures complémentaires des effets du traitement ; ainsi, un seul résultat négatif ne détermine pas nécessairement l’issue de l’étude dans son ensemble.
Un comparateur intra-animal. Une lésion unilatérale permet d’utiliser l’hémisphère controlatéral comme référence interne pour les mesures histologiques et volumétriques.
Définir le champ d'application de votre étude d'efficacité sur la maladie de Parkinson
Comportement, imagerie in vivo, histologie et biomarqueurs liquidiens issus d'une seule cohorte : toute allégation de modification de l'évolution de la maladie repose donc sur des mesures concordantes. Indiquez-nous votre modalité thérapeutique, votre cible et votre calendrier, et nous concevrons notre approche en fonction de ces éléments.
Définir le champ d'application de votre étude d'efficacité sur la maladie de Parkinson
Comportement, imagerie in vivo, histologie et biomarqueurs liquidiens issus d'une seule cohorte : toute allégation de modification de l'évolution de la maladie repose donc sur des mesures concordantes. Indiquez-nous votre modalité thérapeutique, votre cible et votre calendrier, et nous concevrons notre approche en fonction de ces éléments.
Une mise en garde concernant le contrôle controlatéral
Le contrôle interne est utile, mais il n’est pas parfaitement neutre. Une morphométrie voxel par voxel de l’ensemble du cerveau, réalisée après une lésion unilatérale induite par la 6-OHDA chez le rat, a mis en évidence des modifications du volume de matière grise des deux côtés, plus marquées dans l’hémisphère lésé, mais également présentes du côté controlatéral (Westphal, 2016). C’est pourquoi les différences ipsilatérales-contralatérales doivent être interprétées en parallèle avec un groupe témoin distinct, plutôt que d’utiliser l’hémisphère controlatéral comme seul témoin.
Comment l’imagerie in vivo facilite l’évaluation longitudinale
L’imagerie longitudinale permet de suivre les changements au fil du temps chez un même animal, ce qui rend possible la comparaison de mesures précliniques et cliniques recueillies sur des échelles de temps très différentes. La spectroscopie TEP et IRM non invasive a permis de suivre la neurodégénérescence chez des rats porteurs de l’AAV-α-synucléine sur une période reproductible de quatre semaines (Van der Perren, 2015). Chez l’homme, ces processus s’étendent sur plusieurs années : une méta-analyse de 39 études portant sur 1 983 patients a mis en évidence une association entre les mesures IRM sensibles à la neuromélanine et les troubles moteurs (r combiné = −0,406), la durée de la maladie (r = −0,426) et le stade de Hoehn et Yahr (r = −0,336), tous avec P < 0,001, seules quatre études longitudinales faisant état de baisses annuelles d’environ 5 % à 19 % (Akande, 2026).
L’imagerie par résonance magnétique (IRM) à 7 T de Biospective montre une atrophie de la substance noire et du noyau caudé-putamen qui est proportionnelle au titre d’AAV et correspond à la perte de neurones TH⁺ et de leurs terminaisons. Bien que ces mesures IRM structurelles précliniques ne soient pas équivalentes aux mesures IRM sensibles à la neuromélanine utilisées en clinique, les deux fournissent des informations longitudinales sur les modifications des régions cérébrales concernées. Cette stratégie permet d’évaluer les changements liés au traitement dans le cadre d’une étude préclinique sur plusieurs semaines, parallèlement aux résultats d’imagerie clinique recueillis sur plusieurs années.
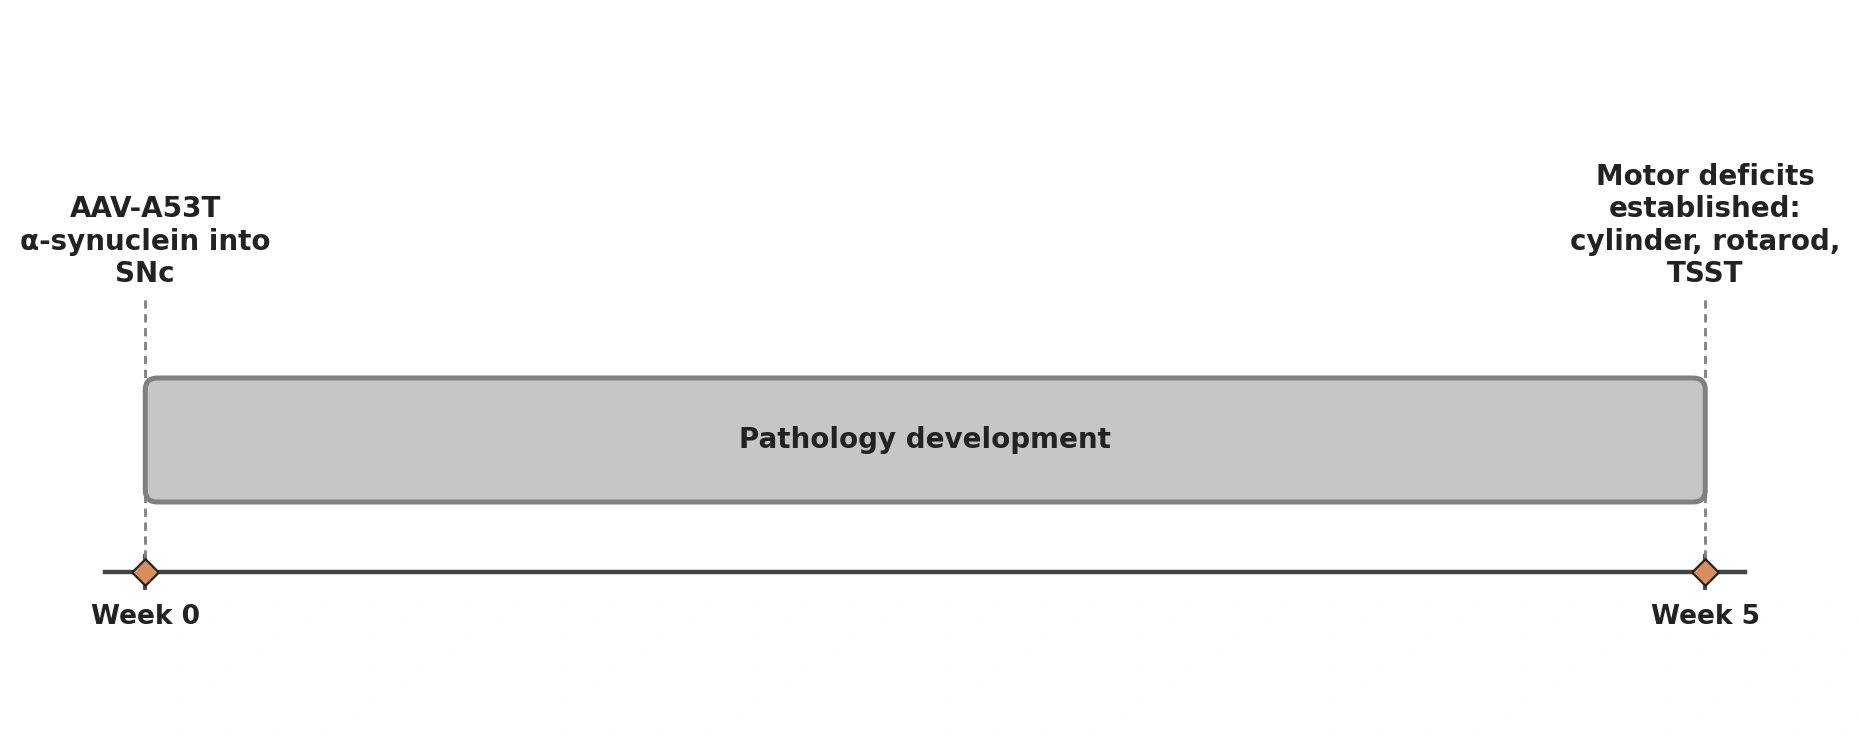
Illustration schématique de la fenêtre temporelle d'évaluation in vivo dans le modèle murin AAV-A53T α-synucléine de Biospective : injection unilatérale dans la substance noire à la semaine 0, apparition de lésions pathologiques au cours des semaines suivantes et apparition de déficits moteurs mis en évidence par le test du cylindre, le test du rotarod et le test de suspension par la queue dès la semaine 5.
Quels paramètres Biospective peut-il mesurer dans le modèle AAV-A53T-α-synucléine ?
Biospective exécute le modèle de bout en bout et en extrait quatre catégories de critères d'évaluation provenant des mêmes souris : le comportement, l'imagerie in vivo , l'analyse tissulaire et la biochimie des fluides. L'intérêt de les analyser conjointement réside dans le fait que les effets du traitement peuvent être évalués à l'aide de mesures complémentaires, plutôt que de se fonder sur un seul critère d'évaluation.
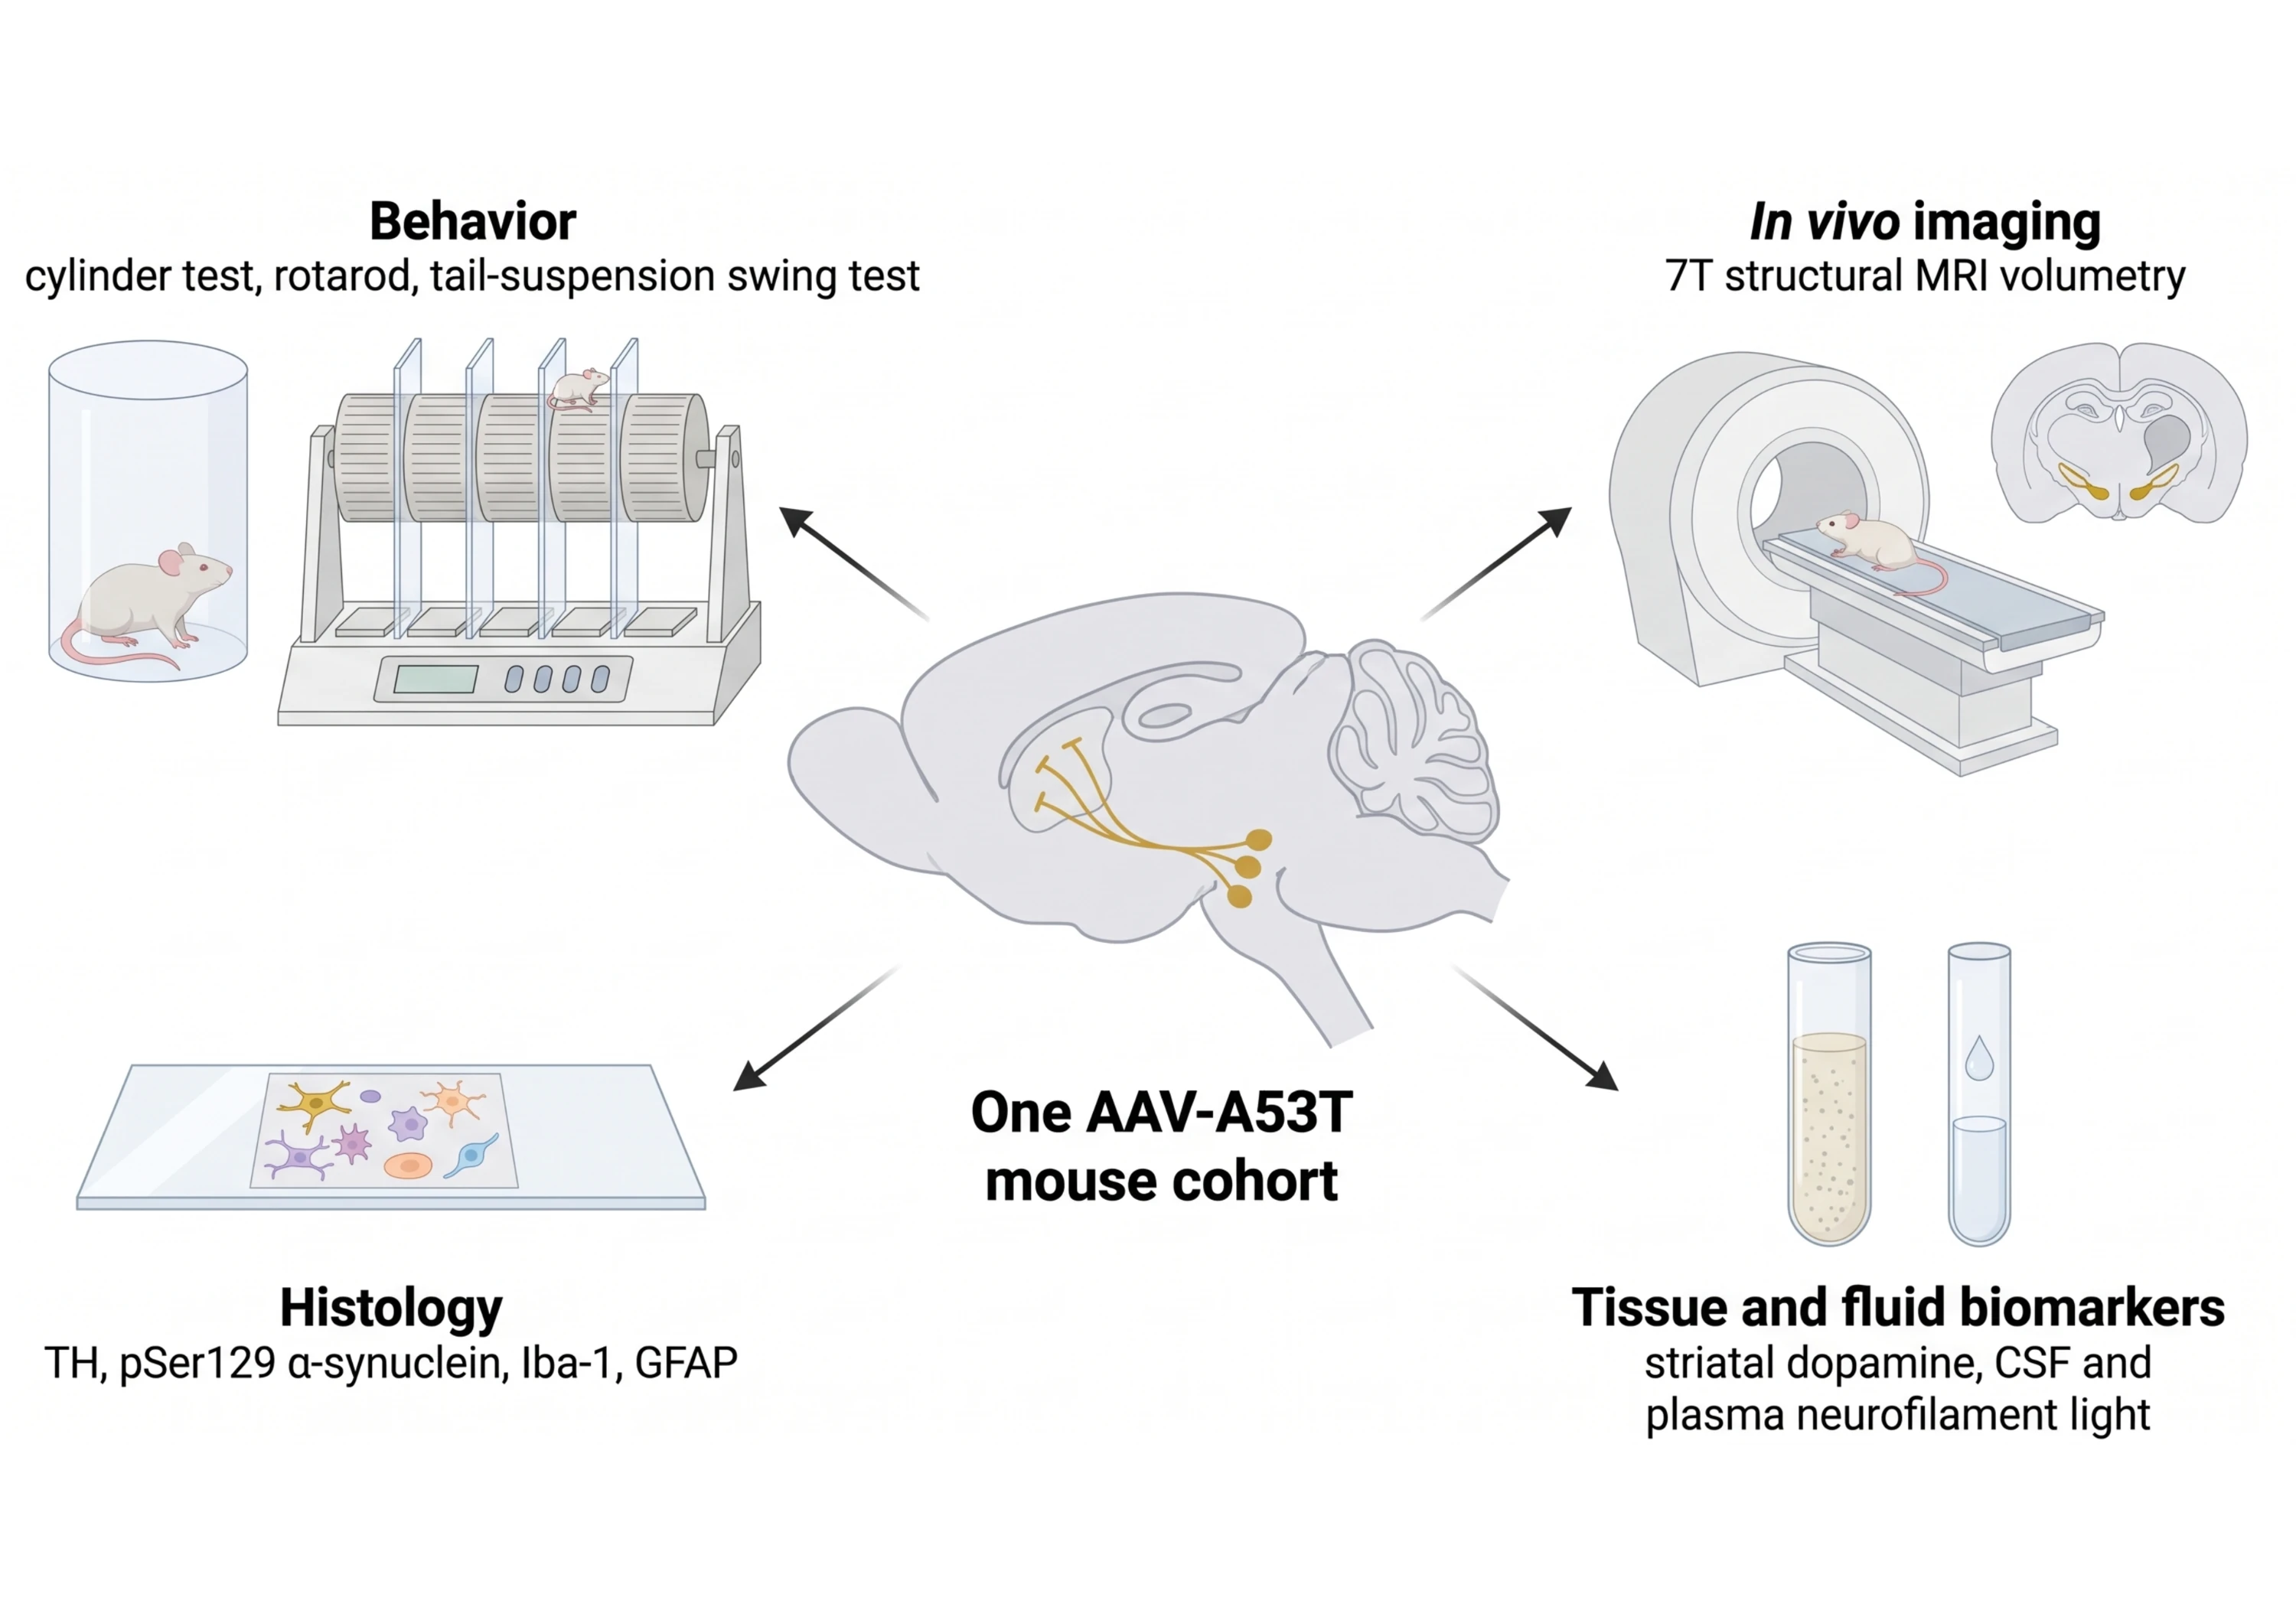
Critères d'évaluation. Le comportement , l'IRM à 7T, l'histologie multiplexe et les biomarqueurs tissulaires/liquides ont été évalués chez les mêmes souris AAV-A53T ; par conséquent, toute allégation relative à un effet modificateur de la maladie repose sur des mesures concordantes.
Comportement
Les fonctions motrices sont évaluées à l’aide du test du cylindre pour l’asymétrie des membres antérieurs, du rotarod pour la coordination motrice et du test de balancement en suspension par la queue pour le biais directionnel, dans le cadre de nos tests des fonctions motrices et sensorielles. Dans notre étude, ces trois tests permettent de distinguer les animaux atteints d’AAV-Syn des animaux témoins dès les semaines 5 à 6, et les déficits observés lors des tests de préhension, du cylindre et de balancement varient en fonction des titres d’AAV (faibles, modérés et élevés). Étant donné que le phénotype moteur de ce modèle reflète la perte des terminaisons striatales plutôt que le nombre de cellules nigrales (Musacchio, 2022), le comportement est interprété comme un indicateur fonctionnel associé à la dénervation nigrostriatale et présenté en complément de l’analyse anatomique, et non en remplacement de celle-ci.
Imageriein vivo
L’IRM structurelle à 7 T mesure le volume de la substance noire et du noyau caudé-putamen, qui, dans nos données, est proportionnel au titre d’AAV et correspond à la perte de neurones TH⁺ et de terminaisons. L’imagerie confère également une dimension longitudinale à l’étude : chaque animal constitue sa propre référence, ce qui permet de suivre les changements structurels au fil du temps. Dans le domaine clinique, l’IRM sensible à la neuromélanine mesure les modifications de la substance noire, avec des baisses annuelles rapportées d’environ 5 % à 19 % (Akande, 2026).
Analyse tissulaire
L’immunofluorescence multiplexe avec quantification automatisée porte sur les neurones TH⁺ et leurs terminaisons, la charge en α-synucléine pSer129, les noyaux dopaminergiques et la morphologie gliale. Les réponses microgliales et astrocytaires sont quantifiées en fonction de la morphologie, plutôt que de la seule densité de coloration : la densité d’Iba-1⁺ et le nombre de microglies activées augmentent dans le mésencéphale, la SNc et la SNr, tandis que la densité de GFAP⁺ et le nombre d’astrocytes hypertrophiques augmentent dans le mésencéphale et la SNc, les microglies se regroupant là où se trouvent les agrégats de pSer129. Notre service d’histologie et d’analyse des microglies applique le même protocole à tous les modèles.
Les paramètres gliaux sont révélateurs. L’activation microgliale apparaît précocement dans les modèles viraux d’α-synucléine, parallèlement au déclin moteur plutôt que de le suivre nécessairement (Kefalakes, 2025), et il existe des preuves que la microglie peut contribuer à la pathologie associée à l’α-synucléine : dans un modèle murin combinant une surexpression de l’α-synucléine par AAV et la présence de fibrilles intranigrales, la suppression des lymphocytes T a réduit la pathologie liée à l’α-synucléine et l’activation microgliale, tandis que la déplétion des microglies a réduit l’accumulation de lymphocytes T et atténué la pathologie (Ohtake, 2026).
L’équivalent humain est mesurable : dans une cohorte de patients nouvellement diagnostiqués, la substance noire était la seule région où la liaison du ¹¹C-PK11195 était plus élevée chez les patients présentant des troubles cognitifs au bout de trois ans que chez les témoins, et la liaison nigrale initiale, associée au rapport entre les lymphocytes B mémoire dans le LCR et dans le sang, prédisait le déclin, les principaux marqueurs atteignant des AUC comprises entre 0,79 et 0,85 (Scott, 2025).
Liquides et biochimie
La dopamine striatale est quantifiée directement à partir d’homogénats cérébraux, et le LCR ainsi que le plasma sont prélevés pour la recherche de biomarqueurs liquides et cellulaires, notamment notre dosage de la chaîne légère des neurofilaments (NfL). D’après nos données, le taux de NfL dans le LCR est élevé chez les souris AAV-Syn.
Deux mises en garde s’imposent concernant ce chiffre. La NfL est un marqueur validé mais non spécifique : une méta-analyse en réseau bayésien portant sur 78 études et 13 120 participants a révélé que les taux de NfL dans le LCR et le sang étaient élevés dans la maladie de Parkinson par rapport aux témoins, mais encore plus élevés dans le parkinsonisme atypique, les taux de NfL dans le LCR de l’atrophie multisystématisée (MSA) dépassant celle de la maladie de Parkinson d’une différence moyenne standardisée (SMD) de 1,85 (CrI à 95 % : 1,55–2,15) ; les auteurs recommandent d’ailleurs la prudence dans l’utilisation de la NfL à des fins diagnostiques (Kou, 2025). Nous considérons donc la NfL comme un marqueur de lésion neuroaxonale susceptible de répondre au traitement, à interpréter conjointement avec l’histologie et d’autres critères d’évaluation, plutôt que comme un critère de résultat spécifique à la maladie ou autonome.
Interprétation des données
La pathologie dans ce modèle est spatiale, et les statistiques récapitulatives peuvent ne pas refléter l’intégralité des informations contenues dans le tissu. Nos images interactives vous permettent de faire un panoramique et de zoomer sur l’ensemble des coupes d’immunofluorescence multiplexées, ainsi que d’activer ou de désactiver les canaux pSer129, tyrosine hydroxylase, noyaux dopaminergiques, Iba-1, GFAP et DAPI, le tout accompagné d’un commentaire guidé sur les résultats. Des travaux connexes sur les réponses gliales à l’α-synucléine sont présentés dans notre ressource consacrée aux microglies, aux astrocytes et à l’α-synucléine dans la maladie de Parkinson, et notre page dédiée à l’innovation « microglies-synucléine » décrit la plateforme d’analyse qui la sous-tend.
Imageriein vivo
IRM structurelle à 7 T de la substance noire et du noyau caudé-putamen pour mesurer de manière non invasive l'atrophie cérébrale régionale.
Histologie et analyse tissulaire
Immunofluorescence multiplex automatisée pour la TH, l'α-synucléine pSer129, les noyaux dopaminergiques et la morphologie gliale sur des coupes entières.
Biomarqueurs liquides
Quantification de la dopamine striatale associée à des biomarqueurs du LCR et du plasma, y compris notre dosage de la chaîne légère des neurofilaments (NfL), provenant des mêmes souris.
Imageriein vivo
IRM structurelle à 7 T de la substance noire et du noyau caudé-putamen pour mesurer de manière non invasive l'atrophie cérébrale régionale.
Histologie et analyse tissulaire
Immunofluorescence multiplex automatisée pour la TH, l'α-synucléine pSer129, les noyaux dopaminergiques et la morphologie gliale sur des coupes entières.
Biomarqueurs liquides
Quantification de la dopamine striatale associée à des biomarqueurs du LCR et du plasma, y compris notre dosage de la chaîne légère des neurofilaments (NfL), provenant des mêmes souris.
Quel modèle choisir pour votre programme de prise en charge de la maladie de Parkinson ?
Pour de nombreux programmes actuels de développement de médicaments contre la maladie de Parkinson, la souris AAV-A53T-α-synucléine constitue une option pertinente, en particulier pour les programmes ciblant la pathologie de l’α-synucléine, tandis que le 6-OHDA est le choix approprié pour un ensemble de questions plus restreint et bien défini. La question déterminante n’est pas de savoir quel modèle est le plus sévère ou le plus rapide, mais si le mécanisme d’action de votre composé dispose d’une cible appropriée et de paramètres mesurables dans le modèle que vous choisissez.
Optez pour les souris 6-OHDA lorsque
votre composé est symptomatique, dopaminergique ou restaurateur, et que le paramètre de mesure dont vous avez besoin est la fonction nigrostriatale. La lésion est rapide, dosologiquement modulable et bien établie dans tous les laboratoires ; elle reproduit des déficits moteurs et plusieurs déficits non moteurs (Braun, 2025), et elle répond aux agents dopaminergiques. Il s’agit d’une plateforme raisonnable pour la pharmacologie de la classe de la lévodopa, les travaux sur la dyskinésie, le remplacement cellulaire et génique dopaminergique, ainsi que les criblages visant à protéger les neurones dopaminergiques contre les lésions oxydatives.
Concevez-le en tenant compte de son plafond — les troubles comportementaux se stabilisent au-delà de 1 µg dans les lésions du faisceau médian du cerveau antérieur chez la souris, même si la perte cellulaire se poursuit (Cui, 2024) — et normalisez la vérification de la cible, de la dose et de la lésion, que la littérature systématique identifie comme les principales sources de non-reproductibilité (Prates-Rodrigues, 2025).
Optez pour les souris AAV-A53T-α-synucléine lorsque
votre programme vise à modifier le cours de la maladie, et en particulier lorsqu’il cible l’α-synucléine. Les immunothérapies, les oligonucléotides réduisant le SNCA, les inhibiteurs d’agrégation et les thérapies géniques peuvent nécessiter des mesures pharmacodynamiques de l’expression, de l’abondance ou de la pathologie de l’α-synucléine (Naki, 2026), et que le modèle AAV-A53T présente une pathologie liée à l’α-synucléine qui n’est pas reproduite dans le modèle 6-OHDA.
Choisissez-le également lorsque vous avez besoin d’une lésion plus lente, touchant d’abord les zones terminales et laissant une fenêtre thérapeutique, lorsque vous souhaitez recourir à l’imagerie in vivo et à des biomarqueurs liquidiens pour compléter les mesures histologiques, ou lorsque la neuroinflammation fait partie de votre mécanisme. Dans les modèles d’α-synucléine en général, l’activation microgliale peut survenir précocement, et la manipulation des populations de cellules immunitaires peut modifier la pathologie (Ohtake, 2026; Kefalakes, 2025). Les programmes portant sur des cibles de l’immunité innée trouveront des informations de fond sur ces mécanismes dans nos ressources consacrées à l’inflammasome NLRP3 dans les maladies neurodégénératives, au TNF-α et aux microglies, ainsi que sur le TREM2 et la microglie, et les aspects liés aux critères d’évaluation dans notre aperçu de l’analyse de la morphologie de la microglie et nos travaux sur les interactions neurone-microglie.
Choisir un modèle pour votre programme thérapeutique
Si l’agent est symptomatique, utilisez le 6-OHDA et suivez un protocole rigoureux. Si l’agent est destiné à modifier l’évolution de la maladie, envisagez un modèle de l’α-synucléine lorsque le mécanisme thérapeutique cible la pathologie de l’α-synucléine — les échecs cliniques des deux dernières décennies ont été attribués en partie à l’utilisation de données issues de modèles toxiques pour sélectionner des agents modificateurs de la maladie destinés aux essais cliniques (Athauda, 2014; Mari, 2022). Si votre mécanisme intervient à la fois sur la survie dopaminergique et sur l’agrégation, ces deux modèles répondent à des questions complémentaires et peuvent être mis en œuvre successivement, le modèle de l’α-synucléine fournissant les résultats pathologiques les plus pertinents pour la composante « α-synucléine » du programme. D’autres modèles d’α-synucléine, notamment les modèles de fibrilles préformées (PFF), sont adaptés aux questions relatives à l’amorçage et à la propagation ; notre ressource sur les modèles d’α-synucléine à base d’AAV pour le développement de médicaments approfondit la conception des études.
Nous contacter
Notre équipe se fera un plaisir de répondre à toutes vos questions concernant le choix entre les souris 6-OHDA et les souris AAV-A53T-α-synucléine dans le cadre du développement de médicaments contre la maladie de Parkinson, ou de vous fournir des informations spécifiques sur les modèles de maladies neurodégénératives que nous utilisons pour les études d'efficacité thérapeutique.
Notre équipe se fera un plaisir de répondre à toutes vos questions concernant le choix entre les souris 6-OHDA et les souris AAV-A53T-α-synucléine dans le cadre du développement de médicaments contre la maladie de Parkinson, ou de vous fournir des informations spécifiques sur les modèles de maladies neurodégénératives que nous utilisons pour les études d'efficacité thérapeutique.
En savoir plus sur nos modèles
Biospective dispose d'une gamme de modèles murins de maladies neurodégénératives, chacun doté de paramètres de mesure validés in vivo et ex vivo. Voici ceux qui présentent le plus d'intérêt pour un programme de recherche sur la maladie de Parkinson.
Modèles d'AAV-α-synucléine
Administration unilatérale d'AAV-human-A53T-α-synucléine dans la substance noire, avec apparition de déficits moteurs dès la 5e semaine, pathologie pSer129, perte dopaminergique, atrophie mise en évidence par IRM 7T et présence de neurofilaments légers dans le LCR.
Modèles de PFF de l'α-synucléine
L'ensemencement par des fibrilles préformées (PFF) pour étudier les mécanismes de formation et de propagation de la pathologie liée à l'α-synucléine entre des régions cérébrales connectées.
Modèles de la maladie de Parkinson
L'ensemble complet des modèles murins de la maladie de Parkinson proposés par Biospective, avec les paramètres d'évaluation disponibles pour chacun d'entre eux et des conseils pour choisir un modèle en fonction du mécanisme étudié.
Modèles d'AAV-α-synucléine
Administration unilatérale d'AAV-human-A53T-α-synucléine dans la substance noire, avec apparition de déficits moteurs dès la 5e semaine, pathologie pSer129, perte dopaminergique, atrophie mise en évidence par IRM 7T et présence de neurofilaments légers dans le LCR.
Modèles de PFF de l'α-synucléine
L'ensemencement par des fibrilles préformées (PFF) pour étudier les mécanismes de formation et de propagation de la pathologie liée à l'α-synucléine entre des régions cérébrales connectées.
Modèles de la maladie de Parkinson
L'ensemble complet des modèles murins de la maladie de Parkinson proposés par Biospective, avec les paramètres d'évaluation disponibles pour chacun d'entre eux et des conseils pour choisir un modèle en fonction du mécanisme étudié.
FAQs
FAQs
Références
Mots-clés
Contenu associé
Contenu associé
Ressource
Modèles d'α-synucléine basés sur l'AAV pour le développement de médicaments contre la maladie de Parkinson
Aperçu de l'expression de l'α-synucléine induite par le virus adéno-associé (AAV) dans des modèles murins et ratins destinés aux études précliniques sur les traitements modificateurs de la maladie.
Ressource
La chaîne légère du neurofilament dans les modèles de la maladie de Parkinson
Comment les taux de chaîne légère des neurofilaments (NfL ; NF-L) peuvent servir de biomarqueurs dans le sang (plasma ; sérum) et le LCR dans des modèles murins et ratins de la maladie de Parkinson.
Présentation
Activation microgliale dans un modèle murin d'agrégats de PFF d'α-synucléine
Nous avons quantifié l'activation microgliale, sur la base de la morphologie, dans un modèle murin de la maladie de Parkinson impliquant l'ensemencement et la propagation de fibrilles préformées (PFF) d'α-synucléine.
Ressource
Modèles d'α-synucléine basés sur l'AAV pour le développement de médicaments contre la maladie de Parkinson
Aperçu de l'expression de l'α-synucléine induite par le virus adéno-associé (AAV) dans des modèles murins et ratins destinés aux études précliniques sur les traitements modificateurs de la maladie.
Ressource
La chaîne légère du neurofilament dans les modèles de la maladie de Parkinson
Comment les taux de chaîne légère des neurofilaments (NfL ; NF-L) peuvent servir de biomarqueurs dans le sang (plasma ; sérum) et le LCR dans des modèles murins et ratins de la maladie de Parkinson.
Présentation
Activation microgliale dans un modèle murin d'agrégats de PFF d'α-synucléine
Nous avons quantifié l'activation microgliale, sur la base de la morphologie, dans un modèle murin de la maladie de Parkinson impliquant l'ensemencement et la propagation de fibrilles préformées (PFF) d'α-synucléine.