
Table des matières
- Que sont les modèles murins Tg2576 et APP/PS1 (ARTE10) ?
- En quoi l'apparition de l'amyloïde et la morphologie des plaques diffèrent-elles entre les deux modèles ?
- Dans quelle mesure cette pathologie est-elle reproductible ?
- Quelles sont les similitudes et les différences entre la neuroinflammation et le microenvironnement de la plaque ?
- Quel modèle est le mieux adapté aux études sur l'amyloïde cérébrovasculaire et l'ARIA ?
- En quoi le choix du modèle influe-t-il sur la durée et l'ampleur de l'étude ?
- Que permet de mesurer Biospective chez les souris APP/PS1 (ARTE10) ?
- Dans quels cas le Tg2576 reste-t-il le bon choix ?
- Quel modèle amyloïde devriez-vous choisir pour votre programme thérapeutique ?
Résumé
Premières plaques
3 mois APP/PS1 (ARTE10) | ~9 mois Tg2576 |
Charge plaque modérée
6 mois APP/PS1 (ARTE10) | 11 à 13 mois Tg2576 |
Charge importante de plaque dentaire
9 mois APP/PS1 (ARTE10) | 15 mois Tg2576 |
Premières plaques
3 mois APP/PS1 (ARTE10) | ~9 mois Tg2576 |
Charge plaque modérée
6 mois APP/PS1 (ARTE10) | 11 à 13 mois Tg2576 |
Charge importante de plaque dentaire
9 mois APP/PS1 (ARTE10) | 15 mois Tg2576 |
En résumé : pour un programme de développement thérapeutique lié à l’amyloïde nécessitant une décision de poursuite ou d’abandon dans un délai d’un an ou moins, la lignée APP/PS1 (ARTE10) constitue le meilleur choix par défaut, tandis que la lignée Tg2576 est à réserver de préférence à la reproduction d’ensembles de données historiques. Les souris ARTE10 homozygotes présentent leurs premiers dépôts de plaques vers l’âge de 3 mois et atteignent une pénétrance de 100 % du phénotype de plaque à 5 mois, tandis que les plaques Tg2576 apparaissent vers 9 mois et que la pénétrance n’est complète qu’entre 11 et 13 mois (Willuweit, 2009). Cet écart représente environ six mois d’élevage supplémentaires par groupe d’étude, sans tenir compte des éventuelles différences de taille des cohortes. Les souris ARTE10 se reproduisent également en tant que lignée homozygote, présentent des différences minimes entre les sexes en termes de charge en amyloïde-β et présentent des plaques thioflavine-positives diffuses et à noyau dense dès les premiers dépôts, ce qui rend le modèle adapté à l’imagerie TEP amyloïde ainsi qu’à l’évaluation des traitements ciblant les plaques et d’autres thérapies ciblant la MA (Willuweit, 2021).
DISPONIBLE CHEZ BIOSPECTIVE
APP/PS1 (ARTE10) : modèle murin transgénique de l'amyloïde-β
Lignée homozygote sur fond C57BL/6NTac
Phénotype de plaque à pénétrance totale à l'âge de 5 mois
Validé pour :
l'atrophie observée à l'IRM
Immunofluorescence multiplexe quantitative
Biomarqueurs liquides
DISPONIBLE CHEZ BIOSPECTIVE
APP/PS1 (ARTE10) : modèle murin transgénique de l'amyloïde-β
Lignée homozygote sur fond C57BL/6NTac
Phénotype de plaque à pénétrance totale à l'âge de 5 mois
Validé pour :
l'atrophie observée à l'IRM
Immunofluorescence multiplexe quantitative
Biomarqueurs liquides
Que sont les modèles murins Tg2576 et APP/PS1 (ARTE10) ?
Ces deux modèles murins transgéniques reproduisent le dépôt d’amyloïde-β (Aβ), mais ils diffèrent par le nombre de mutations associées à la maladie d’Alzheimer familiale qu’ils portent et par leur mode de reproduction. La souche Tg2576 porte un seul transgène et développe une pathologie amyloïde avec l'âge ; la souche APP/PS1 (ARTE10) porte deux transgènes co-intégrés et est maintenue homozygote, ce qui génère une pression amyloïdogène plus importante dès le départ.
Tg2576. Les souris Tg2576 surexpriment l’isoforme de 695 acides aminés de l’APP humaine portant la double mutation suédoise (K670N/M671L) sous le contrôle d’un promoteur de la protéine prion du hamster. La caractérisation initiale a fait état d’un apprentissage et d’une mémoire normaux à 3 mois, d’une altération entre 9 et 10 mois, et de plaques positives au rouge du Congo dans les structures corticales et limbiques chez les animaux présentant un taux élevé d’Aβ (Hsiao, 1996). Cette lignée est généralement maintenue sur un fond génétique mixte C57BL/6 × SJL (Rustay, 2010).
APP/PS1 (ARTE10). Les souris ARTE10 sont porteuses d’une protéine APP humaine présentant la même mutation suédoise, ainsi que d’une préséniline-1 humaine portant la mutation M146V ; ces deux gènes sont exprimés sous le contrôle du promoteur Thy-1 spécifique aux neurones et co-intégrés de manière à ce que les deux transgènes soient transmis ensemble. Cette lignée est viable et fertile lorsqu’elle est maintenue homozygote pour les deux transgènes, avec des performances de reproduction comparables à celles des souris C57BL/6 de type sauvage. La préséniline-1 mutante fait pencher le clivage par la γ-sécrétase vers l’Aβ42, l’espèce insoluble prédominante chez ces animaux, ce qui contribue à leur dépôt précoce et important (Willuweit, 2009). Les études de Biospective utilisent la lignée homozygote sur un fond C57BL/6NTac.
Ces deux lignées appartiennent à la première génération de modèles de surexpression de l’APP, et les revues de la littérature dans ce domaine soulignent que la surexpression en elle-même peut générer des phénotypes sans rapport avec la maladie d’Alzheimer et que les modèles doivent être adaptés à la question expérimentale spécifique plutôt que sélectionnés par convention (Sasaguri, 2017; Jankowsky & Zheng, 2017). La comparaison ci-dessous s’articule autour de ce choix. Pour une comparaison équivalente avec une lignée plus agressive, consultez notre ressource sur les souris 5xFAD par rapport aux souris APP/PS1.
Comparaison directe des modèles murins Tg2576 et APP/PS1 (ARTE10) de la pathologie de l’amyloïde-β. Les libellés des lignes sont identiques pour les deux modèles, et les entrées sans valeurs publiées sont signalées comme « non évaluées » plutôt qu’omises. Sauf mention contraire, les valeurs relatives à l’apparition, à la pénétrance, à la zygosité, au promoteur, à la variabilité et à la mortalité sont tirées de la caractérisation de la lignée ARTE10 et de sa comparaison publiée avec d’autres modèles transgéniques de la pathologie amyloïde-β (Willuweit, 2009).
En quoi l'apparition de l'amyloïde et la morphologie des plaques diffèrent-elles entre les deux modèles ?
Les souris ARTE10 présentent des dépôts amyloïdes environ six mois plus tôt que les souris Tg2576, et ces dépôts se présentent sous forme de plaques matures à noyau dense plutôt que sous forme de matière diffuse qui se compacte par la suite. Chez les animaux homozygotes ARTE10, les premières plaques apparaissent dans le néocortex antérieur et le subiculum à l’âge de 3 mois, puis se propagent vers l’hippocampe, l’amygdale et le thalamus avec l’âge, tandis que le cervelet reste épargné, comme c’est le cas dans la maladie d’Alzheimer chez l’homme (Willuweit, 2009). La souche Tg2576, en revanche, a été initialement caractérisée comme un modèle dans lequel les troubles de la mémoire et les plaques positives au rouge du Congo apparaissent simultanément entre 9 et 10 mois (Hsiao, 1996).
Chez les souris Tg2576, les évolutions biochimiques et histologiques ne coïncident pas. Les Aβ40 et Aβ42 insolubles deviennent détectables entre 6 et 7 mois et augmentent de manière exponentielle jusqu’à 10 mois, alors que l’histopathologie au cours de cette période se limite à des noyaux isolés ; des plaques diffuses apparaissent à partir de 12 mois, et des plaques neuritiques comportant des noyaux amyloïdes s’accumulent entre 12 et 23 mois (Kawarabayashi, 2001). Les animaux examinés à 16 mois présentent des dépôts amyloïdes accompagnés d’une gliose marquée et d’une dystrophie neuritique (Irizarry, 1997). Un programme qui évalue la charge en plaques sur le plan histologique ne peut donc pas considérer le signal biochimique observé à 6 mois comme le point de départ de l’étude.
Cette différence morphologique est déterminante pour tout ce qui se lie à l’amyloïde fibrillaire. Dans le cerveau des souris ARTE10, même les dépôts les plus précoces et les plus petits détectables sont déjà congophiles, et les dépôts diffus n’apparaissent que sous forme de satellites une fois que la charge en plaques est élevée (Willuweit, 2009). La microscopie électronique cryogénique de fibrilles ex vivo issues de six modèles murins a révélé que les fibrilles de l’étude ARTE10 présentent le repli filamentaire de type II observé dans le cerveau des patients, une propriété que les auteurs associent directement à la sélection de modèles pour les traitements ciblant les plaques et au développement de traceurs TEP (Zielinski, 2023).
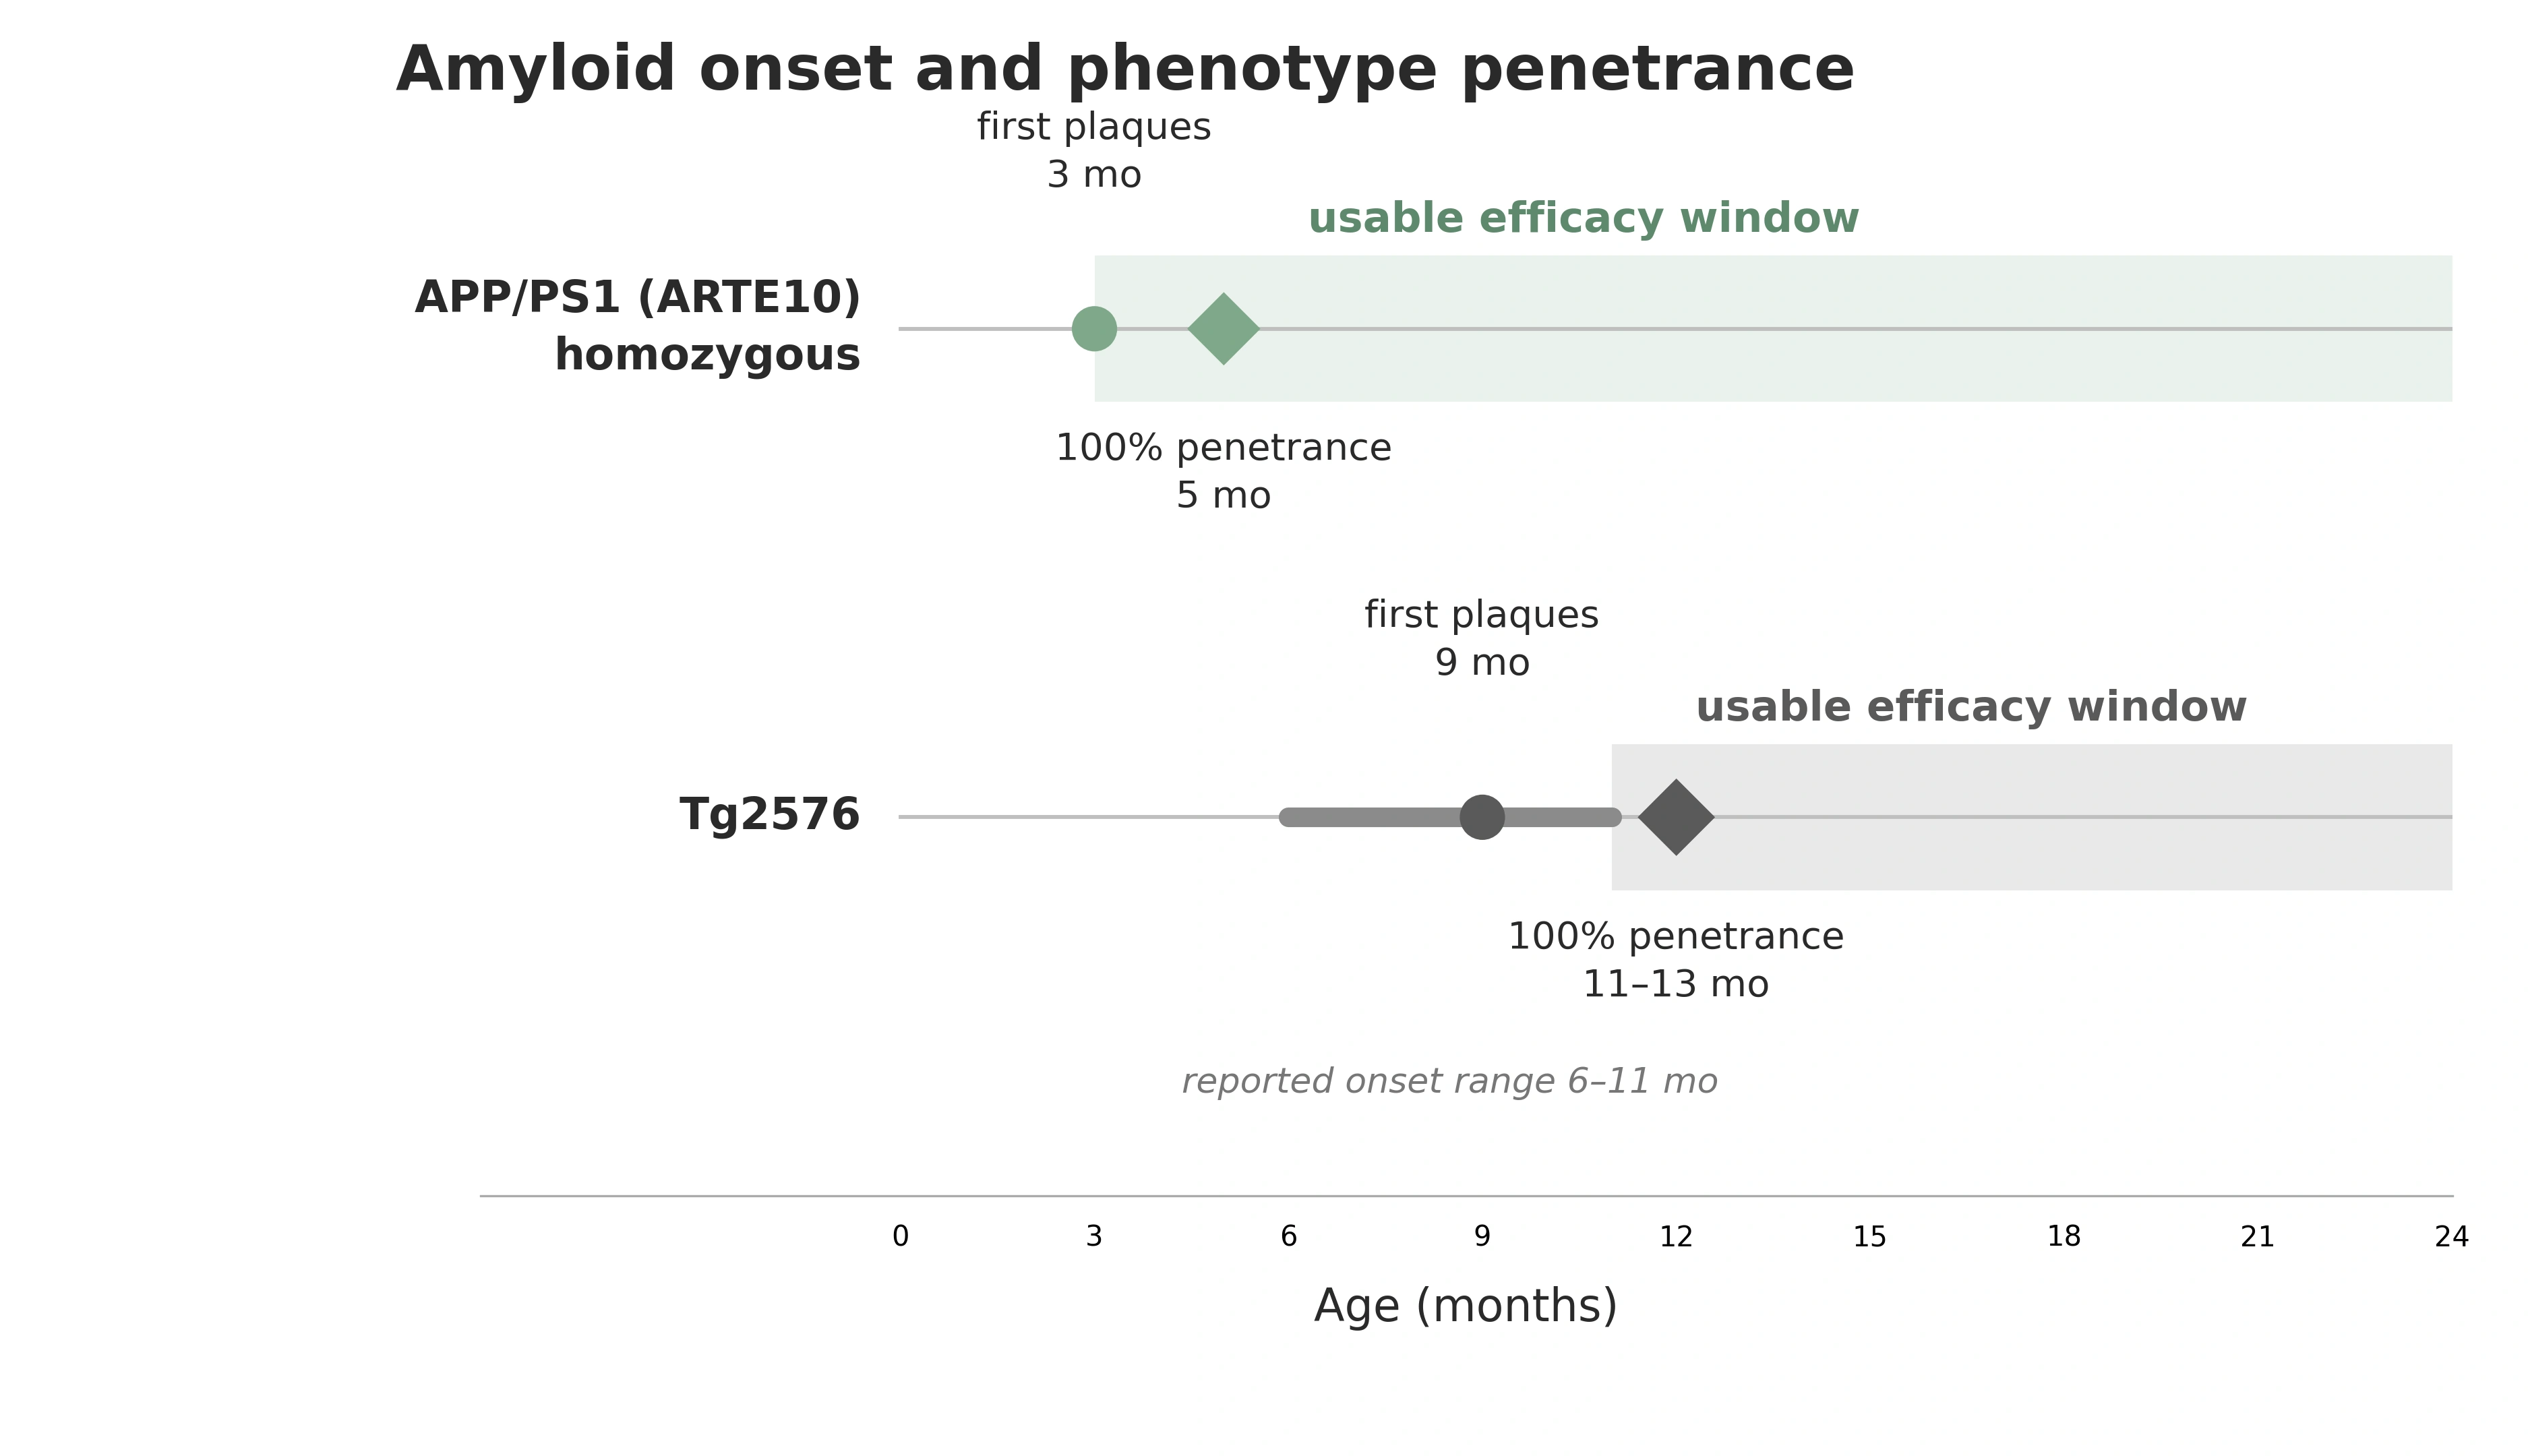
Apparition de l'amyloïde et pénétrance phénotypique chez les souris Tg2576 et les souris homozygotes APP/PS1 (ARTE10). Les cercles indiquent le premier dépôt de plaques détectable, les losanges indiquent l'âge auquel le phénotype des plaques est pénétrant à 100 %, et les barres ombrées indiquent la période pendant laquelle une cohorte entièrement pénétrante est disponible pour une étude d'efficacité. Redessiné par Biospective à partir de données publiées (Willuweit, 2009; Kawarabayashi, 2001; Irizarry, 1997) ; aucune nouvelle donnée n’est présentée.
Dans quelle mesure cette pathologie est-elle reproductible ?
La lignée homozygote ARTE10 est la plus reproductible des deux modèles murins pour tous les paramètres pris en compte dans le calcul de la puissance statistique : pénétrance, dispersion inter-animaux, effets liés au sexe et attrition. Toutes les souris homozygotes ARTE10 examinées présentaient des plaques à l’âge de 5 mois, soit deux mois après l’apparition de la maladie, et la variabilité de la charge en plaques entre les animaux du même âge est faible (Willuweit, 2009).
Effets liés au sexe. Le sexe constitue une contrainte de conception dans la lignée Tg2576, mais pas dans la lignée ARTE10. Dans une cohorte de 91 souris Tg2576 examinées à l’âge de 15 mois, la surface cérébrale occupée par les plaques chez les femelles était près de trois fois supérieure à celle des mâles, avec une différence plus faible mais concordante pour l’Aβ40 et l’Aβ42 mesurés par ELISA (Callahan, 2001). Une étude sur ce modèle doit donc soit être menée sur un seul sexe, ce qui affaiblit la transposition à l’homme, soit stratifier la population et prendre en charge le coût des animaux supplémentaires. Aucune différence liée au sexe n’a été rapportée chez les souris ARTE10, qu’elles soient hémizygotes ou homozygotes (Willuweit, 2009).
Souche de fond. La souche mixte C57BL/6 × SJL utilisée pour la lignée Tg2576 porte l’allèle récessif Pde6b rd1 responsable d’une dégénérescence rétinienne, et cette souche présente une grande variabilité d’un test comportemental à l’autre ; le même transgène APP sur une souche congénique 129 a produit des déficits plus cohérents avec une pathologie Aβ comparable (Rustay, 2010). L’effet pratique est mesurable : l’acquisition du labyrinthe aquatique n’était pas réalisable chez les homozygotes rd à 8 ou 16 mois, tandis que l’alternance dans le labyrinthe en Y, la reconnaissance d’objets et le labyrinthe de Barnes restaient informatifs (Yassine, 2013). Tout critère d’évaluation cognitif chez le Tg2576 doit être choisi en fonction de la vision des animaux.
Quelles sont les similitudes et les différences entre la neuroinflammation et le microenvironnement de la plaque ?
Les deux modèles induisent une activation gliale robuste associée aux plaques, mais le modèle ARTE10 la provoque plus tôt et selon une organisation spatiale qui facilite l’« analyse du microenvironnement ». Chaque plaque amyloïde dans le cerveau ARTE10 est entourée d’une couronne de neurites dystrophiques ubiquitine-positifs et accompagnée, à sa périphérie, de microglies activées Iba-1-positives et d’astrocytes réactifs GFAP-positifs, une structure tripartite qui reflète la morphologie classique des plaques séniles humaines (Willuweit, 2009). Chez les souris Tg2576, la gliose et la dystrophie neuritique équivalentes sont présentes, mais coexistent avec de l’amyloïde qui n’est elle-même entièrement déposée que bien plus tard, et elles ne s’accompagnent pas d’une perte neuronale dans la zone CA1, même à 16 mois (Irizarry, 1997; Kawarabayashi, 2001).
Comme la réponse gliale s’organise autour de plaques individuelles, l’information obtenue est de nature spatiale plutôt que globale. Biospective quantifie le microenvironnement inflammatoire de plaques individuelles chez les souris ARTE10, y compris la morphologie des astrocytes au voisinage de la plaque et les populations de microglies activées par rapport aux populations non activées, à l’aide d’une immunofluorescence multiplexe sur lame entière et d’une segmentation automatisée. La caractérisation interne de ce modèle montre une augmentation liée à l’âge tant de la densité des plaques que de la densité de coloration de l’Iba-1 et de la GFAP dans le cortex cérébral, sur des cohortes vieillies en série. Vous trouverez de plus amples informations sur la classification des plaques dans notre ressource consacrée à l’analyse des plaques d’amyloïde-β.
L'amyloïde-β et le microenvironnement inflammatoire
Découvrez comment nous cartographions les microglies et les astrocytes autour de chaque plaque chez les souris APP/PS1.
Morphologie des astrocytes dans les modèles amyloïdes
Les mesures des astrocytes voisins des plaques constituent un marqueur sensible de la progression de la maladie.
Histologie et analyse des microglies
Quantification et classification morphologique des populations microgliales.
Quel modèle est le mieux adapté aux études sur l'amyloïde cérébrovasculaire et l'ARIA ?
ARTE10 est la plateforme la plus efficace pour les travaux sur l’amyloïde cérébrovasculaire, bien que Tg2576 dispose d’une expérience publiée plus longue en matière de microhémorragies induites par des anticorps. Les anomalies d’imagerie liées à l’amyloïde constituent la principale toxicité limitant la dose des anticorps anti-amyloïdes ; elles comprennent l’œdème ou l’épanchement (ARIA-E) et l’hémosidérose ou la microhémorragie (ARIA-H), et elles partagent des caractéristiques cliniques et physiopathologiques avec l’angiopathie amyloïde cérébrale (CAA), l’haplotype de l’apolipoprotéine E et la dose d’anticorps constituant les principaux facteurs de risque (Hampel, 2023). Tout modèle préclinique d’ARIA doit donc permettre le développement d’une véritable amyloïdose vasculaire, et pas seulement de plaques parenchymateuses.
Les souris ARTE10 développent une angiopathie amyloïde des vaisseaux intracorticaux, leptoméningés et choroïdiens à mesure que l’amylose parenchymateuse progresse (Willuweit, 2009). Une étude IRM multimodale menée sur des souris ARTE10 âgées de 10 mois présentant à la fois une amyloïdose cérébrale et vasculaire a mis en évidence des augmentations régionales du taux de relaxation transversale apparent et de la susceptibilité magnétique dans l’hippocampe, avec des effets de grande ampleur, ainsi qu’une charge en fer hippocampique élevée à l’immunohistochimie (Shahid, 2026). Les résultats de l’imagerie pondérée en susceptibilité (SWI) de ce type reposent sur les mêmes principes physiques que ceux utilisés pour détecter les ARIA-H chez les patients, chez lesquels la présence de microhémorragies à l’inclusion augmente le risque d’ARIA ultérieures (Hampel, 2023).
Chez le Tg2576, l’administration systémique prolongée d’anticorps anti-Aβ a aggravé la pathologie vasculaire chez les animaux âgés, tandis que l’administration intracérébroventriculaire du même anticorps a réduit l’angiopathie amyloïde cérébrale et les microhémorragies associées (Thakker, 2009), fournissant ainsi une expérience véritablement informative de type ARIA, mais menée chez des souris âgées. Le compromis porte donc principalement sur le calendrier plutôt que sur la biologie : les études ARTE10 peuvent être évaluées au bout de 10 mois, tandis que les expériences Tg2576 nécessitent des animaux nettement plus âgés.
Les programmes nécessitant également une modélisation des risques dépendante de l’APOE4 peuvent utiliser un croisement avec l’un ou l’autre de ces modèles. Les deux approches requièrent une IRMin vivo avec des séquences sensibles à l’hémosidérine. Un modèle de croisement ARTE10xAPOE4 a récemment été développé, et les modifications pertinentes pour l’ARIA observées dans ce modèle sont actuellement évaluées par les chercheurs de Biospective.
Biomarqueurs liquides
Aβ40/42, protéine tau, cytokines dans les homogénats cérébraux, le LCR et le plasma/sérum.
IRM in vivo
Imagerie anatomique et pondérée en susceptibilité pour l'évaluation des lésions vasculaires et des lésions de type ARIA.
Concevoir une étude d'imagerie longitudinale
Indiquez-nous votre critère d'évaluation et nous vous proposerons un calendrier d'étude.
En quoi le choix du modèle influe-t-il sur la durée et l'ampleur de l'étude ?
Le choix du modèle détermine à la fois le moment où une étude peut débuter et la taille de la cohorte requise, et ces deux effets se cumulent. Une cohorte ARTE10 à pénétrance totale peut être étudiée dès l’âge de 5 mois, tandis que la souche Tg2576 n’atteint sa pénétrance totale qu’entre 11 et 13 mois (Willuweit, 2009). Pour un bras de traitement administré sur une période de 3 mois, cela représente la différence entre une phase « in-life » se terminant avant le premier anniversaire de la cohorte et une phase s’étendant bien au-delà de sa deuxième année, avec les coûts correspondants d’élevage, d’attrition et de détention.
La taille de la cohorte dépend davantage de la variabilité des critères d’évaluation que du nom du modèle, ce qui explique pourquoi la pénétrance et la propagation inter-animaux importent davantage que la charge absolue en plaques. Trois propriétés de la lignée homozygote ARTE10 favorisent des cohortes plus petites et plus efficaces : une pénétrance complète, minimisant le nombre d’animaux ne présentant pas de pathologie établie ; l’absence d’effet lié au sexe rapporté, permettant de regrouper les deux sexes ; et une faible variabilité inter-animaux à un âge donné (Callahan, 2001).
Que permet de mesurer Biospective chez les souris APP/PS1 (ARTE10) ?
Biospective gère le modèle homozygote APP/PS1 (ARTE10) dans le cadre d’un service CRO de bout en bout, allant de l’administration du traitement à l’imagerie in vivo, en passant par la neuropathologie quantitative et les immunoessais. Les critères d’évaluation les plus couramment utilisés dans les programmes de développement de médicaments contre la maladie d’Alzheimer sont les suivants :
Lorsqu'un programme nécessite la présence d'une pathologie tau et d'une neurodégénérescence manifeste associées à l'amyloïde, nous utilisons un modèle de co-pathologie amyloïde-β et tau basé sur le même fond ARTE10, tandis que notre portefeuille plus large de modèles de la maladie d'Alzheimer couvre des questions connexes. Notre initiative « Microglia, Astrocytes & Neurodegenerative Diseases » rassemble les méthodes utilisées pour les paramètres liés aux cellules gliales.
Dans quels cas le Tg2576 reste-t-il le bon choix ?
La lignée Tg2576 reste le modèle approprié lorsque la question scientifique est liée à cette lignée spécifique plutôt qu’à la biologie de l’amyloïde en général. Trois situations répondent à ces critères. Premièrement, la reproduction ou l’extension d’un ensemble de données existant sur Tg2576, lorsque le changement de lignée compromettrait la comparabilité avec les données de contrôle historiques générées dans le cadre du même programme. Deuxièmement, les travaux mécanistiques portant sur une cible dont la biologie a été établie dans Tg2576 et dont l’expression ou l’interaction n’a pas été caractérisée dans d’autres modèles. Troisièmement, les études qui exploitent délibérément la trajectoire plus lente d’un transgène unique, par exemple pour étudier la phase de pré-dépôt, lorsque l’Aβ insoluble augmente mais que les plaques histologiques restent minimes (Kawarabayashi, 2001).
Il convient également de préciser ce que la lignée ARTE10 n’offre pas. À l’instar de Tg2576 et d’autres lignées transgéniques APP ou APP-préséniline, ARTE10 ne développe pas d’enchevêtrements neurofibrillaires, et l’hyperphosphorylation de la protéine tau chez les homozygotes âgés se limite à une minorité de neurites dystrophiques associés aux plaques (Willuweit, 2009). ARTE10 est un modèle amyloïde et présente la mise en garde générale associée aux modèles de surexpression de l’APP : les phénotypes attribuables à des niveaux supraphysiologiques d’APP ne sont pas nécessairement des caractéristiques de la maladie d’Alzheimer (Sasaguri, 2017).
Quel modèle amyloïde devriez-vous choisir pour votre programme thérapeutique ?
Pour la plupart des programmes thérapeutiques ciblant l’amyloïde, la lignée homozygote APP/PS1 (ARTE10) est recommandée, la lignée Tg2576 étant réservée à des fins de continuité avec les données existantes. Ce choix repose sur quatre caractéristiques qui influent directement sur le coût de l’étude et la probabilité de détecter un effet thérapeutique : l’apparition des plaques à 3 mois et une pénétrance complète à 5 mois (Willuweit, 2009) ; aucune différence entre les sexes n’a été signalée concernant la charge amyloïde, contrairement à la charge près de trois fois plus élevée chez les souris Tg2576 femelles à 15 mois (Callahan, 2001) ; la présence de plaques congophiles à noyau dense dès les premiers dépôts, qui correspondent à l’espèce se liant aux traceurs TEP amyloïdes (Willuweit, 2021) ; et un repli fibrillaire comprenant le polymorphisme de type II humain observé dans le cerveau des patients (Zielinski, 2023). En ce qui concerne les critères d'évaluation vasculaires, le modèle présente une charge amyloïde cérébrale et vasculaire mesurable à 10 mois (Shahid, 2026).
Choisissez APP/PS1 (ARTE10) lorsque l’objectif est de détecter et de quantifier un effet de réduction de l’amyloïde, ciblant les plaques ou neuroinflammatoire en moins d’un an, en particulier avec une IRM longitudinale, ou lorsque le programme nécessite un substrat amyloïde vasculaire pour des travaux de sécurité axés sur l’ARIA (Hampel, 2023). Le compromis réside dans l’absence de pathologie des enchevêtrements et de perte neuronale manifeste, lacune que notre modèle de co-pathologie est conçu pour combler.
Optez pour Tg2576 lorsque le programme doit s’aligner sur un ensemble de données Tg2576 existant, lorsque la biologie de la cible est spécifiquement documentée dans cette lignée, ou lorsque la phase de pré-dépôt, plus lente, constitue elle-même l’objet de l’étude (Kawarabayashi, 2001). Dans ce cas, acceptez une étude débutant vers 11 mois, une cohorte qui doit être stratifiée ou restreinte par sexe, une sélection des tâches limitée par l’allèle de dégénérescence rétinienne sur le fond génétique conventionnel, et un sur-recrutement pour tenir compte de l’attrition (Callahan, 2001; Yassine, 2013).
Notre équipe se fera un plaisir de discuter avec vous de la sélection du modèle, de la taille de la cohorte et de la stratégie relative aux critères d’évaluation pour votre programme sur la MA. Contactez-nous pour définir le périmètre d’une étude.
Sélectionnez APP/PS1 (ARTE10) lorsque
L'objectif est de mettre en évidence et de quantifier, d'ici un an, un effet de réduction des dépôts amyloïdes, d'action sur les plaques ou neuroinflammatoire.
Vous souhaitez réaliser des IRM longitudinales sur un même animal .
Le programme a besoin d’un substrat amyloïde vasculaire pour les travaux de sécurité axés sur l’ARIA.
Le compromis accepté est l’absence de pathologie des enchevêtrements et de perte neuronale manifeste, ce qui constitue la lacune que notre modèle de co-pathologie est conçu pour combler.
Choisissez le modèle Tg2576 lorsque
Le programme doit correspondre à un ensemble de données Tg2576 existant.
Les caractéristiques biologiques de la cible ne sont documentées que dans cette lignée.
La phase de pré-dépôt, plus lente, fait elle-même l’objet de l’étude.
Accepter une étude débutant vers 11 mois, une stratification ou une restriction par sexe, une sélection des tâches contrainte par l’allèle de dégénérescence rétinienne, et un sur-recrutement pour pallier l’attrition (Callahan, 2001 ; Yassine, 2013).
Appel à l'action final
Prenez plus rapidement votre décision « oui » ou « non »
Notre équipe gère le modèle homozygote APP/PS1 (ARTE10) de bout en bout, depuis l’administration du traitement jusqu’à l’IRM, en passant par l’analyse spatiale des plaques Aβ et de la neuroinflammation, ainsi que les biomarqueurs liquides translationnels. Présentez-nous votre programme de recherche sur la maladie d’Alzheimer et nous vous proposerons un modèle, une taille de cohorte et une stratégie de critères d’évaluation.
Foire aux questions
FAQs
Références
Mots-clés
Contenu associé
Contenu associé
Amyloïde-β et microenvironnement inflammatoire chez les souris atteintes de la maladie d'Alzheimer
Relations spatiales entre les plaques, les microglies et les astrocytes chez les souris APP/PS1.
Comparaison entre les souris 5xFAD et les souris APP/PS1 dans le cadre du développement de médicaments contre la maladie d'Alzheimer
Comparaison entre l'APP/PS1 et une lignée amyloïde plus rapide et plus agressive.
Analyse des plaques d'amyloïde-β dans la maladie d'Alzheimer
Méthodes de classification et de quantification des plaques d'Aβ dans les tissus humains et de rongeurs.